

Биотехнология, 2024, T. 40, № 6, стр. 12-20
17β-гидроксистероиддегидрогеназа типа 5 из Mus musculus: выделение, очистка и анализ методом малоуголового рентгеновского рассеяния
П. В. Егорова 1, 2, В. Е. Гонялин 1, 2, А. Э. Гималетдинова 1, 2, С. А. Рябов 1, 2, М. С. Глазырин 1, 2, Н. С. Гараева 2, 3, Д. Д. Куклина 4, 5, Ю. Л. Рижиков 4, 6, Н. И. Стрижов 7, М. В. Донова 7, М. М. Юсупов 3, 8, *, К. С. Усачев 3, **
1 Казанский (Приволжский) федеральный университет
420008 Казань, Россия
2 Федеральный исследовательский центр “Казанский научный центр
Российской академии наук”
420111 Казань, Россия
3 Национальный исследовательский центр “Курчатовский институт”
123182 Москва, Россия
4 Московский физико-технический институт
141701 Московская область, Долгопрудный, Россия
5 Лаборатория структурной динамики, стабильности и фолдинга белков,
Институт цитологии Российской академии наук
194064 Санкт-Петербург, Россия
6 Лаборатория нейтронной физики им. И.М. Франка,
Объединенный институт ядерных исследований
141980 Дубна, Россия
7 Института биохимии и физиологии микроорганизмов имени Г.К. Скрябина Российской академии наук, ФИЦ “Пущинский научный центр биологических исследований Российской академии наук”
142290 Московская область, Пущино, Россия
8 Institute of Genetics, Molecular and Cell Biology (IGBMC)
67400 Ilkirsch-Graffenstaden, France
* E-mail: marat.yusupov@igbmc.fr
** E-mail: k.usachev@knc.ru
Поступила в редакцию 19.11.2024
После доработки 22.11.2024
Принята к публикации 24.11.2024
Аннотация
Одна из наиболее частых причин возникновения патологий эндокринной системы ‒ нарушение баланса гормонов. В регуляции биологической активности андрогенов и эстрогенов в организме участвуют специальные ферменты – 17β-гидроксистероиддегидрогеназы (17β-ГСД). На сегодняшний день обнаружено 15 типов этих ферментов. Они играют важную роль в биосинтезе или инактивации различных стероидных гормонов. Изучение структуры этих ферментов позволяет разработать высокоспецифичные ингибиторы в качестве потенциальных терапевтических средств для контроля гормонозависимых заболеваний, а также позволяет предложить пути модификации схожих ферментов для биотехнологического производства гормонов. В статье представлен оптимизированный протокол выделения и очистки 17β-ГСД типа 5 (17β-ГСД-5) из Mus musculus, а также анализ структуры полученного фермента методами динамического рассеяния света и малоуглового рентгеновского рассеяния.
Половые стероидные гормоны, такие как эстрогены и андрогены, участвуют в развитии и дифференцировке тканей и органов: костей, сердечно-сосудистой системы, головного мозга, яичек, предстательной железы, эндометрия и яичников. Влияние стероидов зависит от их относительной концентрации, а также от местной конверсии, что в свою очередь опосредовано рядом ферментов, таких как ароматаза, стероидсульфатаза и 17β-гидроксистероиддегидрогеназа [1].
17β-гидроксистероиддегидрогеназы (17β-ГСД) – семейство ферментов, участвующих в каталитических реакциях стероидгенеза, которые путем окислительно-восстановительных реакций преобразуют неактивные формы мужских и женских гормонов в активные. У млекопитающих обнаружено 15 типов ферментов этого семейства, каждый из которых играет определенную роль в биосинтезе или инактивации различных стероидных гормонов [2‒10]. Например, 17β-ГСД типа 5 (17β-ГСД-5) катализирует обратимую конверсию неактивного андростендиона в его активную форму – тестостерон [11].
Нарушение баланса этих гормонов может привести к различным патологиям эндокринной системы. Например, повышение уровня андрогенов у женщин сопровождается патологией надпочечников, гипофиза и яичников, а недостаток уровня тестостерона у мужчин может привести к раку и доброкачественной гиперплазии простаты, а также к нарушению формирования пола [12‒14].
При сравнении аминокислотных последовательностей 17β-ГСД-5 человека (Homo sapiens) и обезьян (Macaca fascicularis) выявлена идентичность в 95%, в то время как с ортологом из мышей (Mus musculus) она составила 78%. Стоит отметить, что 17β-ГСД-5 человека и обезьян лабильны и разрушаются при гомогенизации трансформированных клеток, тогда как фермент из Mus musculus – нет. К тому же 17β-ГСД-5 Mus musculus обладает более высокой активностью чем 17β-ГСД-5 Homo sapiens [15]. Для выявления молекулярных причин указанных отличий ортологов 17β-ГСД-5 необходимы исследования их пространственной структуры методами рентгеноструктурного анализа. Информация об особенностях строения активного центра фермента 17β-ГСД-5 Mus musculus позволит разработать специфические ингибиторы, которые станут потенциальными терапевтическими средствами для контроля гормонозависимых заболеваний. Кроме того, на основании этих знаний будут разработаны модификации этих ферментов для биотехнологического производства гормонов.
Один из ключевых этапов получения кристалла белка ‒ оптимизация протоколов выделения и очистки белка и анализ полученного препарата методом малоуглового рентгеновского рассеяния (МУРР). С целью получения данных о размерах, форме и ориентации доменов белковой молекулы 17β-ГСД-5 из Mus musculus в растворе и поиска оптимальных условий для растворимости и кристаллизации мы оптимизировали протокол выделения и хроматографической очистки этого белка и определили структурные параметры методом МУРР. Для проверки стабильности образца использован метод динамического рассеяния света (ДРС).
УСЛОВИЯ ЭКСПЕРИМЕНТА
Создание конструкции и ее экспрессия
В работе использованы нуклеотидная последовательность гена akr1c6 и аминокислотная последовательность 17-beta-HSD5 Mus musculus (GenBank NCBI: P70694). кДНК была синтезирована и клонирована в векторе pBluescriptIISK+ фирмой GeneCust Europe (Люксембург). Для экспрессии в клетках Escherichia coli нуклеотидная последовательность гена akr1c6 была переклонирована по рестрикционным сайтам NdeI и HindIII в плазмидном векторе pET19Mod, кодирующем N-концевой 6-гистидиновый тэг (His6).
Трансформацию плазмидной ДНК pET19Mod::17β-ГСД в компетентные клетки E. сoli BL21(DE3) PlysS проводили методом теплового шока: введение 100 нг плазмиды в клетки, нагрев смеси до 42°С и охлаждение до 4°С. Клеточная культура была выращена в питательной среде LB, содержащей антибиотики, соответствующие маркерам селекции (Amp и Cm), в термошейкере при 180 об/мин и температуре 37°С до значения оптической плотности 0.6 при длине волны 600 нм (OD600). Экспрессию индуцировали 0.1 мМ изопропил-β-D-тиогалактопиранозидом (IPTG) с инкубацией клеточной суспензии при 180 об/мин и температуре 30°С в течение 3 ч. Клетки осаждали на центрифуге GYROZEN 2236R (GYROZEN, Корея) при 5000 об/мин (5394 g) в течение 20 мин и температуре 4°С. Для удаления остатков жидкой среды клетки ресуспендировали в буфере A (50 мМ Tris-HCl, pH 7.8, 300 мМ NaCl, 10% (v/v) глицерин, 2 мМ β-меркаптоэтанол) и центрифугировали в тех же условиях. Клеточную биомассу хранили при ‒80°C.
Очистка целевого белка
Для высвобождения клеточных компонентов осажденные клетки ресуспендировали в буфере А с добавлением ингибиторов протеаз Complete (PIC; Roche, Франция) и фенилметилсульфонил- фторида (PMSF), а затем лизировали на ультразвуковой установке Vibra-Cell VCX 750 (Sonics and Materials, США) при мощности 25% (5 × 30 с) и температуре 4°С. Клеточный дебрис осаждался центрифугированием в два этапа: на центрифуге GYROZEN 2236R при 22 000 об/мин (54 111 g) в течение 40 мин при 4°С и на ультрацентрифуге Hanil Ultra 5.0 (Hanil, Китай) при 30 000 об/мин (98 784 g) в течение 60 мин при 4°С. Полученный супернатант, содержащий целевой белок, собирали и использовали для выделения и очистки фермента.
На первом этапе для очистки целевого белка использовали металлохелатную аффинную хроматографию. Супернатант наносился на хроматографическую колонку, заполненную Ni-NTA Superflow (QIAGEN, Германия). За счет His6-тэга на N-конце 17β-ГСД-5 белок аффинно связывался с сорбентом и элюировался имидазолсодержащимся буфером Е (50 мМ Tris-HCl, pH 7.8, 300 мМ NaCl, 300 мМ имидазол, 10% (v/v) глицерин, 2 мМ β-меркаптоэтанол).
На втором этапе использовали эксклюзионную хроматографию на хроматографе NGC Disco-ver 10 (Bio-Rad, США) с колонкой Superdex SEC-70 (BioRad). На колонку наносили 5 мг образца в 500 мкл буфера Е и элюировали буфером R (50 мМ Tris-HCl, pH 7.8, 200 мМ NaCl, 10% (v/v) глицерин, 2 мМ β-меркаптоэтанол). Выход компонентов нанесенного образца с колонки регистрировали по оптической плотности при длине волны 280 нм.
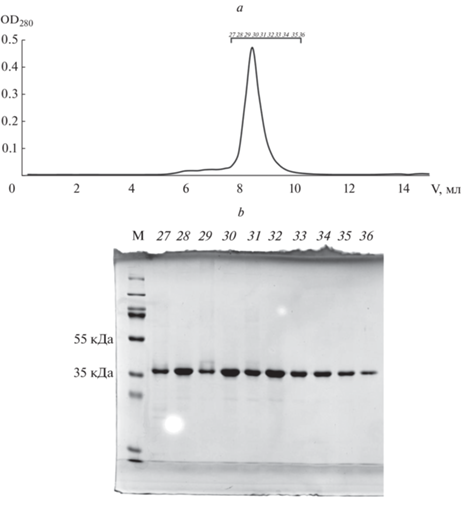
Чистоту целевого пика анализировали электрофорезом в 15%-ном полиакриламидном геле в денатурирующих условиях (SDS-PAGE) в трис-боратном буфере (25 мМ Трис-борная кислота, рН 8.3, 250 мМ глицин, 0.1% SDS), при напряжении 100–120 В (рис. 1). Фракции, содержащие высокоочищенный белок (>98%), концентрировали в пробирках Amicon® Ultra-4, 10 kDa (Merck Millipore, Германия).
Рис. 1.
Анализ чистоты целевого белка. а ‒ Профиль элюции эксклюзионной хроматографии: колонка Superdex SEC-70 (Bio-Rad, США), буфер R (50 мМ Tris-HCl, pH 7.8, 200 мМ NaCl, 10% (v/v) глицерин, 2 мМ β-меркаптоэтанол). b ‒ Электрофоретический анализ фракций основного пика на хроматограмме (а): интервал 7.75‒10.25 мл (фракции 27‒36). М – маркер молекулярной массы PageRuler™ Prestained Protein Ladder (Thermo Scientific, США).
Fig.1. Analysis of quality and purity of the target protein. a – Elution profile of exclusion chromatography: Superdex SEC-70 column (Bio-Rad, USA), buffer R (50 mM Tris-HCl, pH 7.8, 200 mM NaCl, 10% (v/v) glycerol, 2 mM β-mercaptoethanol). b – Electrophoretic analysis of the fractions of the main peak in the chromatogram (a): 7.75‒10.25 mL (27‒36 fractions). M ‒ molecular mass marker PageRuler™ Prestained Protein Ladder (Thermo Scientific, USA).
Динамическое рассеяние света (ДРС)
Cтабильность и гомогенность полученного эксклюзионной хроматографией образца 17β-ГСД-5 оценивали методом ДРС. Для анализа использовали 40 мкл белка (4 мг/мл) в буфере R в стеклянной микрокювете установки BeNano 180 Zeta Pro (Bettersize Instruments, Китай) с лазерным источником света с длиной волны 695 нм и углом рассеяния 90°, при 4°С. Число субтестов составляло 120, а время стабилизации ‒ 30 с. Измерение повторяли для образцов, которые в течение 24 выдерживали при 4 и 22°C.
Малоугловое рентгеновское рассеяние (МУРР)
МУРР хроматографически очищенного образца целевого белка с концентрацией 4.33 мг/мл в буфере R проводили на станции BL19U2 синхротрона SSRF (Shanghai Synchrotron Radiation Faci-lity, Шанхай, Китай) [16] при следующей конфигурации: длина волны 1.03 Å; расстояние образец‒детектор 2.67 м; диапазон модуля вектора рассеяния (q) 0.006‒0.456 (1/Å), где q = 4π sin(θ)/λ, 2θ ‒ угол рассеяния; размер пучка 0.33 × 0.05 мм; температура 20°C. Для каждого образца данные собирали с помощью детектора Pilatus3×2M (DECTRIS Ltd., Швейцария) при 20 последовательных экспозициях по 1 с.
Для первичной обработки данных использовали программный пакет PRIMUS [17], а для получения формы электронной плотности – программу DAMMIN [18] онлайн сервиса ATSAS [19].
РЕЗУЛЬТАТЫ И ОБСУЖДЕНИЕ
Для получения качественного образца целевого белка 17β-ГСД-5 предварительно провели эксперименты по оптимизации условий его выделения и очистки. Среди буферов с разными значениями pH и концентрациями соли наиболее оптимальным оказался буфер А. Степень чистоты и качество белка оценивали по профилю элюции эксклюзионной хроматографии и в SDS-PAGE (рис. 1).
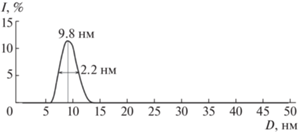
Заметим, что образец для исследования методом МУРР должен удовлетворять определенным критериям, один из которых ‒ стабильность в течение длительного времени. Для этого стабильность целевого белка предварительно оценили методом ДРС. В ходе эксперимента регистрировали автокорреляционную функцию с последующим построением графика зависимости интенсивности излучения от размера частиц (рис. 2). Измерения проводили в нескольких повторах для образцов, хранившихся в течение 24 ч при 4 и 22°C. На основании полученных результатов был сделан вывод о гомогенности и стабильности целевого белка, 17β-ГСД-5, а его диаметр составлял около 10 нм.
Рис.2.
Анализ целевого белка, 17β-ГСД-5 Mus musculus, методом динамического рассеяния света. График зависимости интенсивности излучения (I) от диаметра белка (D).
Fig.2. Analysis of the target protein, 17β-hydroxysteroid dehydrogenase type 5 (17β-HSD-5) Mus musculus, by dynamic light scattering. Graph of intensity (I) dependence on protein diameter (D).
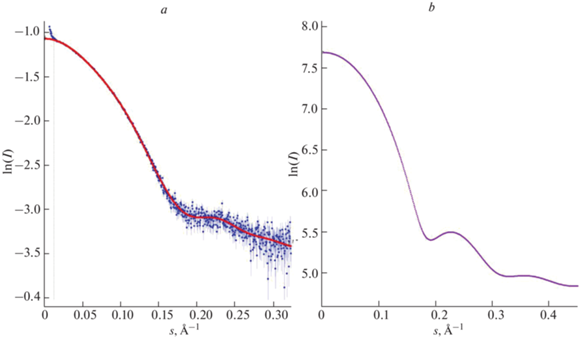
Результаты анализа белка 17β-ГСД-5 методом МУРР представлены на рис. 3. График получен в программном пакете PRIMUS по следующему алгоритму: 1) статистическое усреднение кривых от последовательных экспозиций по времени, 2) процедура вычитания сигнала от буфера для получения информации только о белке.
Рис. 3.
Анализ белка 17β-ГСД-5 методом малоуглового рентгеновского рассеяния. a ‒ Экспериментально полученная зависимость интенсивности МУРР от модуля волнового вектора рассеяния (s). Синие точки соответствуют экспериментальным данным, красная линия – аппроксимации, полученной в программном пакете PRIMUS (GNOM). При анализе данных не учитывали область малых углов (вертикальная штриховая линия), где оказывают влияние большие агрегаты с размерами, выходящими за область разрешения метода МУРР. b ‒ Полученная в программном пакете CRYSOL in silico та же зависимость: МУРР-анализ на расчетной структуре белка 17β-ГСД-5 Mus musculus из AlphaFold.
Fig. 3. Analysis of 17β-HSD-5 protein by small-angle X-ray scattering (SAXS). a ‒ Experimentally obtained dependence of the SAXS intensity on the scattering wave vector modulus (s). Blue points correspond to experimental data, red line does to the approximation obtained in the PRIMUS program package (GNOM). When analyzing the data, we did not take into account the region of small angles (vertical dashed line), where large aggregates with sizes beyond the resolution region of the SAXS method have an influence. b ‒ The same dependence obtained in silico in the CRYSOL software package: SAXS- analysis on the calculated structure of 17β-HSD-5 protein from AlphaFold.
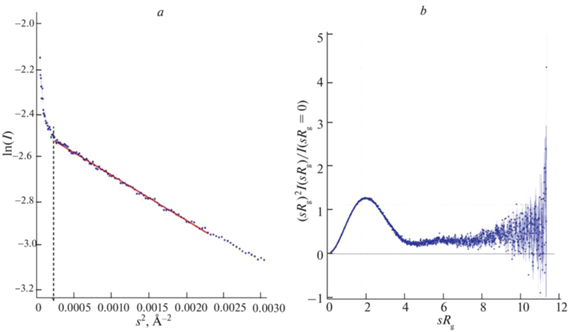
Для определения структурных инвариантов проведен анализ областей Гинье и Кратки, графики которых представлены на рис. 4. Аппроксимация Гинье имеет линейную зависимость, за исключением области самых малых углов. Это свидетельствует о том, что образец преимущественно монодисперсен, но при этом содержит немного агрегатов. График Кратки имеет куполообразный вид, а сравнение с точкой {sqrt(3), 1.104} свидетельствует об анизотропной форме белка [20]. Эти данные позволяют производить дальнейшие вычисления в приближении сферической молекулы. Из расчетов следует, что радиус гирации (Rg) фермента составляет 24.83 ± 0.08 Å; объем (V), по инварианту Порода, 56 573 Å3; молекулярная масса (Mr) 34.2 ± 5.0 кДа, что близко значению Mr 17β-ГСД-5, рассчитанной по аминокислотной последовательности, – 39.227 кДа.
Рис. 4.
Построения для определения инвариантов фермента 17β-ГСД-5. а ‒ Аппроксимация Гинье. При анализе данных не учитывали область малых углов (вертикальная штриховая линия), где оказывают влияние большие агрегаты с размерами, выходящими за область разрешения метода МУРР. b ‒ График Кратки.
Fig. 4. Plots for determination of 17β-HSD-5 invariants. а ‒ Guinier approximation. Data analysis did not take into account the small angle region (vertical dashed line), where large aggregates with sizes beyond the resolution region of the SAXS method are influenced. b ‒ Kratky plot.
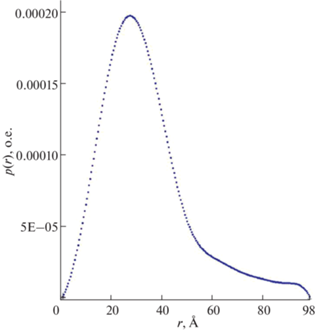
На основе полученных данных в программе CNOM [21] была построена парная функция распределения по расстояниям (рис. 5), максимальный диаметр (Dmax) которой составлял 98 Å (общая оценка качества 0.53). Этот график имеет куполообразный вид ‒ это значит, что белок структурирован, имеет слегка вытянутую глобулярную (эллипсообразную) форму.
Рис. 5.
Функция распределения электронных пар по расстояниям для белка 17β-ГСД-5 Mus musculus.
Fig. 5. Electron pair distance distribution function for Mus musculus 17β-HSD-5 .
Для восстановления формы электронной плотности исследуемого белка был использован ab initio метод, который основан на поиске глобального минимума (метод “имитации отжига”). Метод был предложен P. Chacón и др. [22]. Расчет формы электронной плотности проведен в программном пакете DAMMIN. Значение качества приближения модели (χ2) составляет 1.369. Для интерпретации полученных данных сопоставили структуры рассчитанной электронной плотности и предсказанной по аминокислотной последовательности 17β-ГСД-5 из базы данных AlphaFold (https://alphafold.ebi.ac.uk) [23] (рис. 6). Для графического отображения и визуализации структур была использована программа ChimeraX [24]. Стоит отметить, что радиус гирации (Rg), рассчитанный из in silico эксперимента МУРР в программном пакете CRYSOL [25] на модели белка 17β-ГСД-5 из AlphaFold, равен 20.3 Å, а максимальный диаметр (Dmax) ‒ 84.41 Å. Различия в инвариантах свидетельствуют о вероятных неточностях в структуре белка из базы AlphaFold. Следовательно, необходимо проведение исследования структуры белка 17β-ГСД-5 Mus musculus с атомарным разрешением методом рентгеноструктурного анализа.
Рис. 6.
Первичная и третичная структуры белка 17β-ГСД-5 Mus musculus. а ‒ Аминокислотная последовательность синтезированного белка, на которой серым фоном выделен участок с 6-гистидиновым тэгом. b ‒ Сопоставление структуры 17β-ГСД-5 Mus musculus, полученной в программном пакете AlphaFold2, и электронной плотности, полученной методом МУРР в программе ChimeraX.
Fig. 6. Primary and 3D-structures for Mus musculus 17β-HSD-5 protein. а ‒ Amino acid sequence of the synthesized protein, wherein the region with the 6-histidine tag is highlighted in gray. b ‒ Comparison of 17β-HSD-5 structure obtained in the AlphaFold2 software package and electron density obtained by the SAXS method in the ChimeraX software.
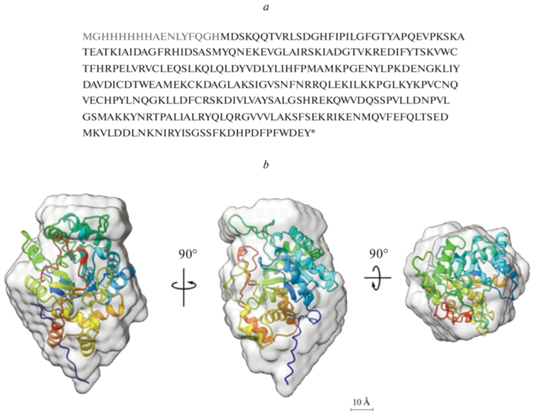
Сопоставление предсказанной структуры белка 17β-ГСД-5 Mus musculus и полученной методом МУРР электронной плотности, а также ряд расчетных параметров (инвариантов) позволяют сделать вывод, что в растворе белок находится в виде мономера. А по распределению электронной плотности, по результатам МУРР-анализа, можно заключить, что фермент не имеет неструктурированных участков, которые могут препятствовать его кристаллизации ‒ с целью получения образцов для высокоразрешающего рентгеноструктурного анализа.
В рамках данной работы нами подобраны и оптимизированы условия экспрессии и очистки белка 17β-ГСД-5 Mus musculus, оптимизирован состав буфера, в котором очищенный образец стабилен в течение 24 ч при 4°С и 22°С. Стабильность очищенного белка подтверждена методом ДРС. На основе данных МУРР-анализа рассчитаны структурные инварианты и построено распределение электронной плотности белка. На основании полученных результатов сделан вывод, что фермент 17β-ГСД-5 Mus musculus в растворе находится преимущественно в виде мономера, имеет компактную форму и на его поверхности нет неструктурированных участков. Таким образом, описанный здесь протокол выделения и очистки белка 17β-ГСД-5 Mus musculus может быть использован для получения кристаллической формы этого фермента и исследования его структуры методом рентгеноструктурного анализа.
Список литературы
Hilborn E., Stål O., Jansson A. Estrogen and androgen-converting enzymes 17β-hydroxysteroid dehydrogenase and their involvement in cancer: with a special focus on 17β-hydroxysteroid dehydrogenase type 1, 2, and breast cancer. Oncotarget, 2017, 8, 30552‒30562. https://doi.org/10.18632/oncotarget.15547
Brereton P., Suzuki T., Sasano H., Li K., Duarte C., Obeyesekere V., Haeseleer F., Palczewski K., Smith I., Komesaroff P., Krozowski Z. Pan1b (17βHSD11)-enzymatic activity and distribution in the lung. Mol. Cell. Endocrinol., 2001, 22, 111‒117. https://doi.org/10.1016/s0303-7207(00)00417-2
He X.Y., Merz G., Mehta P., Schulz H., Yang S.Y. Human brain short chain L-3-hydroxyacyl coenzyme A dehydrogenase is a single-domain multifunctional enzyme. Characterization of a novel 17beta-hydroxysteroid dehydrogenase. J. Biol. Chem., 1999, 274, 15014‒15019. https://doi.org/10.1074/jbc.274.21.15014
Krazeisen A., Breitling R., Imai K., Fritz S., Möller G., Adamski J. Determination of cDNA, gene structure and chromosomal localization of the novel human 17beta-hydroxysteroid dehydrogenase type 7(1). FEBS Lett., 1999, 29, 373‒379. https://doi.org/10.1016/s0014-5793(99)01366-6
Dufort I., Rheault P., Huang X.F., Soucy P., Luu-The V. Characteristics of a Highly Labile Human Type 5 17β-Hydroxysteroid Dehydrogenase. Endocrinology, 1999, 140, 568–574. https://doi.org/10.1210/endo.140.2.6531
Li K.X., Smith R.E., Krozowski Z.S. Cloning and expression of a novel tissue specific 17β-hydroxysteroid dehydrogenase. Endocr. Res., 1998, 24, 663‒667. https://doi.org/10.3109/07435809809032667
Biswas M.G., Russell D.W. Expression cloning and characterization of oxidative 17β- and 3α-hydroxy-steroid dehydrogenases from rat and human prostate. J. Biol. Chem., 1997, 272, 15959‒15966. https://doi.org/10.1074/jbc.272.25.15959
Geissler W.M., Davis D.L., Wu L., Bradshaw K.D., Patel S., Mendonca B.B., Elliston K.O., Wilson J.D., Russell D.W., Andersson S. Male pseudohermaphroditism caused by mutations of testicular 17 beta-hydroxysteroid dehydrogenase 3. Nat. Genet., 1994, 7, 34‒39. https://doi.org/10.1038/ng0594-34
Wu L., Einstein M., Geissler W.M., Chan H.K., Elliston K.O., Andersson S. Expression cloning and characterization of human 17 beta-hydroxysteroid dehydrogenase type 2, a microsomal enzyme possessing 20 alpha-hydroxysteroid dehydrogenase activity. J. Biol. Chem., 1993, 268, 12964‒12969.
Luu The V., Labrie C., Zhao H.F., Couët J., Lachance Y., Simard J., Leblanc G., Côté J., Bérubé D., Gagné R., Labrie F. Characterization of cDNAs for human estradiol 17 beta-dehydrogenase and assignment of the gene to chromosome 17: evidence of two mRNA species with distinct 5'-termini in human placenta. Mol. Endocrinol., 1989, 3(8), 1301‒1309. https://doi.org/10.1210/mend-3-8-1301
Zhou M., Qiu W., Chang H.J., Gangloff A., Lin S.X. Purification, crystallization and preliminary X-ray diffraction results of human 17beta-hydroxysteroid dehydrogenase type 5. Acta Crystallogr. D Biol. Crystallogr., 2002, 58, 1048‒1050. https://doi.org/10.1107/s0907444902005255
Dimitrakakis C., Bondy C. Androgens and the breast. Breast Cancer Res., 2009, 11, 212. https://doi.org/10.1186/bcr2413
Молашенко Н.В., Калинченко Н.Ю., Иоутси В.А., Гуринович О.С., Бабаева Д.М., Вознесенская А.А., Платонова Н.М., Юкина М.Ю., Колодкина А.А., Пономарева Т.А. Случай дефицита 17β-гидроксистероиддегидрогеназы 3-го типа в практике взрослого эндокринолога. Ожирение и метаболизм, 2023, 20, 73‒83. https://doi.org/10.14341/omet12942
Luu-The V. Analysis and characteristics of multiple types of human 17beta-hydroxysteroid dehydrogenase. J. Steroid. Biochem. Mol. Biol., 2001, 76, 143‒151. https://doi.org/10.1016/s0960-0760(00)00155-2
Luu-The V., Dufort I., Pelletier G., Labrie F. Type 5 17beta-hydroxysteroid dehydrogenase: its role in the formation of androgens in women. Mol. Cell Endocrinol., 2001, 171, 77‒72. https://doi.org/10.1016/s0303-7207(00)00425-1
Yiwen L., Guang-Feng Liu, Hong-Jin Wu, Ping Zhou, Chun-Xia Hong, Na Li, Fenggang Bian. BL19U2: Small-angle X-ray scattering beamline for biological macromolecules in solution at SSRF. Nucl. Sci. Tech., 2020, 31, 117. https://doi.org/10.1007/s41365-020-00825-3
Konarev P.V., Volkov V.V., Sokolova A.V., Koch M.H.J., Svergun D.I. PRIMUS: a Windows PC-based system for small-angle scattering data analysis. J. Appl. Cryst., 2003, 36, 1277‒1282. https://doi.org/10.1107/S0021889803012779
Svergun D.I. Restoring low resolution structure of biological macromolecules from solution scattering using simulated annealing. Biophys. J., 1999, 76, 2879‒2886. https://doi.org/10.1016/S0006-3495(99)77443-6
Franke D., Petoukhov M.V., Konarev P.V., Panjkovich A., Tuukkanen A., Mertens H.D.T., Kikhney A.G., Hajizadeh N.R., Franklin J.M., Jeffries C.M., Svergun D.I. ATSAS 2.8: a comprehensive data analysis suite for small-angle scattering from macromolecular solutions. J. Appl. Crystallogr., 2017, 50, 1212‒1225. https://doi.org/10.1107/S1600576717007786
Brennich M., Pernot P., Round A. How to analyze and present SAS data for publication. Adv. Exp. Med. Biol., 2017, 1009, 47‒64. https://doi.org/10.1007/978-981-10-6038-0_4
Svergun D.I. Determination of the regularization parameter in indirect-transform methods using perceptual criteria. J. Appl. Cryst., 1992, 25, 495–503. https://doi.org/10.1107/S0021889892001663
Chacón P., Morán F., Díaz J.F., Pantos E., Andreu J.M. Low-resolution structures of proteins in solution retrieved from X-ray scattering with a genetic algorithm. Biophys. J., 1998, 74, 2760‒2775. https://doi.org/10.1016/S0006-3495(98)77984-6
Varadi M., Anyango S., Deshpande M., Nair S., Natassia C., Yordanova G., Yuan D., Stroe O., Wood G., Laydon A., Žídek A., Green T., Tunyasuvunakool K., Petersen S., Jumper J., Clancy E., Green R., Vora A., Lutfi M., Figurnov M., Cowie A., Hobbs N., Kohli P., Kleywegt G., Birney E., Hassabis D., Velankar S. AlphaFold Protein Structure Database: massively expanding the structural coverage of protein-sequence space with high-accuracy models. Nucleic Acids Res., 2022, 50, D439‒D444. https://doi.org/10.1093/nar/gkab1061
Pettersen E.F., Goddard T.D., Huang C.C., Meng E.C., Couch G.S., Croll T.I., Morris J.H., Ferrin T.E. UCSF ChimeraX: structure visualization for researchers, educators, and developers. Protein Sci., 2021, 30, 70‒82. https://doi.org/10.1002/pro.3943
Svergun D.I., Barberato C., Koch M.H.J. CRYSOL – a program to evaluate X-ray solution scattering of biological macromolecules from atomic coordinates. J. Appl. Cryst., 1995, 28, 768‒773. https://doi.org/10.1107/S1600576717007786
Дополнительные материалы отсутствуют.


 Пн.-пт.: 10.00-19.00