

Биотехнология, 2024, T. 40, № 6, стр. 74-83
Снижение экспрессии гена ELOVL5 изменяет механизм ферроптоза в клетках рака молочной железы MDA-MB-231
А. В. Разумовская 1, Т. А. Кулагин 1, А. А. Фаткулин 1, М. О. Силкина 1, Д. М. Ольховик 1, С. В. Никулин 1, *
1 Национальный исследовательский университет “Высшая школа экономики”
101000 Москва, Россия
* E-mail: snikulin@hse.ru
Поступила в редакцию 17.10.2024
После доработки 27.10.2024
Принята к публикации 18.11.2024
Аннотация
На сегодняшний день рак молочной железы (РМЖ) является наиболее распространенной онкологической патологией среди женского населения как России, так и всего мира. Ранее в нашей лаборатории был выявлен значимый прогностический маркер РМЖ, а именно ген ELOVL5, уровень экспрессии которого в паре с геном IGFBP6 позволял предсказывать вероятность развития рецидива РМЖ в течение первых 5 лет наблюдения с высокой чувствительностью (82.0%) и специфичностью (62.5%). Сниженная экспрессия этих генов в опухолевой ткани соответствовала неблагоприятному прогнозу. Ген ELOVL5 человека кодирует элонгазу длинноцепочечных полиненасыщенных жирных кислот (ДПНЖК), употребление которых часто связывают с противоопухолевой активностью, обусловленной в том числе индукцией ферроптотической гибели клеток, ассоциированной с ускоренным перекисным окислением внутриклеточных липидов. Активация ферроптоза, альтернативного пути запрограммированной клеточной гибели, считается многообещающим подходом к преодолению лекарственной устойчивости опухолевых клеток. Здесь нами детально изучены изменения динамики ферроптотической гибели, а также транскриптомного профиля клеток РМЖ при снижении экспрессии гена ELOVL5.
На сегодняшний день лидирующую позицию в структуре заболеваемости и смертности женщин от злокачественных заболеваний как в России, так и в мире занимает рак молочной железы (РМЖ) [1, 2], рецидив которого по статистике развивается у 40% пациентов [3]. Несмотря на последние достижения в области диагностики и терапии, РМЖ по-прежнему остается крайне агрессивной опухолью с неблагоприятным прогнозом, что нередко связано с формированием у опухолевых клеток устойчивости к некоторым химиотерапевтическим препаратам с апоптотическим действием, стандартно применяемым в клинической практике [4]. Таким образом, актуальной задачей биомедицины становится изучение альтернативных форм гибели клеток, что позволит не только преодолеть резистентность к химиотерапии, но и выявить новые биомаркеры и терапевтические мишени для улучшения системы прогнозирования РМЖ.
Ранее в нашей лаборатории был разработан собственный генный классификатор, для построения которого использовали новый подход. В этом классификаторе учитывали не только гены, дифференциальная экспрессия которых была статистически значима между группами с благоприятным и неблагоприятным прогнозами, но и те, экспрессия которых в среднем значимо не различалась. В результате проведенного анализа была выявлена наиболее информативная пара генов-маркеров ‒ ELOVL5-IGFBP6. Их уровень экспрессии позволял предсказать вероятность рецидива РМЖ в первые 5 лет наблюдения пациента с высокой чувствительностью (82.0%) и специфичностью (62.5%), а их низкая экспрессия в опухолевой ткани коррелировала с неблагоприятным прогнозом [5].
Белок ELOVL5 человека ‒ это элонгаза длинных полиненасыщенных жирных кислот (ДПНЖК), которая локализуется в мембране эндоплазматического ретикулума и регулирует удлинение цепи незаменимых для человека полиненасыщенных омега-3 и омега-6 (С18 и С20) жирных кислот [6, 7]. Кроме того, это фермент принимает непосредственное участие в биосинтезе мононенасыщенных жирных кислот [8]. Во многих исследованиях последних лет показано, что экспрессия гена ELOVL5 ассоциирована с возникновением и развитием различных онкологических заболеваний [9‒11]. В частности, недавно нами обнаружено, что злокачественные опухоли молочной железы со сниженной экспрессией гена ELOVL5 метастазируют с большей вероятностью из-за более эффективной инвазии опухолевых клеток [12]. Однако большинство актуальных научных работ, посвященных изучению взаимосвязи ELOVL5 с неопластической трансформацией, фокусируются не столько на самом ферменте, сколько на влиянии продуктов его катализа – омега-3 и омега-6 ДПНЖК – на процессы в опухолевых клетках. Известно, что добавление омега-3 ДПНЖК в культуральную среду может подавлять пролиферацию, миграцию и инвазию опухолевых клеток [13–15], в том числе посредством индукции в клетках ферроптоза – альтернативного пути запрограммированной клеточной смерти [16, 17], что может быть использовано для разработки новых подходов к терапии.
Ферроптозом называют железозависимый не-апоптотический путь гибели клеток, не имеющий морфологических признаков типичного апоптоза или аутофагии, который характеризуется накоплением липид-реактивных форм кислорода [18]. Роль ДПНЖК при ферроптозе заключается в инициировании цитотоксического действия, основанного на быстрой цепной реакции перекисного окисления мембранных фосфолипидов, катализируемой ионами железа, что приводит к нарушению целостности клеток [19]. Накопленные в литературе данные позволяют судить о наличии различных регуляторных механизмов ферроптоза, важнейшие из которых ассоциированы с метаболизм липидов, аккумулированием в клетке ионов железа, функционированием антипортера аминокислот ‒ Xc‒ системы, участвующей в метаболическом пути синтеза глутатиона, ‒ а также с работой мевалонатного (MVA) пути и митохондриальной активностью, в частности трансмембранных каналов митохондрий VDACs [20, 21]. Важно отметить, что внедряемые в настоящий момент в клиническую практику индукторы ферроптоза чаще всего специфично нацелены на ключевых участников регуляторных путей, перечисленных выше. Например, одним из таких классических индукторов ферроптоза, постепенно находящих свое применение в медицинской практике, является эрастин, действие которого направлено на подавление транскрипции субъединицы SLC7A11 ‒ компонента транспортной Xc‒ системы, ‒ что приводит к ингибированию поглощения цистина [21, 22]. Дефицит в клетке цистина, в свою очередь, ведет к нарушению синтеза глутатиона, ключевого внутриклеточного антиоксиданта, в результате чего снижается активность глутатионпероксидазы GPx4 и, как следствие, антиоксидантный потенциал клеток. Последнее непременно влечет за собой накопление в клетках кислородных радикалов и индукцию ферроптоза [23]. Кроме того, анионселективные каналы VDAC2/3 митохондрий служат еще одной мишенью эрастина, который вызывает митохондриальную дисфункцию, приводящую к интенсивному выделению активных форм кислорода (АФК), инициирующих ферроптотическую гибель клеток [21, 22]. Действие, обратное эрастину, оказывает ингибитор ферроптоза – ферростатин-1, который выступает в роли “ловушки” АФК, предотвращая их взаимодействие с мембранными липидами и образование токсичных продуктов перекисного окисления липидов [24].
Известно, что устойчивые к апоптозу опухолевые клетки могут быть чувствительны к ферроптозу [25]. В связи с этим индукцию ферроптоза рассматривают в качестве перспективного подхода к преодолению множественной лекарственной устойчивости раковых клеток [26]. В то же время, как упомянуто выше, биомаркер РМЖ ELOVL5 катализирует реакции биосинтеза ДПНЖК, то есть непосредственных участников процесса перекисного окисления липидов, влекущего за собой индукцию ферроптотической гибели. Более того, недавно нами показано, что снижение экспрессии гена ELOVL5 в клетках РМЖ повышает их чувствительность к индукции ферроптоза [27]. Основываясь на вышеперечисленных фактах, мы провели детальное исследование динамики процесса ферроптоза, а также транскриптомного профиля клеток РМЖ с различной экспрессией гена ELOVL5 в ответ на индукцию ферроптоза. Понимание особенностей механизма ферроптотической гибели клеток может стать ключом к разработке новых эффективных схем противоопухолевой терапии РМЖ с низкой экспрессией гена ELOVL5 в опухолевой ткани.
УСЛОВИЯ ЭКСПЕРИМЕНТА
Реагенты
В работе были использованы следующие материалы: культуральная среда DMEM high glucose, фетальная сыворотка крупного рогатого скота (FBS), раствор антибиотика-антимикотика ×100, раствор Glutamax ×100, трипановый синий 0.4% (все препараты производства Gibco, США); фосфатно-солевой буфер Дульбекко (DPBS) и трипсин-ЭДТА 0.25% с солями Хенкса (“ПанЭко”, Россия); диметилсульфоксид (DMSO), эрастин (≥98% HPLC), хлороформ (≥99%), абсолютный этанол (Sigma, США); раствор для лизиса QIAzol, miRNeasy Micro Kit (QIAGEN, Германия); стерильная вода, свободная от нуклеаз (“Евроген”, Россия); MGIEasy RNA Library Prep Set, MGIEasy rRNA Depletion Kit V1.2 (MGI Tech Co., Китай); культуральные 24- и 96-луночные планшеты с плоским дном, серологические пипетки объемом 5, 10 и 25 мл (TPP, Швейцария); пластиковые микропробирки и наконечники для пипеток (Axy-gen Scientific Inc., США); одно- и многоканальные пипетки различных объемов (Eppendorf, Германия), 96-луночные планшеты для ПЦР (Nest, Китай); гидрофильные фильтры 0.22 мкм для шприца (Thermo Fisher Scientific, США), шприцы 20 мл с иглой (SFM, Германия).
Культивирование клеток MDA-MB-231
В качестве in vitro модели РМЖ использовали клеточную линию MDA-MB-231. Стабильный нокдаун гена ELOVL5 в клетках MDA-MB-231 (sh-ELOVL5) был получен ранее с использованием технологии РНК-интерференции [28, 29]. Для получения контрольных клеток MDA-MB-231 (sh-LUC) использовали лентивирусный вектор pLVX-shRNA1, содержащий shРНК к гену люциферазы Photinus pyralis. После разморозки клетки культивировали в полной питательной среде, состоящей из базовой DMEM high glucose (4.5 г/л) с добавлением 10% об. FBS, 1% об. раствора Glutamax, 1% об. раствора антибиотика-антимикотика. Флаконы с клетками помещали в CO2-инкубатор MCO-18AC (Sanyo, Япония), поддерживающий температуру 37°С и концентрацию CO2 в воздухе на уровне 5%. Пересев клеток проводили каждые 3 сут с использованием раствора трипсин-ЭДТА по стандартному протоколу. Клетки подсчитывали после окраски трипановым синим при помощи автоматического счетчика Countess (Invitrogen, США) согласно протоколу производителя. Динамику роста клеток оценивали визуально при помощи инвертированного микроскопа Axio Observer Z1 (Carl Zeiss, Германия).
Анализ кинетики ферроптоза
Для мониторинга клеточной гибели в результате воздействия целевых препаратов контрольную линию клеток MDA-MB-231 (sh-LUC) и линию MDA-MB-231 с нокдауном гена ELOVL5 (sh-ELOVL5) рассаживали в 96-луночный планшет по 5 × 10³ клеток в лунку и инкубировали в течение 24 ч (37°С, 5% CO2). Через 24 ч культуральную среду заменяли на контрольную с добавлением 0.5% об. DMSO (контрольная группа) и на среду, содержащую 5 мкМ эрастин или 0.5 мкМ ферростатин-1, или их комбинацию. Для изучения динамики ферроптоза использовали систему IncuCyte® S3 Live Cell Analysis (Sartorius, США). Клетки инкубировали с препаратами при 37°С и 5% CO2 в течение 48 ч; изменения конфлюентности с течением времени контролировали с помощью программного обеспечения системы IncuCyte. Все эксперименты проводили в пяти повторах.
РНК-секвенирование
Тотальную РНК для приготовления библиотеки и последующего секвенирования выделяли из двух клеточных линий MDA-MB-231: контрольной (sh-LUC) и с нокдауном гена ELOVL5 (sh-ELOVL5) ‒ c помощью набора miRNeasy Micro Kit (QIAGEN) по протоколу производителя. Для этого предварительно клетки рассевали в 6-луночные планшеты (8 × 10⁵/лунка) и культивировали при 37°С и 5% CO2 в DMEM high glucose (4.5 г/л) в течение 24 ч, после чего культуральную среду заменяли на среду, содержащую 5 мкМ эрастин, и контрольную среду с добавлением 0.5% об. DMSO; обе клеточные линии инкубировали с препаратами сутки. Через 24 ч планшеты промывали дважды DPBS и лизировали клетки в 700 мкл QIAzol Lysis Reagent (QIAGEN). Эксперимент проводили в трех повторах. Концентрацию выделенной РНК оценивали с использованием спектрофотометра NanoDrop-1000 (Thermo Fisher Scientific).
Для контроля качества выделенной из образцов тотальной РНК использовали биоанализатор Agilent 2100 (Agilent Technologies, США). Критерием целостности РНК служило значение RIN (RNA integrity number) ≥ 7. Дополнительно измеряли количество РНК с помощью Qubit 4 Fluorometer (Thermo Fisher Scientific). Для приготовления библиотеки для секвенирования отбирали 200 нг тотальной РНК. На первом шаге проводили истощение рибосомной РНК (рРНК) и остаточной ДНК, содержащихся в образцах, а также очистку РНК магнитными частицами с помощью набора MGIEasy rRNA Depletion Kit V1.2 (MGI Tech Co.) согласно протоколу производителя. Дальнейшие операции для подготовки библиотеки проводили с использованием набора MGIEasy RNA Library Prep Set (MGI Tech Co.). Полученные ДНК-фрагменты сначала денатурировали, а затем проводили их циркуляризацию ‒ для последующей амплификации по типу “катящегося кольца” (rolling circle amplification, RCA). Секвенирование полученной библиотеки ДНК в виде наношариков выполняли с использованием прибора DNBSEQ-G50 (MGI Tech Co.) в соответствии с инструкциями производителя.
Биоинформатический анализ транскриптомных данных
Биоинформатический анализ полученных результатов проводили согласно опубликованной ранее методике [30]. Качество файлов FASTQ оценивали с помощью FastQC v.0.11.9 и multiQC v.1.9 [31]. Адаптеры были обработаны программой Cutadapt v.4.4 [32]. Итоговые прочитанные фрагменты наносили на референсный геном человека GENCODE v.37 с помощью STAR 2.7.7a [33]. Для создания матрицы, содержащей число прочитанных фрагментов для каждого гена, использовали геномную аннотацию GENCODE v.37 [34] и инструмент featureCount из ssubread-2.0.1 aligner [35].
Для анализа дифференциальной экспрессии генов использовали пакет DESeq2 языка программирования R [36]. В каждой клеточной линии дифференциальную экспрессию генов оценивали для групп, обработанных препаратом, относительно контрольной группы. Гены с изменением уровня экспрессии более чем в 1.5 раза и скорректированным p-value < 0.05 (padj) считали дифференциально экспрессированными. Значения теста Вальда, полученные в результате анализа, использовали в качестве рангов генов для последующего анализа обогащенности наборов генов (GSEA) [37]. GSEA выполняли с использованием пакета fgsea для R, при этом наборы генов Hallmark были взяты из базы данных MSigDB [38, 39].
РЕЗУЛЬТАТЫ И ОБСУЖДЕНИЕ
Для изучения кинетики ферроптоза в контрольной клеточной линии MDA-MB-231 (sh-LUC) и клеточной линии с нокдауном гена ELOVL5 (sh- ELOVL5) использовали систему анализа живых клеток IncuCyte® S3 (Sartorius). Клетки обрабатывали индуктором ферроптоза эрастином (5 мкМ) или ингибитором ферроптоза ферростатином-1 (0.5 мкМ), а также их комбинацией и инкубировали в течение 48 ч. Динамику ферроптотической гибели клеток оценивали по изменению скорости роста или конфлюентности с помощью программного обеспечения системы IncuCyte (рис. 1).
Рис. 1.
Динамика ферроптоза в клетках рака молочной железы MDA-MB-231. а ‒ Мониторинг в реальном времени ферроптотической гибели контрольных (sh-LUC) и нокаутированных (sh-ELOVL5) клеток MDA-MB-231 с использованием системы анализа живых клеток IncuCyte® S3 (Sartorius, США). Клетки, обработанные 5 мкМ эрастином и/или 0.5 мкМ ферростатином-1, инкубировали в течение 48 ч. Эксперимент проводили трижды с пятью техническими повторами в каждом. b ‒ Микрофотографии клеток MDA-MB-231 через 24 ч инкубации с препаратами. Длина масштабного отрезка – 400 мкм.
Fig. 1. Dynamics of ferroptosis in MDA-MB-231 breast cancer cells. a ‒ Real-time monitoring of ferroptotic cell death in control (sh-LUC) and knockout (sh-ELOVL5) MDA-MB-231 cells using the IncuCyte® S3 Live Cell Assay System (Sartorius, USA). Cells treated with 5 μM erastin and/or 0.5 μM ferrostatin-1 were incubated for 48 h. The experiment was performed three times with five technical replicates in each. b ‒ Photomicrographs of MDA-MB-231 cells after 24 h of incubation with the drugs. Scale bars is 400 μm.
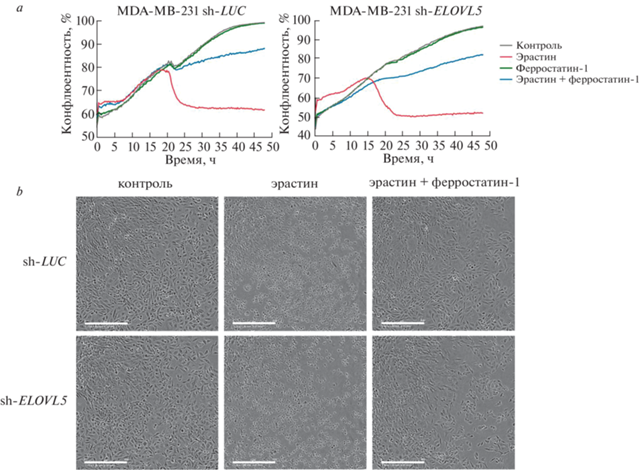
На основании представленных результатов видно, что эрастин эффективно подавлял пролиферацию обеих клеточных линий; при этом в клетках со сниженной экспрессией ELOVL5 этот эффект регистрировали уже через 16 ч ‒ на 5 ч раньше, чем в контрольной линии (рис. 1а). Эффективность ферростатина-1 как ингибитора ферроптоза, индуцированного эрастином, была неодинаковой в исследуемых клеточных линиях. Так, в клетках с нокдауном ELOVL5 ферростатин-1 работал с некоторым временным отставанием по сравнению с контрольными клетками; при этом полностью ингибировать эффект эрастина ни в том, ни в другом случае не удалось. Таким образом, полученные данные, по-видимому, свидетельствуют о различиях в ответе рассматриваемых клеточных линий MDA-MB-231 на ферроптоз, индуцируемый эрастином.
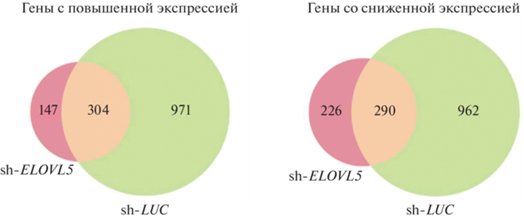
Далее для более глубокого понимания особенностей механизма ферроптотической гибели мы проанализировали влияние нокдауна гена ELOVL5 на изменение транскриптома клеток MDA-MB-231 под действием эрастина. В результате анализа дифференциальной экспрессии генов обнаружено, что в клетках MDA-MB-231 sh-ELOVL5, обработанных эрастином в течение 24 ч, экспрессия 451 гена повысилась, а 516 понизилась по сравнению с теми же клетками без индуктора ферроптоза (рис. 2). В то же время в контрольных клетках MDA-MB-231 sh-LUC под действием эрастина изменили экспрессию 1275 и 1252 гена: их уровни были соответственно выше и ниже контроля. Наиболее дифференциально экспрессированные гены представлены в табл. S1‒S4 (см. Дополнительные материалы). Примечательно, что в ответ клеток линии sh-LUC на действие эрастина вовлечено значительно больше генов, чем в клетках с нокаутом ELOVL5.
Рис. 2.
Диаграммы Венна, на которых показано общее число дифференциально экспрессируемых генов в клеточных линиях sh-LUC и sh-ELOVL5 MDA-MB-231 после обработки эрастином (5 мкМ, 24 ч) относительно соответствующих контрольных клеток.
Fig. 2. Venn diagrams showing the total number of differentially expressed genes in sh-LUC and sh-ELOVL5 MDA-MB-231 cell lines after erastin treatment (5 μM, 24 h) relative to the corresponding control cells.
В контрольной клеточной линии MDA-MB-231 sh-LUC обработка эрастином привела к значительному повышению экспрессии генов, участвующих в ответе на клеточный стресс, таких как HMOX1, который кодирует гемоксигеназу-1, и генов белков семейства теплового шока (HSPA1A, HSPA1B, HSPA6). Также повышенной оказалась экспрессия генов, связанных с регуляцией транскрипции, включая ATF3 и FOS (табл. S1 , Дополнительные материалы). Кроме того, выявлено усиление экспрессии SEMA4A и TNFSF9, продукты которых регулируют соответственно цитоскелет и различные внутриклеточные сигнальные пути. В то же время в этих клетках снизилась экспрессиия генов, которые связаны с процессами регуляции транскрипции и клеточного цикла, в том числе BCL3 и ID1 (табл. S2 , Дополнительные материалы). Понижение экспрессии также затрагивало гены, вовлеченные в метаболические процессы и структурные компоненты клетки, такие как LIPG и P2RY6.
В клетках MDA-MB-231 sh-ELOVL5 после обработки эрастином также изменилась экспрессия ряда генов (табл. S3 и S4 , Дополнительные материалы). Так, повысилась экспрессии генов белков теплового шока, включая HSPA6 и HSPA1A, ‒ аналогично ответу клеток sh-LUC. Однако в обработанной эрастином линии sh-ELOVL5 произошли и уникальные изменения траскриптома (табл. S5 и S6 , Дополнительные материалы). Это значительное усиление экспрессия гена EPB41L3, участвующего в поддержании клеточной адгезии и структурной целостности, а также гена FTH1 тяжелой цепи ферритина (табл. S3 , Дополнительные материалы). В контрольной клеточной линии значимых изменений в экспрессии этих генов не выявлено. Ферритин представляет собой сложный белковый комплекс (железопротеид), выполняющий роль основного внутриклеточного депо ионов Fe2+, катализирующих реакцию Фентона для генерации АФК [20]. Примечательно, что усиленная регуляция экспрессии тяжелой цепи ферритина позволяет ингибировать ферроптоз, вызванный эрастином [40]. Вероятно, такое усиление экспрессии FTH1 в клетках со сниженной экспрессией маркерного гена направлено на поддержание гомеостаза ионов внутриклеточного железа и предоставляет дополнительную опцию для защиты от ферроптоза, к которому клетки с нокдауном ELOVL5 оказались более чувствительными по сравнению с контрольной линией MDA-MB-231. При этом экспрессия генов, связанных с внеклеточным матриксом и адгезией, таких как COL18A1 и COL6A2, а также генов, участвующие в транспортных процессах ‒ например, LRP3 и SLC47A1, ‒ снизилась после инкубации с эрастином в клетках sh-ELOVL5 по сравнению с таковой в клетках sh-LUC (табл. S6 , Дополнительные материалы).
Интересно, что обработка эрастином приводила также к повышению экспрессии гена SLC7A11, кодирующего субъединицу SLC7A11 описанного ранее антитранспортера [20–22], в 5.25 раз (padj = 1.5 × 10‒29) в клетках с sh-ELOVL5 (табл. S3 , Дополнительные материалы) и в 11.79 раз (padj = = 1.6 × 10‒144) (табл. S1 , Дополнительные материалы) в клетках sh-LUC. Как сказано ранее, индукция ферроптоза стандартным агентом эрастином основана на ингибирующем действии активности субъединицы SLC7A11. Этот белок обеспечивает транспорт цистина внутрь клетки, где последний вовлекается в путь биосинтеза глутатиона, непосредственно участвующего в антиоксидантной защите клетки. Вероятно, усиленная регуляция экспрессии гена SLC7A11 позволяет клеткам MDA-MB-231 противодействовать ингибирующим эффектам эрастина, причем кратность увеличения экспрессии SLC7A11 в контрольной линии и в клетках с нокдауном гена ELOVL5 хорошо коррелирует с разной эффективностью такого противодействия и, как следствие, с разной чувствительностью к индукции ферроптоза рассматриваемых клеточных линий.
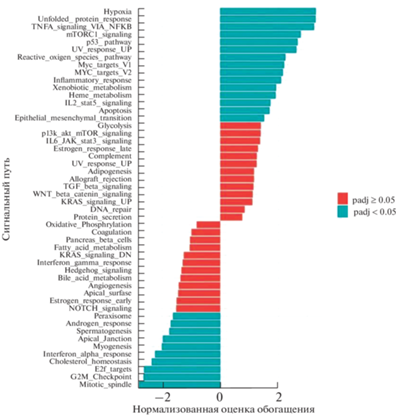
По результатам проведенного GSEA для клеточной линии MDA-MB-231 sh-LUC, инкубированной с эрастином, по сравнению с необработанной, выявлена активация ряда путей, связанных с реакцией на клеточный стресс и повреждения (рис. 3). В числе наиболее обогащенных были следующие: гипоксия, ответ на несвернутые белки (unfolded protein response), ассоциированный с воспалительным ответом сигналинг (TNFA signaling via NFKB), а также окислительный стресс (reactive oxygen species pathway). Кроме того, выявлена активация сигнальных путей, связанных с контролем клеточного цикла (MYC targets, p53 pathway), метаболизмом (MTORC1 signaling) и апоптозом. Обработка клеток эрастином приводила также к снижению активности ряда путей, связанных с процессами клеточного цикла и пролиферации, таких как прохождение контрольной точки G2M, регуляция митотического веретена деления и связывания с мишенями в промоторной области транскрипционного фактора E2F. Это указывает на подавление митотической активности и нарушение перехода клеток через ключевые контрольные точки клеточного цикла под действием эрастина. Выявлено и снижение интенсивности сигналинга путей, связанных с интерфероном-α (IFNα) и процессами, регулирующими клеточную адгезию и морфогенез (apical junction, apical surface).
Рис. 3.
Наиболее обогащенные наборы дифференциально экспрессирующихся генов в транскриптоме клеток MDA-MB-231 sh-LUC, обработанных эрастином (5 мкМ, 24 ч), по результатам GSEA. Здесь и далее: padj – скорректированная величина p-value.
Fig. 3. Most enriched gene sets of differentially expressed genes in the transcriptome of sh-LUC MDA-MB-231 cells treated with erastin (5 μM, 24 h), according to GSEA. Here and everywhere: padj – adjusted p-value.
В клеточной линии с sh-ELOVL5 после обработки эрастином также обнаружены значимые изменения в сигнальных путях, выявленные с помощью GSEA (рис. 4). Наиболее обогащенными оказались пути окислительного стресса (reactive oxygen species pathway), гипоксии и воспаления (TNFA signaling via NFKB). При этом пути, ассоциированные с регуляцией клеточного цикла и митотического деления, были сильно супрессированы, что согласуется с результатами, полученными для линии sh-LUC. Интересно, что в клетках с нокдауном маркерного гена ELOVL5 также была снижена активность сигнальных путей, связанных с окислительным фосфорилированием, гомеостазом холестерина и метаболизмом жирных кислот. Это значит, что действие эрастина распространяется на метаболические процессы в клетках MDA-MB-231 РМЖ.
Рис. 4.
Наиболее обогащенные наборы дифференциально экспрессирующихся генов в транскриптоме клеток MDA-MB-231 sh-ELOVL5, обработанных эрастином (5 мкМ, 24 ч), по результатам GSEA.
Fig. 4. Most enriched gene sets of differentially expressed genes in the transcriptome of sh-ELOVL5 MDA-MB-231 cells treated with erastin (5 μM, 24 h), according to GSEA.
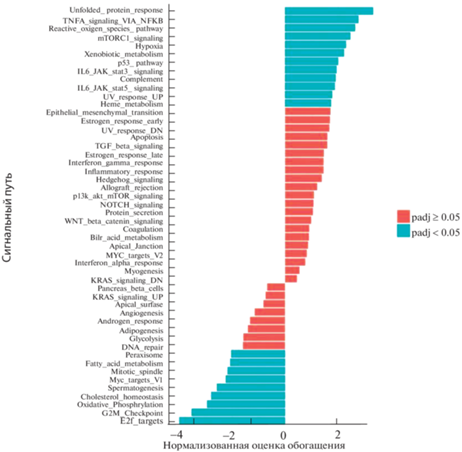
Стоит отметить, что после обработки эрастином в клеточной линии sh-ELOVL5 сигнальные пути, ассоциированные с работой клеточного цикла (E2F targets, G2M checkpoint), оказались подавлены сильнее, чем в клетках sh-LUC. В то же время в линии sh-LUC были сильнее активированы пути, связанные с mTORC1 и p53, которые играют важную роль в пролиферации и метаболизме опухолей [41, 42], а также с воспалительными реакциями (TNFA signaling via NFKB) и гипоксией. Стоит отметить, что в условиях гипоксии часто наблюдается HIF-1α-ассоциированное ослабление митохондриального дыхания, благодаря чему в митохондриях снижается уровень токсичных АФК [43] ‒ их накопление считается одним из важных этапов, предшествующих запуску механизма ферроптотической гибели. В целом, все полученные и описанные выше данные хорошо согласуются с большей устойчивостью клеток MDA-MB-231 sh-LUC к ферроптозу, чем нокаутированных по гену ELOVL5. Различия в активации сигнальных путей между двумя клеточными линиями под действием эрастина отражают различные стратегии их ответа на стресс и повреждения, вызванные индукцией ферроптоза.
В совокупности полученные результаты ясно продемонстрировали влияние нокдауна гена ELOVL5 в клетках MDA-MB-231 как на их чувствительность к ферроптозу и его динамику, так и на разнообразие запускаемых в клетках транскрипционных программ в ответ на воздействие классического индуктора ферроптоза – эрастина. Как упомянуто ранее, дополнительная индукция ферроптоза позволяет в отдельных случаях преодолеть резистентность опухолевых клеток не только к химиотерапии, но даже к радиотерапии [44]. Таким образом, введение индукторов ферроптоза в схемы лечения рака молочной железы с низкой экспрессией гена ELOVL5 в опухолевой ткани можно рассматривать как перспективное направление дальнейших исследований, в том числе в условиях, приближенным к клиническим.
Список литературы
Злокачественные новообразования в России в 2023 г. (заболеваемость и смертность). Ред. Каприн А.Д., Старинский В.В., Шахзадова А.О. Москва: МНИОИ им. П.А. Герцена ‒ филиал ФГБУ “НМИЦ радиологии” Минздрава России, 2024, 276 с. https://oncology-association.ru/wp-content/uploads/2024/08/-zis-2023-elektronnaya-versiya.pdf.
Siegel R.L., Miller K.D., Wagle N.S., Jemal A. Cancer statistics, 2023. CA Cancer J. Clin., 2023, 73(1), 17–48. https://doi.org/10.3322/caac.21763
Lafourcade A., His M., Baglietto L., Boutron-Ruault M.-C., Dossus L., Rondeau V. Factors associated with breast cancer recurrences or mortality and dynamic prediction of death using history of cancer recurrences: the French E3N cohort. BMC Cancer, 2018, 18(1), 171. https://doi.org/10.1186/s12885-018-4076-4
Holohan C., Van Schaeybroeck S., Longley D.B., Johnston P.G. Cancer drug resistance: an evolving paradigm. Nat. Rev. Cancer, 2013, 13(10), 714–726. https://doi.org/10.1038/nrc3599
Galatenko V.V., Shkurnikov M.Y., Samatov T.R., Galatenko A.V., Mityakina I.A., Kaprin A.D., Schuma-cher U., Tonevitsky A.G. Highly informative marker sets consisting of genes with low individual degree of differential expression. Sci. Rep., 2015, 5(1), 14967. https://doi.org/10.1038/srep14967
Moon Y.-A., Hammer R.E., Horton J.D. Deletion of ELOVL5 leads to fatty liver through activation of SREBP-1c in mice. J. Lipid Res., 2009, 50(3), 412–423. https://doi.org/10.1194/jlr.M800383-JLR200
Wang Y., Torres-Gonzalez M., Tripathy S., Botolin D., Christian B., Jump D.B. Elevated hepatic fatty acid elongase-5 activity affects multiple pathways controlling hepatic lipid and carbohydrate composition. J. Lipid Res., 2008, 49(7), 1538–1552. https://doi.org/10.1194/jlr.M800123-JLR200
Leonard A.E., Bobik E.G., Dorado J., Kroeger P.E., Chu-ang L.-T., Thurmond J.M., Parker-Barnes J.M., Das T., Huang Y.-S., Mukerji P. Cloning of a human cDNA encoding a novel enzyme involved in the elongation of long-chain polyunsaturated fatty acids. Biochem. J., 2000, 350(3), 765–770. https://doi.org/10.1042/bj3500765
Kieu T.L.V., Pierre L., Perrey S., Derangere V., Truntzer C., Jalil A., Dumont A., Masson D., Thomas C., Ghiringhelli F., Rialland M. 164P effect of ELOVL5 expression on breast cancer development. Ann. Oncol., 2021, 32, S432. https://doi.org/10.1016/j.annonc.2021.08.445
Romanuik T.L., Ueda T., Le N., Haile S., Yong T.M.K., Thomson T., Vessella R.L., Sadar M.D. Novel biomarkers for prostate cancer including noncoding transcripts. Am. J. Pathol., 2009, 17(6), 2264–2276. https://doi.org/10.2353/ajpath.2009.080868
Boot A., Oosting J., van Eendenburg J.D.H., Kuppen P.J.K., Morreau H., van Wezel T. Methylation associated transcriptional repression of ELOVL5 in novel colorectal cancer cell lines. PLoS One, 2017, 12(9), e0184900. https://doi.org/10.1371/journal.pone.0184900
Nikulin S., Zakharova G., Poloznikov A., Raigorod-skaya M., Wicklein D., Schumacher U., Nersisyan S., Bergquist J., Bakalkin G., Astakhova L., Tonevitsky A. Effect of the expression of ELOVL5 and IGFBP6 genes on the metastatic potential of breast cancer cells. Front. Genet., 2021, 12, 662843. https://doi.org/10.3389/fgene.2021.662843
Huang L.-H., Chung H.-Y., Su H.-M. Docosahexaenoic acid reduces sterol regulatory element binding prote-in-1 and fatty acid synthase expression and inhibits cell proliferation by inhibiting pAkt signaling in a human breast cancer MCF-7 cell line. BMC Cancer, 2017, 17(1), 890. https://doi.org/10.1186/s12885-017-3936-7
Chamras H., Ardashian A., Heber D., Glaspy J.A. Fatty acid modulation of MCF-7 human breast cancer cell proliferation, apoptosis and differentiation. J. Nutr. Biochem., 2002, 13(12), 711–716. https://doi.org/10.1016/S0955-2863(02)00230-9
Volpato M., Hull M.A. Omega-3 polyunsaturated fatty acids as adjuvant therapy of colorectal cancer. Cancer Metastasis Rev., 2018, 37(2–3), 545–555. https://doi.org/10.1007/s10555-018-9744-y
Dierge E., Debock E., Guilbaud C., Corbet C., Mignolet E., Mignard L., Bastien E., Dessy C., Larondelle Y., Feron O. Peroxidation of n-3 and n-6 polyunsaturated fatty acids in the acidic tumor environment leads to ferroptosis-mediated anticancer effects. Cell Metab., 2021, 33(8), 1701‒1715.e5. https://doi.org/10.1016/j.cmet.2021.05.016
Stockwell B.R., Friedmann Angeli J.P., Bayir H., Bush A.I., Conrad M., Dixon S.J., Fulda S., Gascón S., Hatzios S.K., Kagan V.E., Noel K., Jiang X., Linkermann A., Murphy M.E., Overholtzer M., Oyagi A., Pagnussat G.C., Park J., Ran Q., Rosenfeld C.S., Salnikow K., Tang D., Torti F.M., Torti S.V., Toyokuni S., Woerpel K.A., Zhang D.D. Ferroptosis: a regulated cell death nexus linking metabolism, redox biology, and disease. Cell, 2017, 171(2), 273–285. https://doi.org/10.1016/j.cell.2017.09.021
Dixon S.J., Lemberg K.M., Lamprecht M.R., Skouta R., Zaitsev E.M., Gleason C.E., Patel D.N., Bauer A.J., Cantley A.M., Yang W.S., Morrison B., Stockwell B.R. Ferroptosis: an ion-dependent form of nonapoptotic cell death. Cell, 2012, 149(5), 1060–1072. https://doi.org/10.1016/j.cell.2012.03.042
Seibt T.M., Proneth B., Conrad M. Role of GPX4 in ferroptosis and its pharmacological implication. Free Ra-dic. Biol. Med., 2019, 133, 144–152. https://doi.org/10.1016/j.freeradbiomed.2018.09.014
Li J., Cao F., Yin H., Huang Z., Lin Z., Mao N., Sun B., Wang G. Ferroptosis: past, present and future. Cell Death Dis., 2020, 11(2), 88. https://doi.org/10.1038/s41419-020-2298-2
Zhou Q., Meng Y., Li D., Yao L., Le J., Liu Y., Sun Y., Zeng F., Chen X., Deng G. Ferroptosis in cancer: from molecular mechanisms to therapeutic strategies. Signal Transduct. Target. Ther., 2024, 9(1), 55. https://doi.org/10.1038/s41392-024-01769-5
Chen X., Comish P.B., Tang D., Kang R. Characteristics and biomarkers of ferroptosis. Front. Cell Dev. Biol., 2021, 9, 637162. https://doi.org/10.3389/fcell.2021.637162
Ursini F., Maiorino M. Glutathione peroxidases. In: Encyclopedia of Biological Chemistry, 2013, 399–404. https://doi.org/10.1016/B978-0-12-378630-2.00383-2
Anthonymuthu T.S., Tyurina Y.Y., Sun W.Y., Mikulska-Ruminska K., Shrivastava I.H., Tyurin V.A., Cinemre F.B., Dar H.H., VanDemark A.P., Holman T.R., Sadovsky Y., Stockwell B.R., He R.R., Bahar I., Bayır H., Kagan V.E. Resolving the paradox of ferroptotic cell death: ferrostatin-1 binds to 15LOX/PEBP1 complex, suppresses generation of peroxidized ETE-PE, and protects against ferroptosis. Redox Biol., 2021, 38, 101744. https://doi.org/10.1016/j.redox.2020.101744
Cosialls E., El Hage R., Dos Santos L., Gong C., Mehrpour M., Hamaï A. Ferroptosis: cancer stem cells rely on iron until “to die for” it. Cells, 2021, 10(11), 2981. https://doi.org/10.3390/cells10112981
Wu Y., Yu C., Luo M., Cen C., Qiu J., Zhang S., Hu K. Ferroptosis in cancer treatment: another way to Rome. Front. Oncol., 2020, 10, 571127. https://doi.org/10.3389/fonc.2020.571127
Nikulin S., Razumovskaya A., Poloznikov A., Zakharova G., Alekseev B., Tonevitsky A. ELOVL5 and IGFBP6 genes modulate sensitivity of breast cancer cells to ferroptosis. Front. Mol. Biosci., 2023, 10, 1075704. https://doi.org/10.3389/fmolb.2023.1075704
Schwankhaus N., Gathmann C., Wicklein D., Riecken K., Schumacher U., Valentiner U. Cell adhesion molecules in metastatic neuroblastoma models. Clin. Exp. Metastasis, 2014, 31(4), 483–496. https://doi.org/10.1007/s10585-014-9643-8
Maltseva D., Raygorodskaya M., Knyazev E., Zgoda V., Tikhonova O., Zaidi S., Nikulin S., Baranova A., Turchinovich A., Rodin S., Tonevitsky A. Knockdown of the α5 laminin chain affects differentiation of colorectal cancer cells and their sensitivity to chemotherapy. Biochimie, 2020, 174, 107–116. https://doi.org/10.1016/j.biochi.2020.04.016
Poloznikov A., Nikulin S., Bolotina L., Kachmazov A., Raigorodskaya M., Kudryavtseva A., Bakhtogarimov I., Rodin S., Gaisina I., Topchiy M., Asachenko A., Novosad V., Tonevitsky A., Alekseev B. 9-ING-41, a small molecule inhibitor of GSK-3β, potentiates the effects of chemotherapy on colorectal cancer. Front. Pharmacol., 2021, 12, 777114. https://doi.org/10.3389/fphar.2021.777114
Ewels P., Magnusson M., Lundin S., Käller M. MultiQC: summarize analysis results for multiple tools and samples in a single report. Bioinformatics, 2016, 32, 3047–3048. https://doi.org/10.1093/bioinformatics/btw354
Martin M. CUTADAPT removes adapter sequences from high-throughput sequencing reads. EMBnet.journal, 2011, 17(1), 10‒12. https://doi.org/10.14806/ej.17.1.200
Dobin A., Davis C.A., Schlesinger F., Drenkow J., Zaleski C., Jha S., Batut P., Chaisson M., Gingeras T.R. STAR: ultrafast universal RNA-seq aligner. Bioinformatics, 2016, 29, 15–21. https://doi.org/10.1093/bioinformatics/bts635
Frankish A., Diekhans M., Ferreira A.M., Johnson R., Jungrei I., Loveland J., Barnes I., Berry A., Bignell A., Sala S.C. GENCODE reference annotation for the human and mouse genomes. Nucleic Acids Res., 2019, 47, D766–D773. https://doi.org/10.1093/nar/gky955
Liao Y., Smyth G.K., Shi W. featureCounts: an efficient general purpose program for assigning sequence reads to genomic features. Bioinformatics, 2014, 30, 923–930. https://doi.org/10.1093/bioinformatics/btt656
Love M.I., Huber W., Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol., 2014, 15(12), 550. https://doi.org/10.1186/s13059-014-0550-8
Subramanian A., Tamayo P., Mootha V.K., Mukherjee S., Ebert B.L., Gillette M.A., Paulovich A., Pomeroy S.L., Golub T.R., Lander E.S., Mesirov J.P. Gene set enrichment analysis: a knowledge-based approach for interpreting genome-wide expression profiles. Proc. Natl. Acad. Sci. USA, 2005, 102(43), 15545–15550. https://doi.org/10.1073/pnas.0506580102
Liberzon A., Birger C., Thorvaldsdóttir H., Ghandi M., Mesirov J.P., Tamayo P. The molecular signatures database hallmark gene set collection. Cell Syst., 2015, 1(6), 417–425. https://doi.org/10.1016/j.cels.2015.12.004
Korotkevich G., Sukhov V., Budin N., Shpak B., Artyomov M.N., Sergushichev A. Fast gene set enrichment analysis. bioRxiv, 2021, 060012. https://www.biorxiv.org/content/10.1101/060012v3
Gao M., Monian P., Quadri N., Ramasamy R., Jiang X. Glutaminolysis and transferrin regulate ferroptosis. Mol. Cell, 2015, 59(2), 298–308. https://doi.org/10.1016/j.molcel.2015.06.011
Zou Z., Tao T., Li H., Zhu X. mTOR signaling pathway and mTOR inhibitors in cancer: progress and challenges. Cell Biosci., 2020, 10(1), 31. https://doi.org/10.1186/s13578-020-00396-1
Marei H.E., Althani A., Afifi N., Hasan A., Caceci T., Pozzoli G., Morrione A., Giordano A., Cenciarelli C. p53 signaling in cancer progression and therapy. Cancer Cell Int., 2021, 21(1), 703. https://doi.org/10.1186/s12935-021-02396-8
SchönenbergerM.J. Hypoxia signaling pathways: modulators of oxygen-related organelles. Front. Cell Dev. Biol., 2015, 3, 42. https://doi.org/10.3389/fcell.2015.00042
Lei G., Mao C., Yan Y., Zhuang L., Gan B. Ferroptosis, radiotherapy, and combination therapeutic strategies. Protein Cell, 2021, 12(11), 836–857. https://doi.org/10.1007/s13238-021-00841-y
Дополнительные материалы
- скачать ESM.docx
- Приложение 1. Дополнительные материалы


 Пн.-пт.: 10.00-19.00