

Цитология, 2021, T. 63, № 5, стр. 483-490
Функциональная активность натриевых каналов ENaC в эндометриальных мезенхимных стволовых клетках человека
А. В. Сударикова 1, *, В. И. Чубинский-Надеждин 1, В. Ю. Васильева 1, Д. В. Лысикова 1, 2, М. А. Шорохова 1, Е. А. Морачевская 1, Ю. А. Негуляев 1
1 Институт цитологии РАН
194064 Санкт-Петербург, Россия
2 Санкт-Петербургский политехнический университет Петра Великого
195251 Санкт-Петербург, Россия
* E-mail: anastasia.sudarikova@gmail.com
Поступила в редакцию 25.06.2021
После доработки 09.07.2021
Принята к публикации 10.07.2021
Аннотация
Работа направлена на выявление функциональной активности натриевых каналов ENaC в эндометриальных мезенхимных стволовых клетках человека (эМСК). Иммунофлуоресцентное окрашивание клеток показало наличие основной порообразующей альфа-субъединицы ENaC в эМСК. Для электрофизиологического исследования натриевых каналов и анализа эффектов потенциальных активаторов ENaC использовали возможности регистрации унитарных токов при отведении от участка плазматической мембраны нативной клетки (вариант cell-attached). В экспериментах на эМСК обнаружена фоновая активность натриевых каналов и показана их активация при разборке актинового цитоскелета в ответ на подачу цитохалазина Д; оценены функциональные свойства одиночных каналов. Типичную активность каналов наблюдали также при добавлении к наружной стороне мембранного фрагмента трипсина (сериновой протеазы), известного стимулятора каналов ENaC. Вольтамперные характеристики натриевых каналов, активированных при действии деструктора цитоскелета или внеклеточной протеазы, были близки: проводимость составляла 11–13 пСм. Таким образом, выявлены физиологические пути стимуляции натриевых каналов ENaC в стволовых клетках эндометрия человека. Обнаруженные внутриклеточные и внеклеточные механизмы регуляции каналов ENaC могут обеспечивать быстрые изменения натриевой проницаемости плазматической мембраны стволовых клеток.
Изменения проницаемости плазматической мембраны нативных клеток для ионов натрия играют ведущую роль в регуляции водно-солевого баланса и клеточного объема. В различных электроневозбудимых клетках транспорт натрия из внеклеточной среды в цитоплазму связан с функциональной активностью эпителиальных натрий-проводящих каналов семейства ENaC (epithelial sodium channels), экспрессия которых, как теперь установлено, не является эксклюзивной особенностью апикальных мембран реабсорбирующего эпителия почек (Mirshahi et al., 1998; Сударикова и др., 2012; Sudarikova et al., 2015; Kleyman, Eaton, 2020). Потенциал-независимые каналы ENaC являются гетеротримерами и состоят из альфа-, бета- и гамма-субъединиц, в некоторых случаях дельта-субъединица может заменять субъединицу альфа. В клетках и тканях различной специализации, в том числе стволовых клетках, показана экспрессия субъединиц ENaC (Сударикова и др., 2012; Sudarikova et al., 2015; Petrik et al., 2018; Nam et al., 2020). Выявлены важнейшие внутриклеточные механизмы регуляции натриевых каналов, связанные с организацией и динамикой актинового цитоскелета. В частности, показана их активация в ответ на разборку микрофиламентов при действии цитохалазина Д (Чубинский-Надеждин и др., 2013; Negulyaev et al., 2000; Shumilina et al., 2003; Sudarikova et al., 2015; Morachevskaya, Sudarikova, 2021). Обнаружена активация натриевых каналов при внеклеточном приложении сериновой протеазы трипсин (Sudarikova et al., 2019), специфического активатора каналов ENaC (Kleyman, Eaton, 2020). Накапливаются данные, свидетельствующие о вероятном вовлечении каналов ENaC в процессы механотрансдукции, опосредующие их вклад в регуляцию дифференцировки и пролиферации стволовых клеток (Petrik et al., 2018; Nam et al., 2020).
Перспективным объектом исследований в области механобиологии мезенхимных стволовых клеток человека являются стволовые клетки эндометрия (Сударикова и др., 2019; Чубинский-Надеждин и др., 2020), важным преимуществом которых считаются неивазивные протоколы их получения (Земелько и др., 2011; Banu et al., 2008; Chen et al., 2019). Ранее в наших исследованиях изучена механозависимая активация катионных каналов в эндометриальных мезенхимных стволовых клетках человека (эМСК) в ответ на локальное растяжение участка мембраны (Chubinskiy-Nadezhdin et al., 2017, 2019). Обнаружен и изучен феномен функционального сопряжения активности кальций-проводящих механочувствительных каналов и кальций-управляемых калиевых каналов в плазматической мембране эМСК. С помощью электрофизиологических подходов установлено, что строго локализованный вход кальция в процессе механотрансдукции стимулирует активность кальций-зависимых калиевых каналов ВК в эндометриальных стволовых клетках (Chubinskiy-Nadezhdin et al., 2017, 2019).
Вопросы, касающиеся функциональной экспрессии и возможностей активации каналов ENaC в мембране эМСК, ранее оставались вне специального рассмотрения и практически не изучены, что и определило цели и задачи настоящей работы. Основная экспериментальная задача заключалась в выяснении наличия в стволовых клетках эндометрия человека функционально-активных натриевых каналов и выяснения, принадлежат ли они к семейству ENaC. Использовали известные методические подходы и агенты, индуцирующие активацию этих каналов. Проведенная работа демонстрирует возможности использования специфических активаторов каналов для решения задач по функциональной идентификации ENaC в различных типах клеток.
МАТЕРИАЛ И МЕТОДИКА
Клеточные культуры. Линии мезенхимных стволовых клеток эндометрия человека (эМСК) были получены из десквамированного эндометрия в менструальной крови здоровых доноров (линии 2304, 2804) и охарактеризованы (Земелько и др., 2011) в Институте цитологии РАН (Санкт-Петербург, Россия). Клетки культивировали по стандартному протоколу в среде DMEM/F12 (Gibco, США), содержащей 10% эмбриональной бычьей сыворотки (HyClone, США), 1% антибиотика-антимикотика и 1% GlutaMAX (Gibco, США), при 37°С и 5% CO2. Использовали клетки с 5 по 16 пассаж. За 1–2 сут до электрофизиологических или флуоресцентных экспериментов клетки высевали на покровные стекла размером 4 × 4 и 12 × 12 мм соответственно.
Электрофизиология. Для регистрации токов через одиночные ионные каналы на участке мембраны неповрежденной клетки использовали конфигурацию cell-attached метода патч-кламп. Электрофизиологическая установка включала усилитель AxoPatch 200B и аналогово-цифровой преобразователь Axon Digidata 1550A (Molecular Devices Corp., США), управляемые программным обеспечением pClamp 10.5. Пипетки изготавливали из стандартных стеклянных заготовок на микрокузнице Р-97 (Sutter Instrument, США), заполняли наружным раствором, содержащим (мМ): 145 NaCl, 2 CaCl2, 1 MgCl2, 10 HEPES/TrisOH; сопротивление пипеток составляло 5–12 МОм. Стандартный внеклеточный раствор в камере в экспериментах cell-attached содержал (мМ): 145 KCl, 2 CaCl2, 1 MgCl2, 10 HEPES/TrisOH; pH всех растворов составлял 7.3. Подробное описание метода патч-кламп приведено в опубликованных ранее работах (например: Васильева, Чубинский-Надеждин, 2021).
С помощью амплитудных гистограмм, описанных функцией Гаусса, рассчитывали амплитуду одиночного открывания канала, которая соответствовала расстоянию между пиками. Вероятность открытого состояния канала Рo оценивали как Ро = I/Ni, где I – средний ток в определенном интервале времени (из амплитудных гистограмм), N – число работающих каналов в патче, i – средний ток через открытый канал.
Флуоресцентная микроскопия. Для определения присутствия альфа-субъединицы ENaC клетки промывали однократным фосфатно-солевым буферным раствором (PBS), фиксировали 3.7%-ным раствором параформальдегида в течение 10 мин при комнатной температуре, пермеабилизировали (0.25%-ным Tween-20, 10 мин) и инкубировали в растворе PBS, содержащем 10% козьей сыворотки (goat serum) в течение 1 ч для блокирования неспецифичного присоединения антител к клеткам. Окраску первичными антителами к альфа-hENaC (StressMarq, США; разведение 1 : 200) проводили согласно стандартному протоколу (ночь при 4°С). Далее клетки инкубировали с вторичными козьими антителами против иммуноглобулина кролика, конъюгированными с флуоресцентным красителем Cy3 (Goat-Anti-Rabbit-Cy3; Santa Cruz, США; разведение 1 : 200, 1 ч в темноте), ядра окрашивали с помощью DAPI (10 мин в темноте).
Фибриллярный (F) актин в клетках эМСК окрашивали TRITC-фаллоидином (Sigma-Aldrich, США) с использованием стандартной процедуры. Покровные стекла с клетками промывали 1-кратным PBS, фиксировали 3.7%-ным раствором параформальдегида, как описано выше, пермеабилизировали 0.1%-ным Тритоном X-100 (10 мин) и инкубировали в растворе PBS, содержащем 0.5 мкM TRITC-фаллоидин (15 мин, 37°С), ядра окрашивали DAPI в течение 10 мин в темноте.
Между всеми процедурами флуоресцентного мечения альфа-hENaC и F-актина проводили двух- или трехкратные промывки препаратов PBS. После окрашивания препараты монтировали на предметных стеклах с использованием реагента, препятствующего выгоранию флуоресцентных красителей (vectashield anti-fading reagent; Vector Labs, США). Все изображения получали в ЦКП Института цитологии РАН на конфокальных микроскопах Leica TCS SP5 (Leica Microsystems GmBH, Германия) или Olympus FV3000 (Olympus, Япония) с использованием объектива 40× c масляной иммерсией. Обработку изображений проводили с помощью программных пакетов Leica LAS AF Lite и Image J.
РЕЗУЛЬТАТЫ
Одними из возможных участников, вовлеченных в поддержание клеточного объема и ионного гомеостаза в эМСК, могут выступать натрий-проводящие каналы ENaC. Для того, чтобы исследовать функциональную экспрессию ENaC в эМСК, мы использовали иммунофлуоресцентную микроскопию и метод патч-кламп. Иммунофлуоресцентное окрашивание клеток специфическими антителами подтвердило наличие основной порообразующей альфа-субъединицы ENaC в эМСК (рис. 1а, б).
Рис. 1.
Потенциал-независимые натриевые каналы в эМСК. а – Иммунофлуоресцентное окрашивание альфа-субъединиц канала ENaC (красный сигнал красителя Cy3) и ядер (синий сигнал DAPI); б – контрольный эксперимент (с инкубацией клеток только со вторичными антителами). Увел. объектива: 40×, масштабная линейка: 50 мкм. в – Фоновая активность натриевых каналов в участке мембраны нативной клетки (конфигурация cell-attached, токи входящего направления); здесь и далее поддерживаемые потенциалы указаны справа от записей токов: зк – закрытое состояние (уровень нулевого тока), отк – открытое состояние канала; при потенциалах –40 и –50 мВ отчетливо видна активность калиевых каналов (токи выходящего направления, открывания вверх от уровня нулевого тока, зк). г – Соответствующая вольтамперная характеристика; д – схема эксперимента по регистрации токов в конфигурации cell-attached метода патч-кламп. Пипетка плотно прижимается к участку клетки, образуя гигаомный контакт. Составы растворов см. в разделе “Материал и методика”.
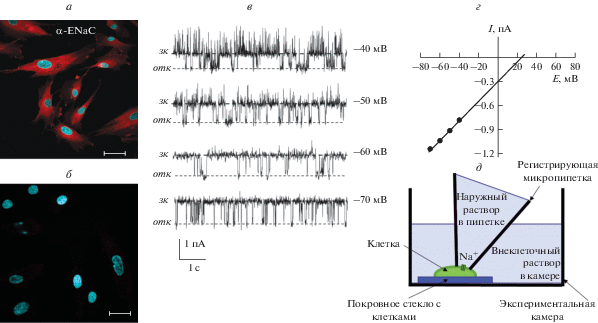
В конфигурации cell-attached метода патч-кламп регистрировали токи через одиночные каналы в стволовых клетках при значениях поддерживаемого потенциала на мембране в диапазоне от –80 до 0 мВ; ион натрия (145 мМ NaCl) являлся основным катионом в наружном растворе (в пипетке). В части экспериментов наблюдали токи выходящего направления (открывания вверх от уровня нулевого тока, см. рис. 1в), предположительно калиевых каналов (Chubinskiy-Nadezhdin et al., 2017, 2019). Рис. 1в демонстрирует пример фоновой активности сразу двух типов катионных каналов – калиевых (выходящие токи) и натриевых (входящие токи) – в участке мембраны нативной клетки (cell-attached). Входящие токи, отражающие фоновую активность натрий-проводящих каналов в мембране эМСК, были обнаружены, как минимум, в 7 случаях из общего числа экспериментов 46. Эта оценка может быть занижена, поскольку в экспериментах с высоким уровнем активности калиевых каналов регистрация другого типа каналов может быть затруднена. Не было выявлено существенной зависимости уровня активности каналов от клеточного пассажа (длительности культивирования). Проводимость исследуемых каналов составила 11–13 пСм, потенциал реверсии – около 20 мВ (рис. 1г), что характерно для потенциал-независимых натриевых каналов ENaC, ранее описанных нами в клетках различной специализации, включая клетки крови и культивируемые фибробласты (Ведерникова и др., 1999; Сударикова и др., 2012; Чубинский-Надеждин и др., 2013; Sudarikova et al., 2015).
В следующих сериях экспериментов cell-attached исследовали действие известных активаторов ENaC (цитохалазина Д и сериновой протеазы трипсина) на ионные токи в мембране эМСК. Действие цитохалазина Д (10 мкг/мл), мембранопроникающего деструктора F-актина, тестировали на стабильных патчах, в которых фоновая активность каналов была минимальной или отсутствовала. Добавление цитохалазина Д во внеклеточный раствор в камере приводило к развитию активности натриевых каналов (рис. 2а, б, в) с проводящими характеристиками, близкими к измеренным в случае фоновой активности (см. рис. 1в, г); отмечена вариабельность кинетического поведения одиночных каналов. Активацию наблюдали в 17% случаев (n = 18) через 2–3 мин после подачи цитохалазина. Влияние цитохалазина Д на актиновый цитоскелет в эМСК было подтверждено с помощью окраски F-актина и представлено на рис. 2г. В контрольных условиях выявляются фибриллярные структуры цитоскелета, в то время как обработка цитохалазином (10 мкг/мл, 15 мин) приводила к нарушению организации микрофиламентов и появлению скоплений аморфного актина.
Рис. 2.
Активация натриевых каналов, индуцированная разборкой актиновых филаментов при действии цитохалазина Д (ЦитД). а – Записи токов до (контроль) и через 3 мин после подачи 10 мкг/мл ЦитД во внеклеточный раствор в камере, б – соответствующая вольтамперная характеристика. в – Схема эксперимента. г – Окраска F-актина в эМСК в контрольных условиях и после обработки ЦитД; масштабная линейка: 50 мкм.
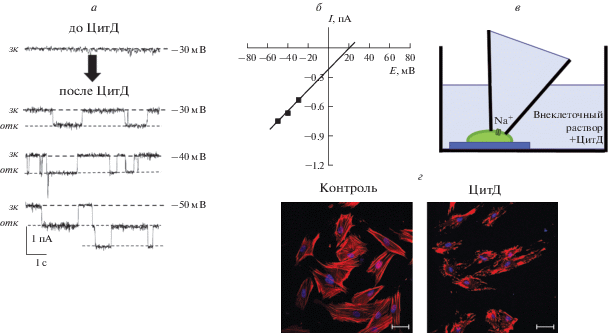
Эксперименты с ЦитД подтвердили, что в эМСК наблюдается характерный для ENaC механизм внутриклеточной регуляции, связанный с динамикой актинового цитоскелета, (Karpushev et al., 2010; Sudarikova et al., 2015; Morachevskaya, Sudarikova, 2021). Следующим этапом работы было изучение действия внеклеточных сериновых протеаз на активность ионных каналов в мембране эМСК. Известно, что протеолитическое расщепление внеклеточной петли альфа- и гамма-субъединиц канала, в том числе трипсином, вызывает активацию ENaC (например, см.: Diakov et al., 2008; Kleyman, Eaton, 2020). В наших экспериментах cell-attached протеазу трипсин добавляли к наружной стороне мембранного фрагмента (в пипетку) в концентрации 5 мкг/мл. На рис. 3 представлен пример записей токов через трипсин-активируемые натриевые каналы при различных значениях мембранного потенциала, а также приведены соответствующие амплитудные гистограммы и вольтамперная характеристика; зарегистрирована типичная активность натриевых каналов с проводимостью около 12 пСм. Вероятность открытого состояния каналов Po, рассчитанная для временных интервалов, представленных на рис. 3а, составила 0.20–0.24 и практически не зависела от потенциала в диапазоне –30... –60 мВ.
Рис. 3.
Активность натриевых каналов ENaC, индуцированная действием протеазы трипсин. а – Записи токов при различных значениях поддерживаемого потенциала и соответствующие им амплитудные гистограммы, расстояния между пиками которых равны амплитуде одиночного открывания; б – схема эксперимента. Для активации натриевых каналов добавляли 5 мкг/мл трипсина в наружный раствор в пипетке. в – Вольтамперная характеристика натриевых каналов.
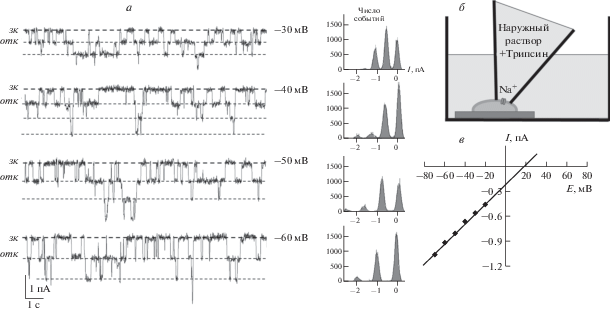
Таким образом, можно заключить, что в плазматической мембране эМСК функционируют натрий-проводящие каналы, которые, судя по своим биофизическим характеристикам и механизмам активации, принадлежат к семейству ENaC.
ОБСУЖДЕНИЕ
В настоящей работе исследования проводили на ранее охарактеризованных по маркерам, кариотипу и способности к направленной дифференцировке культивируемых мезенхимных стволовых клетках (МСК), выделенных из менструальной крови (Земелько и др., 2011; Chubinskiy-Nadezhdin et al., 2019), что выгодно отличает их от других МСК неинвазивным способом выделения.
Как уже отмечалось ранее, натриевые каналы ENaC, характерные для эпителия почек и легких, были обнаружены в клетках различной специализации (Сударикова и др., 2012; Sudarikova et al., 2015; Kleyman, Eaton, 2020). В настоящее время исследования экспрессии ENaC и их влияния на жизнедеятельность стволовых клеток различного происхождения находятся на начальном этапе. Так, в единичных работах последних лет есть данные об экспрессии одной (альфа-) или нескольких субъединиц ENaC (альфа-, бета-, гамма-, дельта) в стромальных стволовых клетках, выделенных из костного мозга человека (Nam et al., 2020), а также в нейрональных стволовых клетках мыши (Petrik et al., 2018). Обнаружено положительное влияние кондиционированной среды от МСК, выделенных из костного мозга, на уровень трансэпителиального амилорид-чувствительного тока и экспрессию альфа-субъединицы ENaC в эпителиальных клетках легкого человека (клетки линии H441) или в культуре первичных клеток AT2 мыши (Ding et al., 2020). Сокультивирование МСК из костного мозга и клеток H441 или AT2 также приводило к увеличению амилорид-чувствительного тока и уровня белка субъединиц альфа и гамма ENaC (Zhang et al., 2020).
В настоящей работе мы подтвердили наличие субъединицы альфа ЕNaC в эМСК с помощью иммунофлуоресцентной микроскопии. Кроме того, с использованием метода патч-кламп впервые зарегистрировали активность потенциал-независимых натрий-проводящих каналов в плазматической мембране эМСК и определили их биофизические характеристики. Одиночные каналы анализировали в квазифизиологических условиях (145 мМ NaCl) на участке мембраны нативной клетки (конфигурация cell-attached). Значения проводимости (11–13 пСм) и потенциала реверсии (около 20 мВ) натриевых каналов, обнаруженных в эМСК, были близки к значениям этих же показателей амилорид-нечувствительных каналов ENaC в трансформированных клетках крови (Сударикова и др., 2012, 2018; Sudarikova et al., 2019), а также каналов ENaC, изучаемых в основном в экспрессионных системах (ооцитах Xenopus) и содержащих в своем составе дельта-субъединицу (Ji et al., 2006). Хотелось бы отметить, что для каналов ENaC известна вариабельность данных по проводимости и селективности в зависимости от объекта, условий культивирования, а также их субъединичного состава (например: Kellenberger, Shield, 2002; Ji et al., 2006).
Чтобы подтвердить, что обнаруженные нами в эМСК натриевые каналы принадлежат к семейству ENaC, мы провели их функциональную идентификацию с использованием электрофизиологического подхода и известных активаторов ENaC. Мы обнаружили, что добавление деструктора актиновых филаментов ЦитД приводит к активации натриевых каналов со сходными биофизическими параметрами, что и у каналов в фоне. Данный механизм активации характерен как для эндогенных каналов ENaC в собирательных трубочках почки, так и для каналов в трансфицированных клетках, например, HEK 293 (Karpushev et al., 2010; Morachevskaya, Sudarikova, 2021). Кроме того, активация каналов ENaC при разборке актинового цитоскелета является основным механизмом их регуляции в клетках неэпителиального происхождения, в том числе клетках лейкемии и лимфомы человека (Negulyaev et al., 2000; Sudarikova et al., 2015; Morachevskaya, Sudarikova, 2021).
Сериновую протеазу трипсин часто используют как известный и относительно простой инструмент для идентификации каналов ENaC или повышения их активности до максимального уровня, что вызывается протеолитическим расщеплением альфа- или гамма-субъединиц в зоне экстраклеточных петель (Diakov et al., 2008; Kleyman, Eaton, 2020). В наших экспериментах при добавлении трипсина в пипетку мы регистрировали довольно высокий уровень активности каналов в мембране эМСК (по сравнению с фоновой активностью каналов), что также служит значимым дополнительным аргументом в пользу идентификации обнаруженных нами каналов как каналов ENaC.
Ранее в транспортных эпителиях и на модельных системах (ооцитах Xenopus) показано, что ENaC обладают механочувствительностью и их активность может регулироваться механическими стимулами, такими как проток жидкости (flow activation), который повышает вероятность нахождения каналов в открытом состоянии (Verschuren et al., 2020). Недавние исследования на нейрональных стволовых клетках выявили влияние активности ENaC на клеточную пролиферацию зависимым от протока жидкости образом (Petrik et al., 2018). Кроме того, было показано воздействие механической деформации на дифференцировку МСК, которое опосредовано каналами ENaC (Nam et al., 2020). В совокупности все имеющиеся результаты, а также тот факт, что характер активности и профиль экспрессии ионных каналов в клетках, взятых из различных тканей, могут значительно различаться, дают нам основания рассматривать эМСК как перспективный объект для дальнейшего изучения роли ENaC в клеточных ответах на изменение механических свойств микроокружения.
Список литературы
Васильева В.Ю., Чубинский-Надеждин В.И. 2021. Локальный механозависимый вход кальция контролирует активность кальций-зависимых калиевых каналов высокой и низкой проводимости в клетках лимфомы человека. Цитология. Т. 63. С. 1. (Vasileva V.Y., Chubinskiy-Nadezhdin V.I. 2021. Local mechano-dependent calcium influx controls the activity of calcium-dependent potassium channels of big and small conductance in human lymphoma cells. Tsitologiya. V. 63. P. 1.)
Ведерникова Е.А., Максимов А.В., Негуляев Ю.А. 1999. Функциональная характеристика и молекулярная топология потенциал-независимых натриевых каналов. Цитология. Т. 41. С. 658. (Vedernikova E.A., Maksimov A.V., Neguliaev Iu.A. 1999. Functional characteristic and molecular topology of voltage independent sodium channels. Tsitologiya. V. 41. P. 658.)
Земелько В.И., Гринчук Т.М., Домнина А.П., Арцыбашева И.В., Зенин В.В., Кирсанов А.А., Бичевая Н.К., Корсак В.С., Никольский Н.Н. 2011. Мультипотентные мезенхимные стволовые клетки десквамированного эндометрия: выделение, характеристика и использование в качестве фидерного слоя для культивирования эмбриональных стволовых линий человека. Цитология. Т. 53. С. 919. (Zemel’ko V.I., Grinchuk T.M., Domnina A.P., Artsybasheva I.V., Zenin V.V., Kirsanov A.A., Bichevaia N.K., Korsak V.S., Nikolskii N.N. 2012. Multipotent mesenchymal stem cells of desquamated endometrium: isolation, characterization and use as feeder layer for maintenance of human embryonic stem cell lines. Cell Tissue Biol. V. 6. P. 1.)
Сударикова А.В., Васильева И.О., Морачевская Е.А., Негуляев Ю.А. 2012. Молекулярная и функциональная идентификация натриевых каналов в клетках К562. Цитология. Т. 54. С. 573. (Sudarikova A.V., Vassilieva I.O., Morachevskaya E.A, Negulyaev Y.A. 2012. Molecular and functional identification of sodium channels in K562 cells. Cell Tissue Biol. V. 6. P. 435.)
Сударикова А.В., Чубинский-Надеждин В.И., Васильева В.Ю., Васильева И.О., Морачевская Е.А., Негуляев Ю.А. 2018. Новый механизм активации актинуправляемых натриевых каналов в клетках К562. Цитология. Т. 60. С. 821. (Sudarikova A.V., Chubinskiy-Nadezhdin V.I., Vasileva V.Y., Vassilieva I.O., Morachevskaya E.A., Negulyaev Yu.A. 2018. Novel activatory mechanism of actin-gated sodium channels in K562 cells. Tsitologiya. V. 60. P. 821.)
Сударикова А.В., Шилина М.А., Чубинский-Надеждин В.И., Гринчук Т.М., Морачевская Е.А., Негуляев Ю.А. 2019. Повышенная миграционная способность эндометриальных мезенхимных стволовых клеток при аденомиозе. Цитология. Т. 61. С. 964. (Sudarikova A.V., Shilina M.A., Chubinskiy-Nadezhdin V.I., Grinchuk T.M., Morachevskaya E.A., Negulyaev Y.A. 2020. Increased migration ability of adenomyosis-derived endometrial mesenchimal stem cells. Cell Tiss. Biol. V. 14. P. 190.)
Чубинский-Надеждин В.И., Сударикова А.В., Никольский Н.Н., Морачевская Е.А. 2013. Роль примембранного актинового цитоскелета в регуляции потенциалнезависимых натриевых каналов. Доклады Академии На-ук. Т. 450. С. 112. (Chubinskiy-Nadezhdin V.I., Sudarikova A.V., Nikolsky N.N., Morachevskaya E.A. 2013. Role of submembranous actin cytoskeleton in regulation of non-voltage-gated sodium channels. Dokl. Biochem. Biophys. V. 450. P. 126.)
Чубинский-Надеждин В.И., Шилина М.А., Сударикова А.В., Люблинская О.Г., Негуляев Ю.А., Морачевская Е.А. 2020. Зависимость присутствия кластеризованного ганглиозида GM1 в мембране эндометриальных мезенхимных стволовых клеток от фазы клеточного цикла. Цитология. Т. 62. С. 753. (Chubinskiy–Nadezhdin V.I., Shilina M.A., Sudarikova A.V., Lyublinskaya O.G., Negulyaev Y.A., Morachevskaya E.A. Presence of Clustered GM1 Ganglioside in the Membrane of Endometrial Mesenchymal Stem Cells is Dependent on Cell Cycle Stage. Cell Tiss. Biol. V. 15. P. 120.)
Banu S.K., Lee J., Starzinski-Powitz A., Arosh J.A. 2008. Gene expression profiles and functional characterization of human immortalized endometriotic epithelial and stromal cells. Fertil. Steril. V. 90. P. 972.
Chen L., Qu J., Xiang C. 2019. The multi-functional roles of menstrual blood-derived stem cells in regenerative medicine. Stem Cell Res. Ther. V. 10. P. 1.
Chubinskiy-Nadezhdin V.I., Sudarikova A.V., Shilina M.A., Vasileva V.Y., Grinchuk T.M., Lyublinskaya O.G., Nikolsky N.N., Negulyaev Y.A. 2019. Cell cycle-dependent expression of BK channels in human mesenchymal endometrial stem cells. Sci. Rep. V. 9. P. 4595.
Chubinskiy–Nadezhdin V.I., Vasileva V.Y., Pugovkina N.A., Vassilieva I.O., Morachevskaya E.A., Nikolsky N.N., Negulyaev Y.A. 2017. Local calcium signalling is mediated by mechanosensitive ion channels in mesenchymal stem cells. Biochem. Biophys. Res. Commun. V. 482. P. 563.
Diakov A., Bera K., Mokrushina M., Krueger B., Korbmacher C. 2008. Cleavage in the gamma-subunit of the epithelial sodium channel (ENaC) plays an important role in the proteolytic activation of near-silent channels. J. Physiol. V. 586. P. 4587.
Ding Y., Cui Y., Hou Y., Nie H. 2020. Bone marrow mesenchymal stem cell-conditioned medium facilitates fluid resolution via miR-214-activating epithelial sodium channels. MedComm. V. 1. P. 376.
Ji H.L., Su X.F., Kedar S., Li J., Barbry P., Smith P.R., Matalon S., Benos D.J. 2006. δ-Subunit confers novel biophysical features to αβγ-human epithelial sodium channel (ENaC) via a physical interaction. J. Biol. Chem. V. 281. P. 8233.
Karpushev A.V., Ilatovskaya D.V., Pavlov T.S., Negulyaev Y.A., Staruschenko A. 2010. Intact cytoskeleton is required for small G protein dependent activation of the epithelial Na channel. PLoS One. V. 5. P. e8827. https://doi.org/10.1371/journal.pone.0008827
Kellenberger S., Schild L. 2002. Epithelial sodium channel/degenerin family of ion channels: a variety of functions for a shared structure. Physiol. Rev. V. 82. P. 735.
Kleyman T.R., Eaton D.C. 2020. Regulating ENaC’s gate. Am. J. Physiol. Cell Physiol. V. 318. P. C150.
Mirshahi M., Mirshahi S., Golestaneh N., Nicolas C., Mishal Z., Agarwal M.K. 1998. Mineralocorticoid hormone receptor and the epithelial sodium channel in a human leukemic cell line. Endocrine Res. V. 24. P. 455.
Morachevskaya E.A., Sudarikova A.V. 2021. Actin dynamics as critical ion channel regulator: ENaC and Piezo in focus. Am. J. Physiol. Cell Physiol. V. 320. P. C696.
Nam H.Y., Murali M.R., Ahmad R.E., Pingguan-Murphy B., Raghavendran H.R.B., Kamarul T. 2020. Mechanical strain-mediated tenogenic differentiation of mesenchymal stromal cells is regulated through epithelial sodium channels. Stem Cells Int. V. 18. P. 5385960. https://doi.org/10.1155/2020/5385960
Negulyaev Y.A., Khaitlina S.Y., Hinssen H., Shumilina E.V., Vedernikova E.A. 2000. Sodium channel activity in leukemia cells is directly controlled by actin polymerization. J. Biol. Chem. V. 275. P. 40933.
Petrik D., Myoga M.H., Grade S., Gerkau N.J., Pusch M., Rose C.R., Grothe B., Götz M. 2018. Epithelial sodium channel regulates adult neural stem cell proliferation in a flow-dependent manner. Cell Stem Cell. V. 22. P. 865.
Shumilina E.V., Negulyaev Y.A., Morachevskaya E.A., Hinssen H., Khaitlina S.Y. 2003. Regulation of sodium channel activity by capping of actin filaments. Mol. Biol. Cell. V. 14. P. 1709.
Sudarikova A.V., Tsaplina O.A., Chubinskiy–Nadezhdin V.I., Morachevskaya E.A., Negulyaev Y.A. 2015. Amiloride-insensitive sodium channels are directly regulated by actin cytoskeleton dynamics in human lymphoma cells. Biochem. Biophys. Res. Commun. V. 461. P. 54.
Sudarikova A.V., Vasileva V.Y., Vassilieva I.O., Negulyaev Y.A., Morachevskaya E.A., Chubinskiy-Nadezhdin V.I. 2019. Extracellular protease trypsin activates amiloride-insensitive sodium channels in human leukemia cells. J. Cell. Biochem. V. 120. P. 461.
Verschuren E., Castenmiller C., Peters D., Arjona F. J., Bindels R., Hoenderop J. 2020. Sensing of tubular flow and renal electrolyte transport. Nat. Rev. Nephrol. V. 16. P. 337.
Zhang H., Ding Y., Hou Y., Liu Y., Zhou Z., Nie H. 2020. Bone marrow mesenchymal stem cells derived miRNA-130b enhances epithelial sodium channel by targeting PTEN. Respir. Res. V. 21. P. 329.
Дополнительные материалы отсутствуют.


 Пн.-пт.: 10.00-19.00