

Доклады Российской академии наук. Науки о жизни, 2023, T. 512, № 1, стр. 500-505
Генетическое разнообразие амурского тигра (Panthera tigris altaica): есть ли различия между XX и началом XXI века?
П. А. Сорокин 1, В. Г. Юдин 2, член-корреспондент С. В. Найденко 1, Х. А. Эрнандес-Бланко 1, М. Д. Чистополова 1, академик РАН В. В. Рожнов 1, *
1 Институт проблем экологии и эволюции
им. А.Н. Северцова Российской академии наук
Москва, Россия
2 Федеральный научный центр биоразнообразия наземной биоты Восточной Азии ДВО РАН
Владивосток, Россия
* E-mail: rozhnov-v-2015@yandex.ru
Поступила в редакцию 30.03.2023
После доработки 18.06.2023
Принята к публикации 19.06.2023
- EDN: PHZCOG
- DOI: 10.31857/S268673892360019X
Аннотация
Проанализирован полиморфизм 9 микросателлитных локусов сихотэ-алинской популяции тигра в современный и недавний исторический период с использованием крови, экскрементов и музейных костных образцов. Тесты на прохождение популяцией периода низкой численности при анализе избытка гетерозигот и низкое значение коэффициента Гарза-Вильямсона указывают на высокую вероятность таких событий в недавнем и в историческом прошлом. Средний эффективный размер популяции Ne для современной выборки составил 34.4 (95% интервал 17-106.8). Полученные данные представляют большой интерес для сохранения и восстановления крупных видов кошачьих, находящихся под угрозой исчезновения.
В течение XX в. в состоянии популяции амурского тигра, Panthera tigris altaica (Temminck, 1844) и его ареала происходили большие изменения. Обобщение данных о регистрациях амурского тигра, приведенных в различных источниках, позволило составить карту ареала этого подвида и его динамики на протяжении столетнего периода [1]. Исторически тигр был распространен довольно широко (рис. 1), его ареал охватывал Северо-Восточный Китай, Приморский край, юг Хабаровского края, Еврейскую автономную и Амурскую области, отдельные звери доходили до Забайкалья. К настоящему времени ареал сильно сократился и стал фрагментированным.
Рис. 1.
Распространение амурского тигра [1]: 1 – места встреч амурского тигра в историческое время (по данным литературы), 2 – исторический ареал амурского тигра, 3 – границы ареала в конце XIX в., 4 – современный ареал амурского тигра.
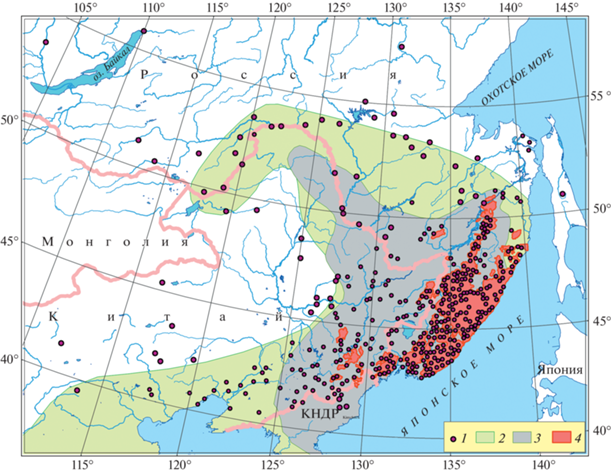
Соответственно изменениям в распространении амурского тигра происходили и драматические изменения его численности. Существует устойчивое мнение о том, что в результате истребления численность тигра в 1940-е гг. достигла минимальных значений – 30–40 особей [2], а затем она за короткое время значительно увеличилась до 500 особей к 1990-м гг. [3] и до 523–540 к 2015 г. [4].
Насколько произошедшие события отразились на генетической изменчивости амурского тигра? Этот вопрос определил цель нашей работы – сравнение генетической изменчивости амурского тигра в исторической ретроспективе – в XX в. и начале XXI в.
МАТЕРИАЛЫ И МЕТОДЫ
В ходе исследования проведен молекулярно-генетический анализ ДНК, выделенной из музейных образов черепов амурского тигра, хранящихся в коллекциях Зоологического музея МГУ и Зоологического института РАН, и проб экскрементов, волос и крови животных этого вида, собранных нами в ходе выполнения “Программы изучения амурского тигра на Российском Дальнем Востоке“ в рамках Постоянно действующей экспедиции РАН по изучению животных Красной книги Российской Федерации и других особо важных животных фауны России.
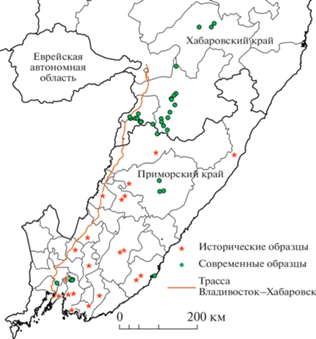
Проанализирован 61 образец от черепов амурских тигров, собранных в период с 1938 по 1994 г. в Хабаровском и Приморском краях (табл. 1). Эти образцы представляли историческую выборку. Для дальнейшего сравнения с данными от 44 животных из современной выборки 2009–2013 гг., опубликованными ранее [5], использованы результаты молекулярно-генетического анализа музейных образцов только от 22 амурских тигров с наиболее полными генетическими профилями. Результаты молекулярно-генетического анализа этих образцов отражают генетическую изменчивость этого подвида в 1938–1994 гг. XX в.
Таблица 1.
Исторические музейные образцы особей амурского тигра (Panthera tigris altaica), использованные для молекулярно-генетического анализа
| Образец | Дата добычи | Место добычи и хранения |
|---|---|---|
| 36332 | 19.12.1981 | Приморский край, Спасский р-н, с. Нововладимировка |
| 36333 | 1978 | Приморский край, Тернейский р-н |
| 36335 | Февраль 1980 | Приморский край, Ольгинский р-н |
| 36336 | 14.01.1987 | Приморский край, Хасанский р-н |
| 36342 | 12.10.1981 | Приморский край, Шкотовский р-н, |
| 36345 | 27.11.1991 | Приморский край, Партизанский р-н, с. Новое |
| 36347 | 1993–1994 | Приморский край, Лесозаводской р-н |
| 36351 | Февраль 1984 | Приморский край, Пожарский р-н, с. Красный яр |
| 36353 | 10.11.1981 | Приморский край, Ольгинский р-н |
| 36354 | 1983–1984 | Приморский край, Чугуевский р-н |
| 36358 | 1965 | Приморский край, Иманский р-н |
| 36361 | 12.01.1987 | Приморский край, Шкотовский р-н, с. Смоляниново |
| 36367 | 17.11.1982 | Приморский край, Черниговский р-н, с. Горный хутор |
| 36371 | 21.01.1986 | Приморский край, Уссурийский з-к |
| 36375 | Апрель 1984 | Приморский край, Анучинский р-н |
| 36376 | Январь 1988 | Приморский край, Чугуевский р-н |
| 36379 | 07.04.1984 | Приморский край, Партизанский р-н |
| 36380 | 28.12.1986 | Приморский край, около Владивостока |
| s34855 | 1938 | Приморский край, Красноармейский р-н, c. Новопокровка,коллекция Зоологического музея МГУ |
| s91581 | 1966 | Приморский край, Находка, коллекция Зоологического музея МГУ |
| s96811 | 1972 | Приморский край, Лазовский р-н, коллекция Зоологического музея МГУ |
| s100000 | Февраль 1974 | Приморский край, Дальнереченский р-н, коллекция Зоологического музея МГУ |
Для исторической и современной выборок исследование проведено на одних и тех же микросателлитных локусах только на территории сихотэ-алинской субпопуляции (рис. 2).
Пробы костной ткани брали из нижней челюсти с помощью дрели Proxxon (Германия) и сверла по металлу диаметром 1–1.2 мм. Измельченную костную ткань хранили при –20°C. Выделение ДНК проводили с помощью набора QIAamp DNA investigator kit (Qiagen, Германия) по протоколу выделения ДНК из костной ткани.
Ядерную ДНК анализировали по описанной ранее методике [5]. ПЦР со всеми праймерами повторяли 4 раза. Обобщенный генотип животных принимали, если гетерозиготные аллели повторялись дважды, а гомозиготные трижды. Изменения в частоте встречаемости аллелей определяли с помощью критерия Фишера, принимая достоверными при уровне значимости p < 0.05. Прохождение популяцией бутылочного горлышка оценивали, используя тесты для определения избытка гетерозигот в программе Bottleneck, v.1.2.0.2 и моделями мутаций I.A.M., T.P.M. и S.M.M. [6]. Ожидаемую гетерозиготность (He), наблюдаемую гетерозиготность (Ho) и М-статистику [7] рассчитывали в программе Arlequin v3.5.1.2. [8]. Эффективный размер популяции Ne рассчитывали методом linkage disequilibrium (LD) в программе NeEstimator V2 [9]. Аллельное разнообразие (allelic richness) рассчитывали в программе Fstat 294 [10].
РЕЗУЛЬТАТЫ И ИХ ОБСУЖДЕНИЕ
Всего получены генетические профили для 22 музейных и 44 современных особей амурского тигра.
Для амурского тигра нами получены данные по частотам 9 микросателлитных локусов (табл. 2), аллельному разнообразию (Ar), ожидаемой гетерозиготности (He), наблюдаемой гетерозиготности (Ho) и значение коэффициента Гарза-Вильямсона (М) (табл. 3).
Таблица 2.
Частоты аллелей (%) 9 микросателлитных локусов в сихотэ-алинской субпопуляции
| Локус | Аллель | Современная выборка | Историческая выборка |
|---|---|---|---|
| e7 | 150 | 6.10 | 6.82 |
| 152 | 90.24 | 90.91 | |
| 156 | 3.66 | 2.27 | |
| fca304 | 128 | 33.33 | 20.45 |
| 134 | 34.52 | 45.45 | |
| 136 | 32.14 | 34.09 | |
| fca43 | 117 | 0 | 4.55 |
| 119 | 11.36 | 18.18 | |
| 123* | 59.09 | 38.64 | |
| 127 | 29.55 | 38.64 | |
| e21b | 160 | 63.64 | 59.52 |
| 162 | 13.94 | 21.43 | |
| 164 | 22.73 | 19.05 | |
| pun935 | 102 | 64 | 59.09 |
| 108 | 34.67 | 31.82 | |
| 120 | 1.33 | 2.27 | |
| 124 | 0 | 6.82 | |
| fca5 | 139* | 38.64 | 61.36 |
| 141 | 36.36 | 25.00 | |
| 143* | 25.00 | 9.09 | |
| 145 | 0 | 4.55 | |
| fca161 | 184 | 4.65 | 15.00 |
| 188 | 1.16 | 0 | |
| 190* | 70.93 | 45.00 | |
| 192* | 23.26 | 40.00 | |
| fca91 | 134 | 2.50 | 0 |
| 140 | 73.75 | 86.84 | |
| 144 | 23.75 | 13.16 | |
| fca441 | 144 | 15.85 | 15.91 |
| 148 | 30.49 | 36.36 | |
| 152 | 32.93 | 25.00 | |
| 156 | 3.66 | 0 | |
| 160 | 15.85 | 18.18 | |
| 164 | 1.22 | 4.55 |
Таблица 3.
Аллельное разнообразие (Ar), ожидаемая гетерозиготность (He), наблюдаемая гетерозиготность (Ho) и значение коэффициента Гарза-Вильямсона (М)
| Локус | Ar (ист.) | Ar (совр.) | Ho (ист.) | He (ист.) | Ho (совр.) | He (совр.) | M (ист.) | M (совр.) |
|---|---|---|---|---|---|---|---|---|
| e7 | 2.862 | 2.999 | 0.09091 | 0.17230 | 0.19512 | 0.18278 | 0.42857 | 0.42857 |
| fca304 | 3.000 | 3.000 | 0.36364 | 0.65011 | 0.69048 | 0.67441 | 0.33333 | 0.33333 |
| fca43 | 3.984 | 3.000 | 0.50000 | 0.68182 | 0.59091 | 0.55695 | 0.36364 | 0.33333 |
| e21b | 3.000 | 3.000 | 0.57143 | 0.57724 | 0.61364 | 0.53083 | 0.60000 | 0.60000 |
| pun935 | 3.862 | 3.000 | 0.63636 | 0.55708 | 0.58333 | 0.47640 | 0.17391 | 0.15789 |
| fca5 | 3.984 | 3.000 | 0.36364 | 0.56342 | 0.72727 | 0.66353 | 0.57143 | 0.60000 |
| fca161 | 3.000 | 3.837 | 0.45000 | 0.63077 | 0.44186 | 0.44569 | 0.33333 | 0.44444 |
| fca91 | 2.000 | 2.991 | 0.26316 | 0.23471 | 0.37500 | 0.40411 | 0.40000 | 0.27273 |
| fca441 | 4.984 | 5.877 | 0.72727 | 0.76216 | 0.95122 | 0.75610 | 0.23810 | 0.28571 |
| Среднее | 0.44071 | 0.53662 | 0.57431 | 0.52120 | 0.38248 | 0.38400 | ||
| s.d. | 0.19585 | 0.20011 | 0.21849 | 0.17184 | 0.13919 | 0.14885 |
Уменьшение аллельного разнообразия Аr при резком уменьшении численности приводит к уменьшению редких аллелей [11]. Анализ исследуемых выборок показал его увеличение на одну аллель для 3 локусов и уменьшение также для 3 локусов (табл. 3). Во всех случаях частоты таких аллелей были меньше 7%. Разнонаправленное изменение значений аллельного разнообразия свидетельствует о том, что выборка проанализированных образцов, по-видимому, не в полной мере отражает генетическое разнообразие исследуемой популяции в разные исторические периоды, так как увеличение числа аллелей в современной выборке по сравнению с исторической в данные малые периоды времени могло произойти только за счет миграций и не могло появиться за счет накопления мутаций в геноме. Достоверное изменение частот аллелей между двумя выборками отмечено для 5 аллелей из 3 локусов.
Эффективный размер популяции (Ne), рассчитанный для исторической выборки, составил 11.4 (95% интервал 5.1–28.8), для современной – 34.4 (95% интервал 17–106.8). Сравнимое значение Ne, рассчитанное LD методом для выборки 2001–2002 гг., составило 26 животных (95% интервал 12–79) [12]. Значительно более низкий эффективный размер популяции для исторической выборки может свидетельствовать о значительно меньшей численности популяции в этот период по сравнению с современной.
Анализ прохождения популяцией бутылочного горлышка по современной выборке по тесту Вилкоксона (Wilcoxon test) при анализе избытка гетерозигот показывает достоверные результаты по всем мутационным моделям I.A.M. (P = = 0.00098), T.P.M. (P = 0.00098), S.M.M. (P = = 0.00098). По исторической выборке по моделям I.A.M. (P = 0.00098) T.P.M. (P = 0.00098), S.M.M. (P = 0.00195) результаты аналогичные. Другие тесты также подтверждают наличие бутылочного горлышка в недавнем историческом прошлом. Достоверное значение теста Вилкоксона при анализе избытка гетерозигот по мутационной модели T.P.M. (P < 0.001) обнаружено также для современной выборки из 15 животных 1999–2000 гг. [13].
Коэффициент M для теста Гарза-Вильямсона, оценивающий бутылочное горлышко в более раннем историческом периоде (больше 100 поколений назад), для обеих выборок составил 0.38, что значительно ниже пороговой величины M = = 0.68, характерной для предположительно стабильных популяций [7]. В других исследованиях бутылочное горлышко в этот период не подтверждается, при этом значение М составило 0.67 [12] и 0.835 [13]. По данным митохондриальной ДНК в современной популяции описано 3 гаплотипа, что также подтверждает бутылочное горлышко [14]. Это может быть также связано с изначально низкой численностью особей основателей, пришедших на современную территорию обитания амурского тигра около 10 000 лет из Центральной Азии [15].
Таким образом, в отличие от предыдущих исследований в нашей работе впервые подтверждено прохождение популяцией периода низкой численности сразу двумя принципиально разными моделями. Предполагается, что популяция проходила как минимум два таких периода – в историческом (около 10 000 лет назад [14]) и в недавнем (середина ХХ в. [2]) прошлом.
Список литературы
Рожнов В.В., Найденко С.В., Эрнандес-Бланко Х.А., Чистополова М.Д., и др. // Зоол. журн. 2021. Т. 100. № 1. С. 79–103.
Капланов Л.Г. // Тигр. Изюбрь. Лось. М.: Изд-во Моск. о-ва испытателей природы. 1948. Новая серия. Отд. зоол. Вып. 14 (29). С. 18–49.
Матюшкин Е.Н., Пикунов Д.Г., Дунишенко Ю.М., Микуэлл Д., и др. // Редкие виды млекопитающих России и сопредельных территорий. М.: ВТО РАН. 1999. С. 242–271.
Дунишенко Ю.М., Арамилев С.В. Амурский тигр: некоронованный властелин тайги. М.: АНО “Центр “Амурский тигр“. 2020. 96 с.
Sorokin P.A., Rozhnov V.V., Krasnenko A.U., Lukarevskiy V.S., et al. // Integrative Zoology. 2016. V. 11. № 1. P. 25–32.
Piry S., Luikart G., Cornuet J.M. // Journal of Heredity. 1999. V. 90. P. 502–503.
Garza J.C., Williamson E.G. // Molecular Ecology. 2001. V. 10. P. 305–318.
Excoffier L.G., Lischer H.E.L. // Mol. Ecol. Resour. 2010. V. 10. P. 564–567.
Do C., Waples R.S., Peel D., Macbeth G.M., et al. // Molecular Ecology Resources. 2014. V. 14(1). P. 209–214.
Goudet J. Fstat (ver. 2.9.4), a program to estimate and test population genetics parameters. 2003. Available from http://www.unil.ch/izea/softwares/fstat. html Updated from Goudet [1995].
Peery M.Z., Kirby R., Reid B.N., Stoelting R., et al. // Molecular ecology. 2012. P. 21 (14). P. 3403–3418.
Henry P., Miquelle D., Sugimoto T., Mccullough D.R., et al. // Molecular Ecology. 2009. V. 18. Issue 15. P. 3173–3184.
Alasaad S., Soriguer R.C., Chelomina G., Sushitsky Y.P., Joerns Fickel J. // Mammalian Biology. 2011. Vol. 76. P. 722–726.
Russello M.A., Gladyshev E., Miquelle D., Caccone A. // Conservation Genetics. 2004. V. 5. P. 707–713.
Driscoll C.A., Yamaguchi N.C., Bar-Gal G. K., Roca A.L., et al. // PLoS ONE. 2009. 4 (1). P. 1–8.
Дополнительные материалы отсутствуют.
Инструменты
Доклады Российской академии наук. Науки о жизни


 Пн.-пт.: 10.00-19.00