

Доклады Российской академии наук. Науки о жизни, 2023, T. 512, № 1, стр. 511-516
На о. Колгуев обнаружены две линии панцирных клещей, морфологически соответствующие циркумполярному виду Ameronothrus nigrofemoratus (acari, oribatida), но генетически различающиеся на уровне видов
В. С. Артамонова 1, М. С. Бизин 1, *, Б. Д. Ефейкин 1, О. Л. Макарова 1
1 Институт проблем экологии и эволюции
им. А.Н. Северцова Российской академии наук
Москва, Россия
* E-mail: microtus@list.ru
Поступила в редакцию 25.06.2023
После доработки 30.06.2023
Принята к публикации 04.07.2023
- EDN: SRXRBP
- DOI: 10.31857/S268673892370035X
Аннотация
Генетические особенности орибатид вида Ameronothrus nigrofemoratus, обитающих циркумполярно на побережье арктических морей, до настоящего времени были известны только для клещей с территории Канады. Изучение частичной последовательности COI мтДНК особей, соответствующих данному виду по морфологическим признакам, показало, что на о. Колгуев совместно обитают клещи, относящиеся к двум сильно дивергировавшим филогенетическим линиям (7%), ни одна из которых на побережье Канады не обнаружена. Аминокислотная последовательность цитохромоксидазы I представителей одной из линий имеет четыре замены по сравнению с последовательностью североамериканских A. nigrofemoratus, что соответствует уровню различий между A. nigrofemoratus и сестринским видом A. lineatus.
Клещи рода Ameronothrus обычны на морских литоралях в Голарктике. На большей части побережья Северного Ледовитого океана обитают только два представителя рода: A. lineatus (Thorell, 1871) и A. nigrofemoratus (L. Koch, 1879) [1, 2]. Последний населяет соленые марши, встречаясь практически циркумполярно (рис. 1), что делает его удобным модельным объектом для филогеографических исследований в Арктике. Однако генетически этот массовый вид был охарактеризован только в двух районах Канады [3–5] (рис. 1), а обширная евразийская часть ареала пока оставалась неизученной.
Рис. 1.
Ареал Ameronothrus nigrofemoratus: сплошная линия – участки побережья, где обитание вида подтверждено сборами; пунктир – районы предполагаемого обитания. Цветными кружками отмечены места сбора проанализированного материала. Белые кружки – отметки вида на островах.
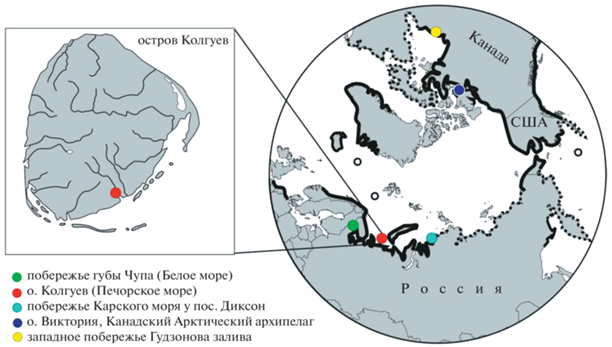
Видовую принадлежность клещей определяли, используя ключи [6, 2]. Сведения об изученных экземплярах представлены в табл. 1.
Таблица 1.
Характеристика материала, исследованного экспериментально
| Место сбора материала | Дата сбора материала | Координаты точки сбора материала | Число образцов (F/M/N) * | Выявленные гаплотипы для (F, M, N) * | № в GenBank |
|---|---|---|---|---|---|
| О. Колгуев (Печорское море) | 2018 | 68°47′32.9″ с.ш. 49°19′17.9″ в.д. | (0/0/8) | N: A1 – 6, B1 – 2 | – |
| 2022 | (5/9/0) | F: A1 – 4, B1 – 1 M: A1 – 8, B1 – 1 |
F: A1 – OQ976918, B1 – OQ976920 M: A1 – OQ976919, B1 – OQ976921 |
||
| Побережье губы Чупа (Белое море) | 2017 | 66°16′03.3″ с.ш. 33°03′54.8″ в.д. | (1/1/4) | F: B1 – 1 M: B2 – 1 N: C2 – 2, C5 – 2 |
F: B1 – OQ976910 M: B2 – OQ976909 N: C2 – OQ976912, C5 – OQ976911 |
| Пос. Диксон (Карское море) | 2017 | 73°30′36.1″ с.ш. 80°30′12.0″ в.д. | (2/3/2) | F: C11 – 1, CD1 – 1 M: C7 – 1, CD1 – 2 N: C7 – 1, C10 – 1 |
F: C11 – OQ976917, CD1 – OQ976913 M: C7 – OQ976915, CD1 – OQ976914 N: C10 – OQ976916 |
ДНК экстрагировали из отдельных особей, бóльшая часть ваучеров смонтирована на предметные стекла для морфологического изучения. Амплификацию фрагмента гена COI мтДНК с парой праймеров LepF1/LepR1 [7] проводили по протоколу (https://ccdb.ca/site/wp-content/uploads/2016/09/CCDB_Amplification.pdf). Секвенирование выполнено на базе ЦКП “Геном” ИМБ РАН.
Нуклеотидные последовательности анализировали в редакторе BioEdit 7.2, определяя наборы гаплотипов COI для представителей Ameronothrus, собранных в каждом локалитете. Последовательности, соответствующие этим гаплотипам, депонированы в базу данных GenBank (https://www.ncbi.nlm.nih.gov/genbank/) с присвоением номеров (табл. 1).
В GenBank (Nucleotide collection) проведен поиск последовательностей, сходных с полученными нами. Те последовательности, которые перекрывали участок мтДНК, изученный нами, представлены в табл. 2. Наряду с последовательностями, охарактеризованными в этой работе, они использованы для построения сети гаплотипов (Network 10.2.0.0, www.fluxus-engineering.com) с применением опции “Median Joining” (вес нуклеотидных позиций, где имели место транзиции, составлял 10, трансверсии – 20; вес позиций, замены в которых приводили к заменам в аминокислотной последовательности – 30). Для построения сети гаплотипов использовали участок последовательности длиной 647 п.н. Места сбора использованного материла представлены на рис. 1, в табл. 1 и табл. 2.
Таблица 2.
Последовательности из GenBank, использованные при построении медианной сети гаплотипов
| № п/п | Вид по GenBank | № в GenBank | Координаты точки сбора материала | Гаплотипы (обозначения на Network) | Литературный источник |
|---|---|---|---|---|---|
| 1 | Ameronothrus sp. | MN358653.1 | 58.786 с.ш. 94.202 з.д. |
C1 | [3] |
| 2 | Ameronothrus sp. | MN357728.1 | 58.786 с.ш. 94.202 з.д. |
C2 | [3] |
| 3 | A. nigrofemoratus | HQ558524.1 | 58.7524 с.ш. 93.26 з.д. |
C3 | iBOL Data Release (Unpublished) |
| 4 | A. nigrofemoratus | MN665624.1 | 69.1214 с.ш. 103.209 з.д. | C4 | [5] |
| 5 | A. nigrofemoratus | MN674986.1 | 69.1214 с.ш. 103.209 з.д. | C4 | [5] |
| 6 | A. nigrofemoratus | MN675575.1 | 69.1214 с.ш. 103.209 з.д. | C4 | [5] |
| 7 | Ameronothrus sp. | JX834611.1 | 58.771 с.ш. 93.844 з.д. |
C6 | [4] |
| 8 | A. nigrofemoratus | JX835019.1 | 58.769 с.ш. 93.845 з.д. |
C6 | [4] |
| 9 | Ameronothrus sp. | JX836451.1 | 58.769 с.ш. 93.845 з.д. |
C6 | [4] |
| 10 | A. nigrofemoratus | JX836478.1 | 58.769 с.ш. 93.845 з.д. |
C6 | [4] |
| 11 | A. nigrofemoratus | JX836498.1 | 58.781 с.ш. 94.199 з.д. |
C6 | [4] |
| 12 | A. nigrofemoratus | HQ558525.1 | 58.7524 с.ш. 93.26 з.д. |
C6 | iBOL Data Release (Unpublished) |
| 13 | Ameronothrus sp. | JX834650.1 | 58.771 с.ш. 93.844 з.д. |
C7 | [4] |
| 14 | Ameronothrus sp. | JX836006.1 | 58.769 с.ш. 93.862 з.д. |
C7 | [4] |
| 15 | A. nigrofemoratus | HQ558526.1 | 58.7524 с.ш. 93.26 з.д. |
C7 | iBOL Data Release (Unpublished) |
| 16 | Ameronothrus sp. | JX833692.1 | 58.781 с.ш. 94.199 з.д. |
C8 | [4] |
| 17 | Ameronothrus sp. | JX836609.1 | 58.771 с.ш. 93.843 з.д. |
C9 | [4] |
| 18 | A. nigrofemoratus | JX837098.1 | 58.769 с.ш. 93.862 з.д. |
C9 | [4] |
Для особей, смонтированных на предметных стеклах (табл. 1), отмечали пол и изучали изменчивость следующих морфологических признаков: длина тела и ног (без тазиков и амбулакрумов); длина и ширина створок генитального и анального клапанов; длина ростральных (ro), ламеллярных (le) и ботридиальных щетинок (ss) и расстояние между ними в парах; длина нотогастральных щетинок с1, с2, с3; максимальная длина нотогастральных щетинок в сериях d (da, dm, dp), l (la, lm, lp), h (h1–3); длина коготков и члеников ног I–IV (бедро, голень, лапка); длина брахиотрахей на бедрах и голенях I–IV; длина соленидиев ω', ω" на лапке I и соленидия φ на голени I; длина щетинок pv' на лапках I–II, щетинок v' на голенях I–II, щетинок l' на бедрах I–II, щетинок d и l" на бедрах и голенях I–IV; минимальная длина щетинок tc на лапках I–II и максимальная длина tc на лапках III–IV; степень опушения щетинок pv' на лапках, v' на голенях, l' и d на бедрах ног I–II. Ординацию выполняли в программе PAST 3.26 методом главных компонент [8].
Анализ частичной последовательности COI мтДНК клещей, собранных в 2018 г. на о. Колгуев и определенных по морфологии как A. nigrofemoratus, показал, что в выборке присутствуют носители только двух гаплотипов: А1 – шесть особей и B1 – две особи. Последовательности этих вариантов различаются на 45 нуклеотидов (около 7%). Это значительно превышает стандартный уровень различий между близкими видами, который в 98% случаев составляет около 2% [9]. Более того, частичные аминокислотные последовательности, кодируемые данными вариантами, различались на четыре аминокислотных остатка, что ставит под сомнение принадлежность выявленных гаплотипов представителям одного и того же вида.
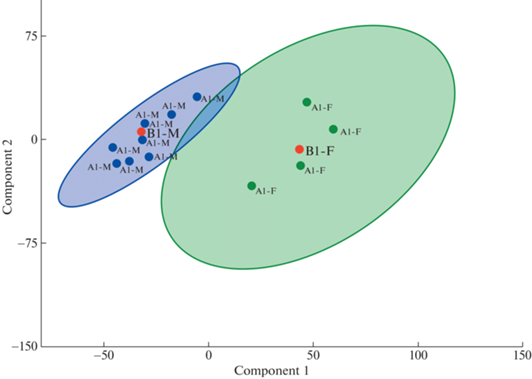
В 2022 г. мы получили пробы из того же локалитета на о. Колгуев, что позволило проверить предварительный результат, а также исключить возможное присутствие на острове локальных партеногенетических популяций. Для каждой особи из этих сборов были проверены все диагностические признаки A. nigrofemoratus и определен пол. Среди пяти изученных самок четыре оказались носителями гаплотипа А1, а одна – носителем гаплотипа B1. Среди самцов восемь имели гаплотип А1 и один – гаплотип B1. Исследование внешнего строения этих самцов и самок показало отсутствие морфологических различий между особями, относящимися к филогенетическим линиям A и B (рис. 2).
Рис. 2.
Ординация (метод главных компонент) изученных особей, соответствующих по морфологическим признакам A. nigrofemoratus, с о. Колгуев (2022 г.) по комплексу морфологических признаков. Самцы имеют индекс “M”, самки – “F”. A1 и B1 – гаплотипы особей, для которых были изучены морфологические признаки.
Сеть гаплотипов (рис. 3) иллюстрирует взаимоотношения между филогенетическими линиями A и B и группой гаплотипов С, распространенных на побережье Канады. Линии А и В самостоятельны, хотя аминокислотная последовательность, кодируемая вариантом B1, полностью соответствует таковой для последовательностей, кодируемых гаплотипами группы С, а аминокислотная последовательность для A1 отличается от них на четыре аминокислотных остатка. Любопытно, что различия в аминокислотных последовательностях такого же уровня наблюдаются между A. nigrofemoratus (гаплотипы группы C) и сестринским A. lineatus (MZ626323.1). При этом различия между аминокислотными последовательностями носителей гаплотипа А1 с о. Колгуев и A. lineatus составляют восемь аминокислотных остатков.
Рис. 3.
Сеть гаплотипов для частичной последовательности мтДНК COI клещей, соответствующих по морфологическим признакам A. nigrofemoratus, и особей, аннотированных в GenBank как Ameronothrus sp., но имеющих последовательности мтДНК COI, отличающиеся от соответствующих последовательностей A. nigrofemoratus не более, чем на один нуклеотид. Цвет кругов соответствует цвету точек на карте (рис. 1), в которых носители данных гаплотипов были найдены. Площади кругов пропорциональны числу локалитетов, где обнаружены особи с данным гаплотипом. Длины отрезков пропорциональны числу нуклеотидных замен. Для длинных ветвей число нуклеотидных замен приведено в точках разрыва ветви. Цифрами в скобках обозначено число аминокислотных замен в белке, кодируемом последовательностью.
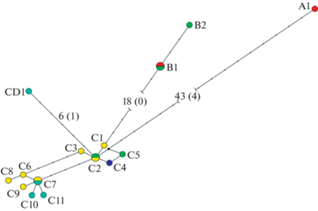
Различия между последовательностями особей из Канады (гаплотипы группы C) и последовательностью гаплотипа В1 с о. Колгуев достигали почти 3%, указывая либо на то, что их носители принадлежат к разным видам, либо на то, что один из вариантов происходит от некоего изолята, возможно, подвидового ранга. Однако, поскольку аминокислотные последовательности для гаплотипов группы С и линии B оказались идентичными, более вероятно, что все носители этих гаплотипов – особи одного вида.
Чтобы понять, какие варианты COI A. nigrofemoratus (близкие к В1 или относящиеся к группе С) обычны для региона, мы дополнительно изучили материал из двух других районов побережья Северного Ледовитого океана к западу и востоку от о. Колгуев: губы Чупа Белого моря и берега Карского моря вблизи пос. Диксон (табл. 1, рис. 1).
На этой части ареала клещи, определенные морфологически как A. nigrofemoratus, генетически гораздо разнообразнее, чем в Северной Америке (рис. 3). Так, у особей из обследованных районов найдены варианты последовательностей, точно соответствующие североамериканским, и близкие к ним (1–2 нуклеотидные замены). В то же время у пос. Диксон встречались особи, относящиеся к самостоятельной филогенетической линии (гаплотип CD1, 1 аминокислотная замена по сравнению с последовательностями группы С). У клещей с побережья Чупинской губы, наряду с вариантами из кластера C, обнаружились также варианты, относящиеся к линии B (рис. 3).
Нельзя исключать, что при увеличении выборок в этих локалитетах могут обнаружиться носители гаплотипов и других филогенетических линий. Однако понятно, что носители гаплотипов группы C имеют циркумполярное распространение. Интересно, что при этом на о. Колгуев носители гаплотипов данной группы не обнаружены, несмотря на двукратные сборы материала и значительное число изученных экземпляров (22).
Выполненное исследование позволяет предполагать, что в Евразии, помимо собственно вида A. nigrofemoratus, обитает, по крайней мере, еще один, не описанный ранее вид панцирных клещей, близкий A. nigrofemoratus по морфологическим и экологическим характеристикам, но имеющий генетические отличия, сопоставимые с различиями между “несомненными” видами A. nigrofemoratus и A. lineatus. Нельзя исключить, что в данном случае речь идет о так называемых видах-двойниках. Однако для уточнения таксономического статуса носителей гаплотипа A1 с о. Колгуев необходимо сравнение морфологических признаков этих клещей с признаками особей, относящихся к группе С, причем обитающих в разных регионах, чтобы исключить географическую составляющую изменчивости.
В этой связи интересно, что фауна Колгуева в целом обладает рядом особенностей: здесь отсутствуют мышевидные млекопитающие [10], обитают сразу два вида корюшек – европейская и азиатская [11]; отсюда же был описан новый род пиявок (Hyperboreomyzon), найденный только в двух арктических регионах [12]. Наши данные также указывают на своеобразие фауногенетических процессов на острове.
Список литературы
Makarova O., Behan-Pelletier V. Oribatida (=Cryptostigmata, Beetle Mites) // The Greenland Entomofauna. An Identification Manual of Insects, Spiders and Their Allies Leiden: Brill. 2015. P. 802–845.
Behan-Pelletier V., Lindo Z. Oribatid Mites: Biodiversity, Taxonomy and Ecology. Boca Raton: CRC Press. 2022. 494 pp.
Young M.R., Proctor H.C., deWaard J.R., et al. DNA barcodes expose unexpected diversity in Canadian mites // Mol. Ecol. 2019. V. 28. P. 5347–5359.
Young M.R., Behan-Pelletier V.M., Hebert P.D.N. Revealing the hyperdiverse mite fauna of subarctic Canada through DNA barcoding // PLoS ONE. 2012. V. 7 (11). P. e48755.
Pentinsaari M., Blagoev G.A., Hogg I.D., et al. A DNA Barcoding survey of an Arctic arthropod community: implications for future monitoring // Insects. 2020. V. 11. № 1. P. 1–18.
Schubart H. Morphologische Grundlagen für die Klärung der Verwandtschaftsbeziehungen innerhalb der Milbenfamilie Ameronothridae (Acari, Oribatei) // Zoologica. 1975. V. 123. S. 23–91.
Hebert P.D.N., Penton E.H., Burns J.M., et al. Ten species in one: DNA barcoding reveals cryptic species in the neotropical skipper butterfly Astraptes fulgerator // PNAS. 2004. V. 101 (41). P. 14812–14817.
Hammer Ø., Harper D.A.T., Ryan P.D. PAST: Paleontological statistics software package for education and data analysis // Palaeontol. Electron. 2001. V. 4 (1). P. 1–9.
Hebert P.D.N., Ratnasingham S., deWaard J.R. Barcoding animal life: cytochrome c oxidase subunit 1 divergences among closely related species // Proc. R. Soc. B (Suppl.). 2003. V. 270. P. S96–S99.
Ануфриев В.В. Наземные млекопитающие островов Печорского моря // Зоол. журн. Т. 98. № 6. С. 684–690.
Артамонова В.С., Махров А.А., Попов И.Ю. и др. Европейская корюшка Osmerus eperlanus (Linnaeus, 1758) на острове Колгуев (Баренцево море) и причины, ограничивающие распространение этого вида в Арктике // Сиб. экол. журн. 2020. Т. 27. № 2. С. 160–166.
Bolotov I.N., Kondakov A.V., Eliseeva T.A., et al. Cryptic taxonomic diversity and high‑latitude melanism in the glossiphoniid leech assemblage from the Eurasian Arctic // Sci. Rep. 2022. V. 12. P. 20630.
Дополнительные материалы отсутствуют.
Инструменты
Доклады Российской академии наук. Науки о жизни


 Пн.-пт.: 10.00-19.00