

Известия РАН. Серия биологическая, 2023, № 5, стр. 463-476
Характеристика физиолого-биохимических свойств гриба Nigrospora gorlenkoana Novobr., распространенного на зерновых культурах
А. С. Орина 1, *, О. П. Гаврилова 1, Т. Ю. Гагкаева 1
1 Всероссийский научно-исследовательский институт защиты растений (ВИЗР)
196608 Санкт-Петербург, ш. Подбельского, 3, Россия
* E-mail: orina-alex@yandex.ru
Поступила в редакцию 14.06.2022
После доработки 11.07.2022
Принята к публикации 25.04.2023
- EDN: WCWAPT
- DOI: 10.31857/S1026347022600546
Аннотация
Установлено повсеместное распространение грибов рода Nigrospora в микобиоте зерновых культур на территории России. Четырнадцать штаммов Nigrospora с использованием филогенетического анализа ITS, tub и TEF локусов были идентифицированы как N. gorlenkoana, впервые выявленный в России. На различных питательных средах проанализированы морфолого-культуральные свойства штаммов N. gorlenkoana. Установлен широкий температурный диапазон 15–25°С оптимальный для роста N. gorlenkoana, что обуславливает его повсеместное распространение в природе. Показана патогенность N. gorlenkoana по отношению к зерновым культурам – длина проростков пшеницы и ячменя под воздействием штаммов гриба снижалась и в среднем составила 48 и 39% от контроля, соответственно.
Род Nigrospora Zimm. (Apiosporaceae, Xylariales, Sordariomycetes) установлен немецким ботаником Альбрехтом Циммерманном (Albrecht Zimmermann) в 1902 г. при описании вида N. panici Zimm., выделенного из листьев злакового растения Panicum amphibium Steud., собранного на острове Ява. Грибы рода Nigrospora образуют одиночные, черные, блестящие, одноклеточные конидии, как правило, округлой формы на монобластических конидиогенных клетках (Mason, 1927). Изначально, классификация видов Nigrospora основывалась, главным образом, на размерах конидий. Часто упоминаемые в научных публикациях виды N. oryzae (Berk. & Broome) Petch и N. sphaerica (Sacc.) E.W. Mason были обособлены на основании размеров спор: 13–15 и 15–20 мкм, соответственно (Mason, 1927).
Современные исследования показывают возможность точной видовой идентификации Nigrospora только с помощью полифазного подхода, включающего установление морфологических, экологических, физиологических и молекулярно-генетических характеристик (Wang et al., 2017; Raza et al., 2019; Hao et al., 2020). Для дифференциации видов Nigrospora и их аккуратной идентификации в филогенетический анализ включают последовательности нескольких локусов – внутреннего транскрибируемого спейсера рибосомальной РНК ITS, гена β-тубулина tub, гена фактора элонгации трансляции TEF, большой субъединицы рибосомальной РНК LSU (Wang et al., 2017; Crous et al., 2019; Hao et al., 2020). К настоящему времени род Nigrospora объединяет 33 валидных видовых таксона, штаммы которых часто включают в микологические и филогенетические исследования (Crous et al., 2019; Raza et al., 2019; Hao et al., 2020; de Silva et al., 2021). Таксономический статус еще восьми видовых эпитетов, в т. ч. типового вида рода, образец которого был утерян, требует уточнения (Wang et al., 2017; Hao et al., 2020).
Интерес к детальному изучению грибов Nigrospora достаточно высок, поскольку, с одной стороны, их рассматривают как вредоносные организмы, оказывающие негативное влияние на растения (Harwooda et al., 1995; Рубежняк, 2013; Wright et al., 2008; Wang et al., 2017; Rashmi et al., 2019; Raza et al., 2019; Hao et al., 2020; Pan et al., 2020; Матвиенко, Кинчарова, 2020), а с другой стороны как представителей микобиоты, продуцирующих вторичные метаболиты, защищающие растения от неблагоприятных абиотических и биотических факторов (Kim et al., 2001; Ramesha et al., 2020). Показано, что некоторые метаболиты грибов рода Nigrospora обладают антивирусными, антибиотическими, фунгицидными (Starratt, Loschiavo, 1974; Rathod et al., 2014; Waill et al., 2022) и инсектицидными свойствами (Meepagala et al., 2015). Виды рода Nigrospora были выделены не только из растений (Sharma et al., 2013; Hao et al., 2020), но также из лишайников (Oh et al., 2020), насекомых (Wu et al., 2018; Aghyl et al., 2021) и морских объектов (Zhang et al., 2009; Sun et al., 2014). В русскоязычной научной литературе, как правило, упоминается только вид N. oryzae как патоген кукурузы и других растений (http://www.agroatlas.ru/ ru/content/diseases/Zeae/Zeae_Nigrospora_oryzae). До настоящего время целенаправленное изучение разнообразия и распространения этих грибов в РФ не проводилось.
Целью исследования являлось выявление видового разнообразия грибов рода Nigrospora, встречающихся на злаковых культурах, а также характеристика их физиолого-биохимических свойств.
МАТЕРИАЛЫ И МЕТОДЫ
Создание коллекции штаммов грибов рода Nigrospora. Анализировали 262 образца зерна урожая 2017–2021 гг., собранных в Приволжском (n = 1), Северо-Кавказском (n = 20), Сибирском (n = 105), Уральском (n = 61), Центральном (n = 67) и Южном (n = 8) федеральных округах. Среди них было 169 образцов пшеницы, 38 – овса и 55 – ячменя. Оценку зараженности зерна грибами проводили общепринятым микологическим методом (Гагкаева, 2009).
В результате анализа микобиоты зерна в коллекцию лаборатории микологии и фитопатологии ФГБНУ ВИЗР было депонировано более 40 штаммов Nigrospora spp., из которых для дальнейших исследований были рандомизированно выбраны 16 штаммов. Также в исследование были включены три штамма Nigrospora, выделенные из тростника, из зерна кукурузы и семян рапса (табл. 1).
Таблица 1.
Штаммы грибов, использованные в филогенетическом исследовании
| Вид | Номер штамма в коллекции | Растение-хозяин, субстрат | Страна, регион | Год | Номер нуклеотидной последовательности в GenBank | ||
|---|---|---|---|---|---|---|---|
| ITS | TEF | tub | |||||
| Arthrinium arundinis | CBS 114316* | Hordeum vulgare | Иран | KF144884 | KF145016 | KF144974 | |
| A. arundinis | MFG 70050** | Пшеница, зерно | Россия, Краснодарский край | 2019 | OK563249*** | OK626387 | OK626371 |
| Nigrospora aurantiaca | CGMCC3.18130 Т | Nelumbo sp., листья | Китай | KX986064 | KY019295 | KY019465 | |
| N. bambusae | CGMCC3.18327 Т | Бамбук, листья | Китай | KY385307 | KY385313 | KY385319 | |
| N. brasiliensis | CMM1214 T | Nopalea cochenillifera | Бразилия | KY569629 | MK753271 | MK720816 | |
| N. camelliae-sinensis | CGMCC3.1812 Т | Camellia sinensis | Китай | KX985986 | KY019293 | KY019460 | |
| N. chinensis | CGMCC3.18127 Т | Machilus breviflora | Китай | KX986023 | KY019422 | KY019462 | |
| N. falsivesicularis | CGMCC 3.19678 T | Saccharum officinarum, листья | Китай | MN215778 | MN264017 | MN329942 | |
| N. globosa | CGMCC3.19633 T | Почва | Китай | MK329121 | MK336056 | MK336134 | |
| N. gorlenkoana | CBS 480.73 Т | Vitis vinifera | Казахстан | KX986048 | KY019420 | KY019456 | |
| N. gorlenkoana | MFG 70030 | Пшеница, зерно | Россия, Республика Башкирия | 2018 | OK563236 | OK626374 | OK626358 |
| N. gorlenkoana | MFG 70031 | Пшеница, зерно | Россия, Белгородская обл. | 2020 | OK563237 | OK626375 | OK626359 |
| N. gorlenkoana | MFG 70032 | Пшеница, зерно | Россия, Воронежская обл. | 2020 | OK563238 | OK626376 | OK626360 |
| N. gorlenkoana | MFG 70033 | Пшеница, зерно | Россия, Краснодарский край | 2018 | OK563239 | OK626377 | OK626361 |
| N. gorlenkoana | MFG 70034 | Пшеница, зерно | Россия, Краснодарский край | 2020 | OK563240 | OK626378 | OK626362 |
| N. gorlenkoana | MFG 70036 | Пшеница, зерно | Россия, Новосибирская обл. | 2018 | OK563241 | OK626379 | OK626363 |
| N. gorlenkoana | MFG 70038 | Пшеница, зерно | Россия, Омская обл. | 2018 | OK563242 | OK626380 | OK626364 |
| N. gorlenkoana | MFG 70039 | Пшеница, зерно | Россия, Псковская обл. | 2018 | OK563243 | OK626381 | OK626365 |
| N. gorlenkoana | MFG 70040 | Пшеница, зерно | Россия, Ростовская обл. | 2020 | OK563244 | OK626382 | OK626366 |
| N. gorlenkoana | MFG 70042 | Пшеница, зерно | Россия, Тамбовская обл. | 2020 | OK563245 | OK626383 | OK626367 |
| N. gorlenkoana | MFG 70044 | Пшеница, зерно | Россия, Челябинская обл. | 2019 | OK563246 | OK626384 | OK626368 |
| N. gorlenkoana | MFG 70045 | Пшеница, зерно | Россия, Республика Чечня | 2019 | OK563247 | OK626385 | OK626369 |
| N. gorlenkoana | MFG 70048 | Рапс, семена | Россия, Ленинградская обл. | 2020 | OK563248 | OK626386 | OK626370 |
| N. gorlenkoana | MFG 70051 | Овес, зерно | Россия, Московская обл. | 2020 | OK563250 | OK626388 | OK626372 |
| N. guilinensis | CGMCC3.18124 Т | Camellia sinensis | Китай | KX985983 | KY019292 | KY019459 | |
| N. hainanensis | CGMCC3.18129 Т | Musa paradisiaca | Китай | KX986091 | KY019415 | KY019464 | |
| N. lacticolonia | CGMCC3.18123 Т | Camellia sinensis | Китай | KX985978 | KY019291 | KY019458 | |
| N. macarangae | MFLUCC 19-0141 T | Macaranga tanarius, листья | Тайвань | MW114318 | |||
| N. magnoliae | LC 6704 | Camellia sinensis | Китай | KX986047 | KY019373 | KY019571 | |
| N. magnoliae | MFLUCC 19-0112 T | Magnolia liliifera, листья | Китай | MW285092 | MK753271 | MW438334 | |
| N. musae | CBS 319.34 Т | Musa paradisiaca | Австралия | KX986076 | KY019419 | KY019455 | |
| N. oryzae | LC 6759 | Oryza sativa | Китай | KX986054 | KY019374 | KY019572 | |
| N. osmanthi | CGMCC3.18126 Т | Osmanthus sp. | Китай | KX986010 | KY019421 | KY019461 | |
| N. pyriformis | CGMCC3.18122 Т | Citrus sinensis | Китай | KX985940 | KY019290 | KY019457 | |
| N. rubi | CGMCC3.18326 Т | Rubus sp. | Китай | KX985948 | KY019302 | KY019475 | |
| N. saccharicola | CGMCC3.19362 T | Saccharum officinarum, листья | Китай | MN215788 | MN264027 | MN329951 | |
| N. sacchari-officinarum | CGMCC3.19335 T | Saccharum officinarum, корни | Китай | MN215791 | MN264030 | MN329954 | |
| N. singularis | CGMCC3.19334 T | Saccharum officinarum, корни | Китай | MN215793 | MN264032 | MN329956 | |
| N. sphaerica | LC7298 | Nelumbo sp. | Китай | KX985937 | KY019401 | KY019606 | |
| N. vesicularifera | CGMCC3.19333 T | Saccharum officinarum, листья | Китай | MN215812 | MN264051 | MN329975 | |
| N. vesicularis | CGMCC3.18128 | Musa paradisiaca | Китай | KX986088 | KY019294 | KY019463 | |
| N. zimmermanii | CBS 290.62 Т | Saccharum officinarum | Эквадор | KY385309 | KY385311 | KY385317 | |
| Nigrospora sp. 1 | LC 2725 | Symplocos zizyphoides | Китай | KX985960 | KY019313 | KY019487 | |
| Nigrospora sp. | MFG 70052 | Phragmites sp. | Приморский край | 2010 | OK563251 | OK626389 | OK626373 |
Примечание. * – Штаммы, нуклеотидные последовательности которых использовались в филогенетическом анализе в качестве референсных; ** – полужирным шрифтом отмечены исследуемые штаммы из коллекции лаборатории микологии и фитопатологии ВИЗР; *** – полужирным шрифтом отмечены нуклеотидные последовательности, полученные в данном исследовании.
Молекулярно-генетическая идентификация штаммов. Экстракцию ДНК проводили из 10–50 мг мицелия, собранного с поверхности колонии гриба, выращенной на картофельно-сахарозной агаризованной среде (КСА), с помощью набора Genomic DNA Purification Kit (Thermo Fisher Scientific, Литва) согласно протоколу производителя.
Амплификацию фрагментов внутреннего транскрибируемого спейсера рДНК (ITS), генов β-тубулина (tub) и фактора элонгации трансляции (TEF) проводили с использованием праймеров и протоколов авторов (White et al., 1990; O’Donnell, Cigelnik, 1997; Carbone, Kohn, 1999). Нуклеотидную последовательность фрагментов определяли на секвенаторе ABIPrism 3500 (Applied Biosystems, Hitachi, Япония) с использованием набора реактивов BigDye Terminator v3.1 Cycle Sequencing Kit (Applied Biosystems, США). Процедуры выравнивания и ручного редактирования хроматограмм, а также получение консенсусных нуклеотидных последовательностей проводили в программе Vector NTI Advance 10. Нуклеотидные последовательности с помощью инструмента BLAST были проверены на сходство с депонированными в международной информационной базе данных NCBI GenBank. Филогенетические отношения межу таксонами оценивали методами максимального правдоподобия (maximum likelihood; ML) и максимальной экономии (maximum parsimony; MP) с использованием программы MEGA X 10.1 (Kumar et al., 2018). Также рассчитывали байесовскую вероятность (Bayesian probability; BP) с помощью MrBayes v. 3.2.1 на платформе Armadillo 1.1 (Lord et al., 2012). Достоверность топологии филогенетических деревьев определяли посредством бутстрэп-анализа (1000 повторностей). Полученные нуклеотидные последовательности были размещены в базе данных NCBI GenBank.
Оценка морфолого-культуральных свойств штаммов. Фенотипические особенности и скорость роста штаммов грибов анализировали при их культивировании на трех агаризованных питательных средах: картофельно-сахарозной (КСА), овсяной (ОА) и среде Чапека (ЧА) в темноте при 25°С (Crous et al., 2021). Через трое суток роста грибов измеряли размер каждой колонии в двух перпендикулярных направлениях и рассчитывали среднее значение диаметра колоний каждого штамма. Через 7–30 сут оценивали тип и окраску воздушного мицелия, пигментацию колоний.
Описание микроморфологических признаков проводили при культивировании или выращивании штаммов на КСА в темноте при 25°С в течение 7–14 сут. Морфологические структуры штаммов были исследованы и задокументированы с помощью микроскопа Olympus ВХ53 (Olympus America, США), подключенного к камере Supra (Jenoptik, Германия). Обработку фотографий проводили в программе Adobe Photoshop CC 2018 (Adobe, США).
Определение диапазона температур, оптимальных для накопления грибами биомассы, проводили методом глубинного культивирования. Каждый штамм выращивали в 100 мл жидкой среды Чапека в качалочных колбах объемом 750 мл в термостатируемых орбитальных шейкерах Innova 44R (Eppendorf, Германия). В объем питательной среды вносили по два диска диаметром 5 мм, вырезанных из культур грибов, выращенных на КСА при 25°С в течение 10–14 сут. Культивирование проводили при температурах 10, 15, 20, 25 и 30°С и постоянном перемешивании со скоростью 100 об./мин в течение 7 сут. Отделение биомассы грибов от культуральной жидкости проводили методом вакуум-фильтрации через бумажные фильтры “Красная лента” 90 мм (Экрос, Россия) с помощью насоса Millipore Vacuum Pump XF 54 (Merck, Германия). Биомассу высушивали при 50°С в течение суток и взвешивали. Значения рН культуральной жидкости определяли с помощью индикаторных бумажных полосок (Macherey-Nagel, Германия).
Оценка патогенности штаммов грибов. Патогенность штаммов грибов оценивали по влиянию на длину проростков семян зерновых культур, разложенных на поверхность колоний гриба. Зерно озимой пшеницы сорта Васса и пивоваренного ячменя сорта Деспина. поверхностно стерилизовали 70% этанолом и замачивали на сутки в стерильной воде. Затем зерна с набухшим зародышем, без видимых повреждений, раскладывали на поверхность колоний штаммов грибов, предварительно выращенных на КСА при 25°С в течение 10 сут. В контроле зерна раскладывали на чистую КСА. Через 5 сут инкубации в темноте при температуре 25°С измеряли длину проростков, рассчитывали средние значения. Изменение длины проростков под воздействием гриба оценивали в процентах к их средней длине в контроле.
Статистический анализ. Использовали программы Microsoft Excel 2010 и Minitab 17 для расчета средних значений, стандартного отклонения, доверительных интервалов и построения графиков зависимостей.
РЕЗУЛЬТАТЫ ИССЛЕДОВАНИЯ
Встречаемость грибов рода Nigrospora. Микологический анализ выявил повсеместное распространение грибов Nigrospora в зерне, выращенном в различных регионах России: они были обнаружены в 45.8% анализированных образцов (табл. 2). Зараженность зерна этими грибами, как правило, была низкой, но в отдельных случаях достигала высоких значений – до 19% (озимая пшеница, Курская обл., 2020 г.). Взаимосвязи между встречаемостью грибов рода Nigrospora и видом зерновой культуры, а также регионом её возделывания не выявлены.
Таблица 2.
Встречаемость грибов рода Nigrospora в образцах зерна из различных регионов России (2017–2021 гг.)
| Происхождение образцов зерна | Год урожая | Зерновая культура (число образцов) | Доля образцов зерна, зараженных грибами рода Nigrospora, % | Максимальная зараженность зерна грибами рода Nigrospora, % |
|---|---|---|---|---|
| Центральный ФО | 2019 | Овес (13) | 8 | 1 |
| 2020 | Оз. пшеница (33) | 55 | 19 | |
| 2021 | Овес (16) | 6 | 1 | |
| Яр. ячмень (5) | 67 | 7 | ||
| Южный ФО | 2021 | Оз. пшеница (7) | 29 | 1 |
| Яр. ячмень (1) | 100 | 1 | ||
| Северокавказский ФО | 2019 | Оз. пшеница (20) | 60 | 9 |
| Приволжский ФО | 2020 | Яр. пшеница (1) | 100 | 2 |
| Уральский ФО | 2018 | Яр. пшеница (23) | 30 | 3 |
| Яр. ячмень (15) | 53 | 6 | ||
| 2019 | Овес (4) | 50 | 2 | |
| Яр. пшеница (11) | 45 | 10 | ||
| Яр. ячмень (8) | 37 | 3 | ||
| Сибирский ФО | 2017 | Яр. пшеница (26) | 54 | 8 |
| Яр. ячмень (2) | 100 | 12 | ||
| 2018 | Овес (5) | 80 | 6 | |
| Оз. пшеница (3) | 33 | 6 | ||
| Яр. пшеница (20) | 50 | 9 | ||
| Яр. ячмень (16) | 44 | 2 | ||
| 2019 | Яр. пшеница (25) | 56 | 6 | |
| Яр. ячмень (8) | 50 | 6 |
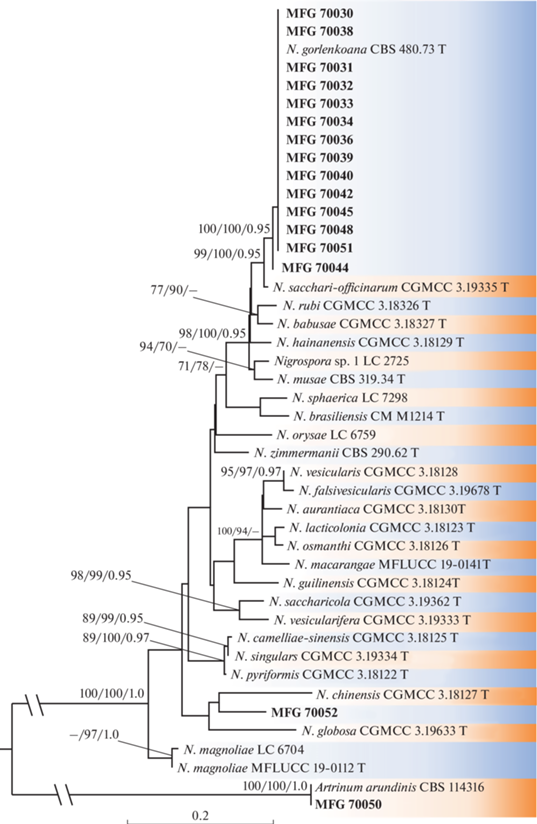
Идентификация штаммов с помощью молекулярно-генетических методов. Филогенетический анализ комбинированных нуклеотидных последовательностей 16 штаммов, предварительно морфологически определенных как Nigrospora spp., а также 28 рефересных штаммов грибов, включал 1038 пар нуклеотидов (п.н.) (ITS ‒ 428 п.н., tub ‒ 355 п.н., TEF ‒ 255 п.н.), среди которых 544 п.н. были консервативными, 484 п.н. – вариабельными, в т. ч. 388 п.н. – информативными.
С высокой бутстрэп-поддержкой ML/MP/ВP 100/100/0.95 четырнадцать анализированных штаммов формировали кладу с референсным штаммом CBS 480.73 N. gorlenkoana Novobr., что подтверждает их принадлежность этому виду (рис. 1). Один штамм Nigrospora sp. MFG 70052, выделенный из тростника из Приморского края, представляет собой отдельную филогенетичскую линию, и, вероятно, является представителем нового для науки вида грибов рода Nigrospora. Штамм MFG 70050 с бутстрэп-поддержкой ML/MP/ВP 100/100/1.0 формировал общую кладу со штаммом Arthrinium arundinis (Corda) Dyko & B. Sutton CBS 114316. В дальнейшем, при оценке скорости роста и патогенности штаммов N. gorlenkoana, штамм MFG 70050 использовали для сравнения в качестве внешней группы.
Рис. 1.
Дендрограмма филогенетического сходства, построенная на основе комбинированных нуклеотидных последовательностей ITS, TEF и tub фрагментов генома методом максимального правдоподобия. В узлах приведены значения бутстреп-поддержки (>70%) при анализе методами максимального правдоподобия и максимальной экономии, а также значения Байесовская апостериорной вероятности (>0.95). полужирным шрифтом отмечены штаммы из коллекции MFG, включенные в исследование.
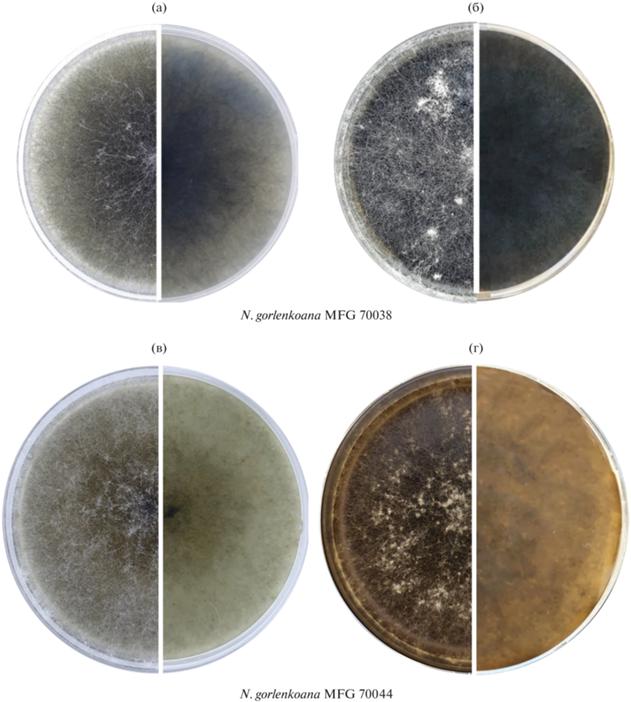
Морфолого-культуральные свойства штаммов N. gorlenkoana. На КСА колонии N. gorlenkoana быстрорастущие, распростeртые, плоские, с разреженным воздушным мицелием серого цвета (рис. 2). С возрастом воздушный мицелий становится плотнее, шерстисто-клочковатым, серовато-черным, с пучками стерильных гиф белого цвета. Реверс колонии оттенков серого цвета, неровный, с темными пятнами и просвечивающим рисунком субстратных гиф гриба. На ЧА культуры гриба N. gorlenkoana слабо растущие, плоские, с разреженным воздушным мицелием, почти не образующие спороношение, в отличие от ОА, на которой колонии гриба образуют обильный, плотный, шерстистый, бело-серого цвета мицелий, с возрастом темнеющий за счет увеличения числа образующихся окрашенных спор.
Рис. 2.
Фенотипы штаммов грибов рода Nigrospora, выращенных на КСА в темноте при 25°С: возраст культур 7 сут (а, в) и 30 (б, г) суток.
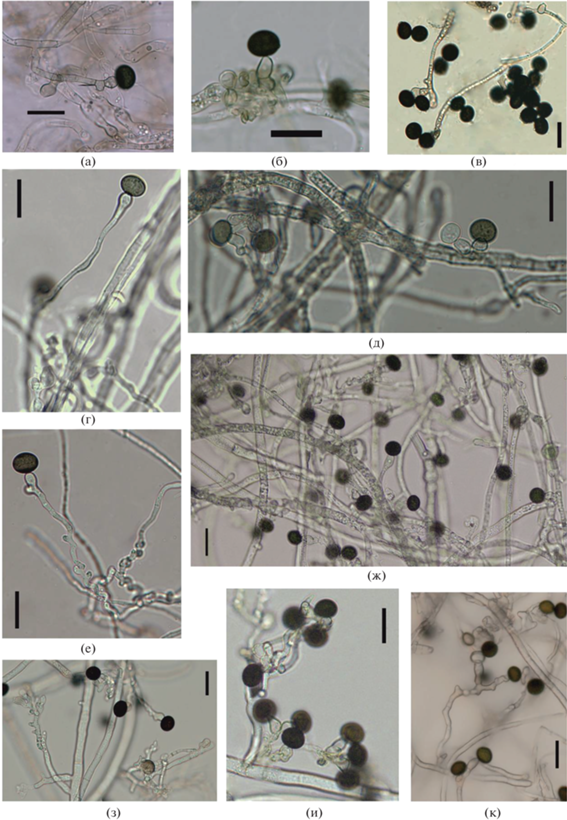
Микроскопический анализ показал, что гифы воздушного мицелия N. gorlenkoana гладкие, гиалиновые, разветвленные, с хорошо заметными перегородками, диаметром 1.5–4.5 мкм (рис. 3). Гифы субстратного мицелия темноокрашены, с плотной оболочкой и заметными межклеточными перегородками, искривленные, с очевидными утолщениями, диаметром 2.0–5.5 мкм. Спороношение образуется быстро на 2–3 сут. Конидиеносцы утолщенные, хорошо выраженные, прямые или изогнутые, бледно серо-охряные, длинные, иногда сводятся к конидиогенным клеткам. Конидиогенные клетки монобластические, одиночные, дискретные, часто расширены, от почти сферических, бочкообразных до ампуловидных, размерами 3.0–15.5 × 4.0–9.0 мкм. Конидии обильные, одноклеточные, одиночные, по одной на каждой конидиогенной клетке, шаровидные или широкоэллиптические, в начале образования имеют вид бесцветных или бледно-коричневых вздутий, которые по мере созревания становятся плотно-черными, блестящими, гладкими, размеры в диапазоне 13.0–14.0 × 10.6–16.5 мкм (в среднем 12.0 × 13.6 мкм).
Рис. 3.
Типичные микроструктуры гриба N. gorlenkoana (а–к). Гифы, конидиогенные клетки и конидии. КСА, в темноте, 25°С. Масштабные линейки: 20 мкм.
Анализ скорости роста штаммов N. gorlenkoana выявил, что на третьи сутки культивирования диаметр колоний на КСА варьировал от 60 до 80 мм (в среднем 74.2 ± 1.8 мм), а на ОА – от 23 до 70 мм (в среднем 45.0 ± 3.4 мм). На ЧА скорость роста штаммов N. gorlenkoana была значительно ниже, чем на двух других агаризованных средах: диаметр колоний грибов варьировал в широком диапазоне 10–53 мм и в среднем составил 31.2 ± 3.7 мм. У трех штаммов N. gorlenkoana выявлена относительно низкая скорость роста – через 3 сут диаметр их колоний на ЧА не превышал 18 мм. Размеры колонии A. arundinis MFG 70050 на всех трех средах оказались существенно меньше, по сравнению со штаммами N. gorlenkoana, и составили на КСА 53 ± 2 мм, на ОА – 38 ± 2 мм и на ЧА – 25.0 ± 0.1 мм.
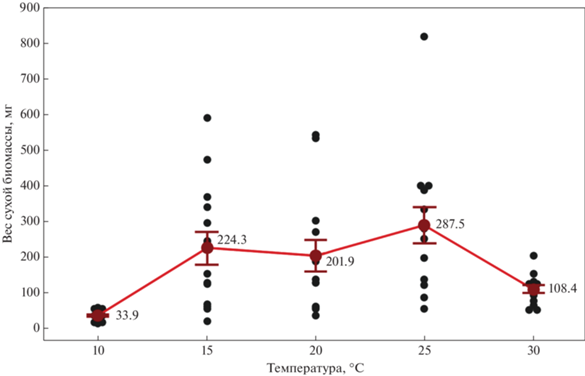
Накопление биомассы штаммами N. gorlenkoana при глубинном культивировании на среде Чапека при температурах 10–30°С существенно варьировало от 13 мг при 10°С до 818 мг при 25°С (рис. 4). Сравнение средних показателей веса сухой биомассы, полученной при разных температурах культивирования, выявило широкий диапазон температур, при которых штаммы N. gorlenkoana росли одинаково хорошо ‒ от 15°С (224 ± 86 мг) до 25°С (288 ± 96 мг). Оптимальной температурой для роста A. arundinis MFG 70050 являлась 25°C, при которой вес биомассы составил 540 ± 96 мг, что в 1.4‒13.5 раз выше, чем при других четырех температурах.
Рис. 4.
Динамика накопления биомассы штаммов N. gorlenkoana при глубинном культивировании в диапазоне температур (среда Чапека, 7 сут, в темноте). Отрезками указаны доверительный интервал при уровне значимости p < 0.05.
Измерение рН культуральных жидкостей, полученных в процессе культивирования Nigrospora spp. при температуре 25°C, выявило изменение данного показателя от 5.5 (значение чистой среды Чапека) до 6.3. В то же время рН культуральной жидкости штамма A. arundinis MFG 70050 снизилось до 4.5.
Патогенность штаммов к проросткам пшеницы и ячменя. Всхожесть выбранных для экспериментов образцов зерна пшеницы и ячменя составляла 100% и 80%, соответственно. Длина проростков зерновых культур в контрольных вариантах значительно варьировала – от 7 до 109 мм у пшеницы и от 25 до 155 мм у ячменя. После недельной инкубации на поверхности колоний N. gorlenkoana и A. arundinis MFG 70050 выявлено достоверное снижение длины проростков пшеницы и ячменя, по сравнению с контролем (рис. 5).
Рис. 5.
Влияние штаммов грибов N. gorlenkoana и A. arundinis на длину проростков зерна пшеницы и ячменя. Отрезками указаны доверительный интервал при уровне значимости p < 0.05.
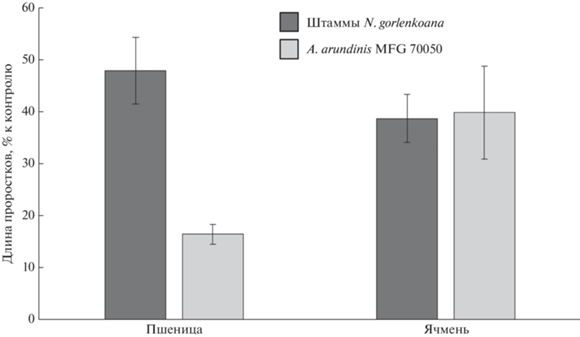
Среди анализированных штаммов наиболее агрессивными по отношению к проросткам пшеницы являлись N. gorlenkoana MFG 70044 и A. arundinis MFG 70050 – длина проростков, полученных после культивирования на культурах этих грибов, составила всего 19.6 и 16.4% от контроля, соответственно. Только один штамм N. gorlenkoana MFG 70040 оказывал стимулирующее действие на прорастание зерна пшеницы, под влиянием которого длина проростков увеличилась до 120.8% от контроля.
Три штамма N. gorlenkoana MFG 70031, MFG 70038 и MFG 70044 можно охарактеризовать как наиболее агрессивные в отношении ячменя: длина проростков, после культивирования на поверхности колоний этих грибов составила 11.9‒13.1% от контроля. Остальные анализированные штаммы N. gorlenkoana, а также A. arundinis MFG 70050, приводили к уменьшению длины проростков ячменя до 23.8‒66.7% от контроля.
ОБСУЖДЕНИЕ РЕЗУЛЬТАТОВ
Впервые на территории России в период 2017‒2021 гг. проведен мониторинг зараженности зерна грибами рода Nigrospora и выявлено их присутствие в образцах пшеницы, ячменя и овса в европейской части страны (40.6% образцов), в Уральском регионе (41.0%) и в Западной Сибири (53.3%). Несмотря на достаточно частое обнаружение грибов Nigrospora в микобиоте зерновых культур, зараженность зерна ими, в большинстве случаев, была невысокой, что согласуется с информацией о встречаемости этих грибов в других странах. Микологический анализ образцов зерна пшеницы в Сербии показал, что гриб N. oryzae встречался в 16.1% образцов зерна, со средней зараженностью 2.4% (Levic et al., 2012), а в другом исследовании этот вид был найден в 40% образцов со средней зараженностью 1.5% (Krulj et al., 2016). Встречаемость Nigrospora spp. в микобиоте зерна пшеницы в Египте варьировала от 0 до 63% в зависимости от региона, тогда как зараженность в среднем не превышала 1% (Shabana et al., 2021). В микобиоте растений пшеницы с симптомами поражения колоса и корневой гнили из Казахстана грибы рода Nigrospora также выявляли спорадически (Bozoğlu et al., 2022).
С помощью филогенетического анализа комбинированных нуклеотидных последовательностей ITS, tub и TEF нами установлена принадлежность штаммов, выделенных из семян зерновых культур (пшеница, ячмень, овес, кукуруза) и рапса, к виду N. gorlenkoana. Поскольку выбор штаммов для исследования был обусловлен только широтой охвата географического и растительного разнообразия, отнесение их к одному виду позволяет утверждать, что N. gorlenkoana является космополитом, повсеместно ассоциированным с сельскохозяйственными культурами. Три анализированных штамма N. gorlenkoana MFG70031, MFG70038, MFG70048 депонированы в Всероссийскую Коллекцию Микроорганизмов (ВКМ).
Это первая находка N. gorlenkoana на зерновых культурах в России. Ранее вид N. gorlenkoana был выявлен на листьях и ягодах винограда в Казахстане и описан Новобрановой Т.И. (1972) с указанием размеров конидий 12.0‒16.0 × 8.0‒12.0 мкм. Типовой штамм N. gorlenkoana CBS 480.73 = VKM F-1761 активно используется в филогенетических исследованиях (Wang et al., 2017; Crous et al., 2019; Hao et al., 2020). Кроме того, вид N. gorlenkoana был выявлен на листьях Cirsium setosum (Willd.) Besser ex M.Bieb (Asteraceae) (Hao et al., 2020), на корнях дуба Quercus robur L. (Jankowiak et al., 2022), а также был выделен из четырех видов лишайников (Oh et al., 2020) и из насекомых (Aghyl et al., 2021).
Как правило, штаммы Nigrospora spp., изолированные из злаковых культур, определяли только до уровня рода (Moya-Elizondo et al., 2015), или идентифицировали по морфологическим признакам как N. oryzae (Levic et al., 2012; Abdullah, Atrosh, 2014; Krulj et al., 2016). В некоторых исследованиях принадлежность выделенных грибов к виду N. oryzae подтверждали молекулярно-генетическими исследованиями, проводя анализ одного локуса (Eken et al., 2016; Bozoğlu et al., 2022). Так, сравнение последовательности ITS штамма Nigrospora KW1 (KT429637), выделенного из зерна пшеницы из Казахстана, с базой данных NCBI GenBank выявило ее 98.1% сходство с последовательностью штамма N. oryzae 2684 (EU272488), изолированного из кустарника Espeletia sp. в Колумбии, что позволило авторам отнести штамм KW1 к виду N. oryzae (Eken et al., 2016). В то же время, сходство последовательности данного штамма с последовательностью ITS типового штамма N. gorlenkoana CBS 480.73 (KX986048) составило 98.2%, и с последовательностями штаммов N. gorlenkoana, полученных в нашем исследовании, 98.1‒98.2%. Аналогично, в исследовании Бозоглу с соавтр. (Bozoğlu et al., 2022) идентичные между собой последовательности ITS пяти штаммов Nigrospora (OM685081‒OM685085), выделенных из пшеницы в Казахстане, имели сходство 99.5% с последовательностью референсного штамма N. oryzae CBS 113884, тогда как с последовательностью ITS типового штамма N. gorlenkoana CBS 480.73 (KX986048) сходство было выше и составило 99.8%. Таким образом, можно предположить, что штаммы Nigrospora KT429637 и OM685081‒OM685085, выделенные из зерновых культур в Казахстане, также относятся к виду N. gorlenkoana.
В нашем исследовании, один штамм Nigrospora sp. MFG 70052, выделенный из стебля тростника в Приморском крае, на основании филогенетического анализа и совокупности морфологических признаков, представлял собой отдельную генетическую линию, являющуюся сестринской виду N. chinensis и, по всей видимости, представляющий собой новый вид Nigrospora. Ранее, среди представителей рода Nigrospora были выявлены два штамма LC 2725 и LC 6704, ассоциированные соответственно с растениями Symplocos zizyphoides Stapf и Camellia sinensis (L.) Kuntze из Китая, которые в результате филогенетического анализа были выделены в отдельные генетические линии (Wang et al., 2017). Позднее, штамм LC 6704 совместно со штаммом, выделенным из Magnolia liliifera (L.) Baill., был описан как новый для науки вид N. magnoliae N.I. de Silva, Lumyong & K.D. Hyde (de Silva et al., 2021). Очевидно, что существующее видовое разнообразие рода Nigrospora требует дальнейшей инвентаризации.
Штамм MFG 70050 был охарактеризован нами как A. arundinis – представитель рода Arthrinium, филогенетически и морфологически близкого к роду Nigrospora (Hao et al., 2020) Обнаружение этого вида на различных субстратах в России (Московская, Тверская области и о. Кунашир) документально подтверждено (http://www.sevin.ru/ collections/microcoll/vkm_coll/fungi4.html).
Оценка роста штаммов N. gorlenkoana на среде Чапека при температуре от 10 до 30°С показала, что диапазон 15–25°С является оптимальным для накопления биомассы грибов, что, вероятно, обуславливает наблюдаемое повсеместное распространение грибов рода Nigrospora в природе. Также выявлено, что рН культуральной жидкости штаммов увеличивалась до 6.3 по сравнению с рН исходной среды 5.5. Ранее для штамма Nigrospora sp. NIOT, выделенного из морской воды, были выявлены сходные оптимальные условия для роста на жидкой картофельно-глюкозной среде – температура 20–30°C и pH 6.0–8.0 (Arumugam et al., 2015), а для штамма N. aurantiaca CMU-A109, являющегося эндофитом Cinnamomum verum J.Presl, оптимальными для накопления биомассы являлись 25‒27°С и рН среды 6‒9 (Suwannarach et al., 2019).
В данном исследовании наблюдалась неспособность отдельных штаммов N. gorlenkoana, выделенных из зерна пшеницы, активно расти как на ЧА, так и в жидкой среде Чапека, в отличие от богатых питательных сред КСА и ОА, что предполагает их ауксотрофность – неспособность синтезировать определенные органические соединения, необходимые для их роста. Зависимость роста некоторых штаммов гриба N. oryzae от присутствия в среде биотина и еще одного неустановленного вещества была продемонстрирована ранее (Allam, Yusef, 1974).
Анализированные штаммы N. gorlenkoana и A. arundinis MFG 70050 вызывали заметное уменьшение длины проростков пшеницы и ячменя. Штамм A. arundinis MFG 70050 был сравнительно более агрессивным по отношению к пшенице, чем к ячменю. Ранее грибы Arthrinium, в т. ч. A. arundinis, уже выявляли на зерновых культурах, и было показано их негативное влияние на качество зерна пшеницы и ячменя (Martínez-Cano et al., 1992; Mavragani et al., 2007).
Информация о патогенности грибов рода Nigrospora в отношении злаков преимущественно относится к штаммам N. oryzae и N. sphaerica, тогда как о вредоносности гриба N. gorlenkoana доступные данные отсутствует. B исследовании Бозоглу с соавтр. (Bozoğlu et al., 2022) пять штаммов N. oryzae оказались патогенными в отношении проростков пшеницы при инокуляции суспензией конидий, однако агрессивность была невысокой, средний балл поражения составил 1.56 по 5‑балльной шкале. Также при раскладывании семян пшеницы на поверхность колоний N. oryzae на проростках развивались некрозы (Eken et al., 2016). Гриб N. sphaerica вызывал поражение проростков и развитие пятнистости листьев злаковых растений (Cui et al., 2017; Han et al., 2019). Причем, симптомы заболевания, вызываемого N. sphaerica, проявлялись на листьях Cenchrus purpureus Schumach. всех возрастов, однако молодые листья были более восприимчивы (Han et al., 2019). Выявлена высокая агрессивность N. sphaerica в отношении проростков сахарного тростника, тогда как взрослые растения оказались невосприимчивы в условиях искусственной инокуляции: авторы предполагают передачу инфекции с семенами (Cui et al., 2017). В тоже время, несмотря на способность грибов рода Nigrospora вызывать заболевания растений, некоторые из них могут обитать в растениях эндофитно (Wang et al., 2017).
Возможности, представляемые системным подходом к установлению таксономического статуса организма, могут быть успешно использованы для решения многих прикладных задач. В связи с выявлением грибов рода Nigrospora в микобиоте различных растений необходимо продолжить установление и уточнение видового разнообразия грибов этого рода и описания их свойств.
ЗАКЛЮЧЕНИЕ
Грибы рода Nigrospora были обнаружены в 45.8% анализированных образцов пшеницы, ячменя и овса, выращенных в шести федеральных округах России. Филогенетический анализ ДНК штаммов, выбранных случайным образом, выявил принадлежность 14 штаммов к виду N. gorlenkoana, тогда как один штамм представлял собой отдельную филогенетическую линию, а еще один был отнесен к виду A. arundinis. Включение в исследование штаммов грибов широкого географического происхождения позволяет утверждать, что вид N. gorlenkoana является типичным представителем микобиоты злаковых культур в России.
Штаммы N. gorlenkoana и A. arundinis оказывали негативное влияние на семенные качества зерна пшеницы и ячменя. В дальнейшем требуется установление видового состава грибов рода Nigrospora, ассоциированных с различными как однодольными, так и двудольными растениями, выявление их вредоносности, а также мест сохранения во внешней среде и распространения инфекционного начала.
Список литературы
Гагкаева Т.Ю. Фитопатогенный гриб Fusarium cerealis на территории России // Микология и фитопатология. 2009. Т. 43. № 4. С. 331–342.
Матвиенко Е.В., Кинчарова М.Н. Фитосанитарная экспертиза семян сорго зернового // Современная микология в России. 2020. Т. 8. № 1. С. 337–338.
Новобранова Т.И. Новые виды несовершенных грибов из Алма-Атинской области // Новости систематики низших растений. 1972. Т. 9. С. 180–187.
Рубежняк И.Г. Оценка потенциала синтеза биологически активных веществ штаммами микроскопических грибов // Фундаментальные и прикладные исследования: проблемы и результаты. 2013. Т. 8. С. 7–11.
Abdullah S., Atrosh H. New records of fungi on wheat grains from Iraq // Sci. J. Univ. Zakho. 2014. V. 2. P. 256‒265.
Aghyl H., Mehrabi-Koushki M., Esfandiari M. New records of the fungal species associated with insects in Iran // J. Appl. Res. Plant Prot. 2022. V. 11. P. 61‒79.
Allam M.E., Yusef H.M. Biotin deficiency in Nigrospora oryzae // Mycopathol. Mycol. Appl. 1974. V. 52. P. 65–74.
Arumugam G., Srinivasan S., Joshi G., Gopal D., Ramalingam K. Production and characterization of bioactive metabolites from piezotolerant deep sea fungus Nigrospora sp. in submerged fermentation // J. Appl. Microbiol. 2015. V. 118. P. 99–111.
Bozoğlu T., Dervis S., Imren M., Amer M., Özdemir F., Paulitz T.C., Morgounov A., Dababat A.A., Özer G. Fungal pathogens associated with crown and root rot of wheat in Central, Eastern, and Southeastern Kazakhstan // J. Fungi. 2022. V. 8. 417.
Carbone I., Kohn L.M. A method for designing primer sets for speciation studies in filamentous ascomycetes // Mycologia. 1999. V. 91. P. 553–556.
Crous P.W., Carnegie A.J., Wingfield M.J., Sharma R., Mughini G., Noordeloos M.E., Santini A., Shouche Y.S., Bezerra J.D.P., Dima B. et al. Fungal planet description sheets: 868–950 // Persoonia. 2019. V. 42. P. 291–473.
Crous P.W., Lombard L., Sandoval-Denis M., Seifert K.A., Schroers H.-J., Chaverri P., Gené J., Guarro J., Hirooka Y., Bensch K. et al. Fusarium: more than a node or a foot-shaped basal cell // Stud. Mycol. 2021. V. 98. P. 1–184.
Cui Y., Wu B., Peng A., Li Z., Ling J., Xiaobing S. First report of Nigrospora leaf blight on sugarcane caused by Nigrospora sphaerica in China // Plant Dis. 2017. V. 102. P. 824.
Eken C., Spanbayev A., Tulegenova Z., Yechshzhanov T. First report of Nigrospora oryzae on wheat in Kazakhstan // Plant Dis. 2016. V. 100. P. 861.
Han Y.Z., Fan Z.W., Wu C.F., Li M.Y., Zhou D.D. First report of nigrospora leaf blight on elephant grass caused by Nigrospora sphaerica in China // Plant Dis. 2019. V. 103. P. 2681.
Hao Y., Aluthmuhandiram J.V.S., Chethana K.W.Th., Manawasinghe I.S., Li X., Liu M., Hyde K.D., Phillips A.J.L., Zhang W. Nigrospora species associated with various hosts from Shandong Peninsula, China // Mycobiology. 2020. V. 48. P. 169–183.
Harwooda J.S., Cutler H.G., Jacyno J.M. Nigrosporolide, a plant growth-inhibiting macrolide from the mould Nigrospora sphaerica // Nat. Prod. Lett. 1995. V. 6. P. 181–185.
Jankowiak R., Stępniewska H., Bilański P., Taerum S. Fungi as potential factors limiting natural regeneration of pedunculate oak (Quercus robur L.) in mixed-species forest stands in Poland // Plant Pathol. 2022. V. 71. P. 805–817.
Kim J.-C., Choi G.J., Park J.-H., Kim H.T., Cho K.Y. Activity against plant pathogenic fungi of phomalactone isolated from Nigrospora sphaerica // Pest. Manag. Sci. 2001. V. 57. P. 554–559.
Krulj J., Bočarov-Stančić A., Krstović S., Igor J., Kojic J., Tomić A., Bodroža-Solarov M. Mycobiota on common wheat (Triticum aestivum) and spelt (Triticum aestivum ssp. spelta) grains from the region of Vojvodina in 2015 // Food Feed Res. 2016. V. 43. P. 1–8.
Kumar S., Stecher G., Li M., Knyaz C., Tamura K. MEGA X: Molecular evolutionary genetics analysis across computing platforms // Mol. Biol. Evol. 2018. V. 35. P. 1547–1549.
Levic J., Stanković S., Krnjaja V., Tančić Živanov S., Ivanovic D., Bočarov-Stančić A. Relationships of mycobiota on rachides and kernels of wheat // Eur. J. Plant Pathol. 2012. V. 134. P. 149–256.
Lord E., Leclercq M., Boc A., Diallo A.B., Makarenkov V. Armadillo 1.1: An original workflow platform for designing and conducting phylogenetic analysis and simulations // PLoS ONE. 2012. V. 7. e29903.
Martínez-Cano C., Grey W.E., Sands D.C. First report of Arthrinium arundinis causing kernel blight on barley // Plant Dis. 1992. V. 76. P. 1077.
Mason E.W. On species of the genus Nigrospora Zimmermann recorded on monocotyledons // Trans. Br. Mycol. Soc. 1927. V. 12. P. 152–165.
Mavragani D.C., Abdellatif L., McConkey B., Hamel C., Vujanovic V. First report of damping-off of durum wheat caused by Arthrinium sacchari in the semi-arid Saskatchewan fields // Plant Dis. 2007. V. 91. P. 469.
Meepagala K.M., Becnel J.J., Estep A.S. Phomalactone as the active constituent against mosquitoes from Nigrospora spherical // Agricultural Sci. 2015. V. 6. P. 1195–1201.
Moya-Elizondo E., Arismendi N., Castro M.P., Doussoulin H. Distribution and prevalence of crown rot pathogens affecting wheat crops in southern Chile // Chil. J. Agric. Res. 2015. V. 75. P. 78–84.
O’Donnell K., Cigelnik E. Two divergent intragenomic rDNA ITS2 types within a monophyletic lineage of the fungus Fusarium are nonorthologous // Mol. Phylogenet. Evol. 1997. V. 7. P. 103–116.
Oh S.-Y., Yang J.H., Woo J.-J., Oh S.-O., Hur J.-S. Diversity and distribution patterns of endolichenic fungi in Jeju island, South Korea // Sustainability. 2020. V. 12. 3769.
Pan X.-X., Yuan M.-Q., Xiang S.-Y., Ma Y.-M., Zhou M., Zhu Y.-Y., Yang M.-Z. The symbioses of endophytic fungi shaped the metabolic profiles in grape leaves of different varieties // PLoS ONE. 2020. V. 15. e0238734.
Ramesha K.P., Mohana N. C., Nuthan B.R., Rakshith D., Satish S. Antimicrobial metabolite profiling of Nigrospora sphaerica from Adiantum philippense L. // J. Genet. Eng. Biotechnol. 2020. V. 18. P. 66.
Rashmi M., Kushveer J., Sarma V. A worldwide list of endophytic fungi with notes on ecology and diversity // Mycosphere. 2019. V. 10. P. 798–1079.
Rathod D.P., Dar M.A., Gade A.K., Rai M.K. Griseofulvin producing endophytic Nigrospora oryzae from Indian Emblica officinalis gaertn: a new report // Austin. J. Biotechnol. Bioeng. 2014. V. 1. P. 5.
Raza M., Zhang Z.F., Hyde K.D., Diao Y.-Z.,i Cai L. Culturable plant pathogenic fungi associated with sugarcane in southern China // Fun. Div. 2019. V. 99. P. 1–104.
Shabana Y.M., Rashad Y.M., Ghoneem K.M., Arafat N.S., Aseel D.G., Qi A., Richard B., Fitt B.D.L. Biodiversity of pathogenic and toxigenic seed-borne mycoflora of wheat in Egypt and their correlations with weather variables // Biology. 2021. V. 10. P. 1025.
Sharma P., Meena P.D., Chauhan J.S. First report of Nigrospora oryzae (Berk. & Broome) Petch causing stem blight on Brassica juncea in India // J. Phytopathol. 2013. V. 161. P. 439–441.
de Silva N., Maharachchikumbura S., Thambugala K., Bhat D.J., Karunarathna S., Tennakoon D., Phookamsak R., Jayawarden, R., Lumyong S., Hyde K. Morpho-molecular taxonomic studies reveal a high number of endophytic fungi from Magnolia candolli and M. garrettii in China and Thailand // Mycosphere. 2021. V. 12. P. 163–237.
Starratt A.N., Loschiavo S.R. The production of aphidicolin by Nigrospora sphaerica // Can. J. Microbiol. 1974. V. 20. P. 416–417.
Suwannarach N., Kumla J., Nishizak, Y., Sugimoto N., Meerak J., Matsui K., Lumyong S. Optimization and characterization of red pigment production from an endophytic fungus, Nigrospora aurantiaca CMU-ZY2045, and its potential source of natural dye for use in textile dyeing // Appl. Microbiol. Biotech. 2019. V. 103. P. 6973–6987.
Sun X.-P., Xu Y., Cao F., Xu R.-F., Zhang X.-L., Wang C.-Y. Isoechinulin-type alkaloids from a soft coral-derived fungus Nigrospora oryzae // Chem. Natural Compoun, 2014. V. 50. P. 1153–1155.
Waill A.E., Ghoson M.D. Chemical and bioactive metabolites of Humicola and Nigrospora secondary metabolites // J. Pharmaceutics and Pharmacology Res. 2022. V. 5. P. 1.
Wang M., Liu F., Crous P.W., Cai L. Phylogenetic reassessment of Nigrospora: ubiquitous endophytes, plant and human pathogens // Persoonia. 2017. V. 39. P. 118–142.
White T.J., Bruns T., Lee S., Taylor J.W. Amplification and direct sequencing of fungal ribosomal RNA genes for phylogenetics // PCR Protocols: a guide to methods and applications / Eds Innis M.A., Gelfand D.H., Sninsky J.J., White T.J. N.Y.: Academic Press, 1990. P. 315–322.
Wright E.R., Folgado M., Rivera M.C., Crelier A., Vasquez P., Lopez S.E. Nigrospora sphaerica causing leaf spot and twig and shoot blight on blueberry: a new host of the pathogen // Plant Dis. 2008. V. 92. P. 171.
Wu Z., Xie Z., Wu M., Li X., Li W., Ding W., She Z., Li C. New antimicrobial cyclopentenones from Nigrospora sphaerica ZMT05, a fungus derived from Oxya chinensis Thunber // J. Agricultural Food Chem. 2018. V. 66. P. 5368–5372.
Zhang Q.H., Tian L, Zhou L.D., Zhang Y., Li Z.F., Hua H.M., Pei Y.H. Two new compounds from the marine Nigrospora sphaerica // J. Asian Nat. Prod. Res. 2009. V. 11. P. 962–966.
Дополнительные материалы отсутствуют.
Инструменты
Известия РАН. Серия биологическая


 Пн.-пт.: 10.00-19.00