

Известия РАН. Серия биологическая, 2023, № 5, стр. 581-594
Популяционно-генетическая структура волка (Canis lupus L.) Восточной Фенноскандии в условиях интенсивного пресса охоты на основе анализа мтДНК
К. Ф. Тирронен 1, *, А. С. Кузнецова 1, Д. В. Панченко 1
1 Институт биологии – обособленное подразделение Федерального государственного бюджетного учреждения науки Федерального исследовательского центра “Карельский научный центр Российской академии наук”
185910 Петрозаводск, ул. Пушкинская, 11, Россия
* E-mail: konstantin.tirronen@gmail.com
Поступила в редакцию 17.11.2022
После доработки 08.04.2023
Принята к публикации 10.04.2023
- EDN: WJCOGX
- DOI: 10.31857/S1026347022600960
Аннотация
Одной из важных составляющих антропогенного фактора, воздействующего на популяции диких животных, является охота. В представленной работе выполнен генетический анализ контрольного региона I мтДНК волка Республики Карелия и экспериментальной территории (Кондопожский район) на временном срезе в 10 лет. На основе анализа данных популяционной динамики хищника и его жертв, материалов по добыче, изменений пространственно-временной структуры и генетических характеристик, показана степень воздействия человека на население волка Восточной Фенноскандии. Современное гаплотипическое разнообразие волка региона, на фоне общего характерного для вида, бедное. Всего здесь выявлено два распространенных в Евразии гаплотипа, что, очевидно, объясняется историей вида – этапами сильного сокращения численности.
На протяжении веков волков активно истребляли, и в результате они исчезли с большей части Европейских стран. В последние десятилетия во многом в результате изменения европейского природоохранного законодательства и в целом общего восприятия хищников обществом, популяции этих зверей начали стремительно восстанавливаться (Boitani et al., 2015). Напротив, на обширных пространствах России этому виду ничего не угрожало, хотя в отдельных регионах история была разной.
В данной статье речь пойдет о популяции волков, населяющих Восточную Фенноскандию, которая в своей истории имела периоды сильного сокращения, прохождения через “бутылочное горлышко” и частичного уничтожения (Aspi et al., 2009). Под этим мы подразумеваем, что население волков Финляндии было близко к полному исчезновению и восстановилось лишь в 1990-е гг., а на Северо-Западе СССР в середине XX века волки также были значительно истреблены (Бибиков и др., 1985; Kojola et al., 2014). Территориальные группировки волков, населяющих Финляндию и Республику Карелия (РК), принято рассматривать как единую популяцию (Boitani, 2003). А собственно карельская популяция волков, под которой мы подразумеваем население вида рассматриваемого региона, по сути, является связующим звеном между волками, обитающими в Финляндии и на Северо-Западе России (Kojola et al., 2009; Jansson et al., 2012). Следовательно, для краевой популяции финских волков связь с населением карельских имеет ключевое значение. При этом Янссон (Jansson, 2013) на основании ряда генетических исследований утверждает, что финские и карельские волки в настоящее время уже не образуют единую панмиктическую популяцию и генетически дифференцированы. В дополнение следует отметить, что и почти изолированная популяция волков Скандинавии ведет свое происхождение от некогда единой популяции Фенноскандии и имеет генетически подтвержденные случаи двунаправленного обмена особями с финской популяцией (Seddon et al., 2006; Smeds et al., 2021). Изучены волки Карелии и Финляндии несимметрично, для них характерны различные паттерны популяционной динамики, а их управление основывается на совершенно разных подходах. По данным МСОП статус волков на территории Финляндии – “находящийся под угрозой” с 2019 г. Однако, исходя из национального правового статуса, который является противоречивым, вид определяется как – “находящийся под защитой” и “охотничий вид” (Boitani et al., 2022). В Карелии волк – это охотничий вид, более того за его добычу охотнику полагается вознаграждение.
Трофейную охоту рассматривают как селективный фактор, избирательный в отношении фенотипа или пола животных, и по этой причине она становится объектом научных исследований (Harris et al., 2002; Allendorf, Hard, 2009; и др.). Однако в отношении волка вряд ли можно говорить о какой-либо избирательности. При этом среди последствий охоты определены: изменение структуры популяции, потеря генетического разнообразия и эволюция в результате отбора, например – существенное изменение частот аллелей в популяции связанных с тем или иным признаком по которому идет интенсивный отбор в ходе охоты (Harris et al., 2002; Allendorf et al., 2008). В отношении финской популяции браконьерство и легальная охота определены основными факторами, регулирующими современную популяционную динамику (Kaartinen et al., 2015; Suutarinen, Kojola, 2017). В Карелии охота на волка в последние годы интенсифицировалась в несколько раз (Данилов и др., 2020а).
Среди факторов, определяющих популяционную динамику хищника, особенно в естественных сообществах, ведущее значение принадлежит разнообразию, состоянию популяций и уровню численности его жертв. На большей части ареала волка копытные животные представляют собой основной источник пищи этого зверя (Данилов и др., 1979; Филонов, 1989; Mech, Boitani, 2003). Основная добыча волка на Северо-Западе России и в Финляндии – лось (Gade-Jørgensen, Stagegaard, 2000; Данилов и др., 2020а).
Целью настоящей статьи является анализ структуры популяции волков Карелии, находящейся во взаимосвязи с дочерней финской, а также в системе трофических связей и под действием антропогенного фактора (охота). В обсуждении мы будем опираться главным образом на материалы, собранные на экспериментальной территории – Кондопожский район РК. На основе объединения ГИС подходов, данных мониторинга животного мира – Зимнего маршрутного учета (ЗМУ), охотничьей добычи животных и результатов секвенирования мтДНК оценена степень воздействия охоты и показаны возможные последствия для популяции в результате ее интенсификации.
МАТЕРИАЛЫ И МЕТОДЫ
Данные по динамике численности волка и лося представлены архивными материалами ЗМУ лаборатории зоологии ИБ КарНЦ РАН по Республике Карелия за период с 1965 по 2021 гг. и отдельно по Кондопожскому району РК за 2001–2021 гг. Сведения по добыче волков с 1965 по 2010 гг. из того же архива, а для периода 2011–2021 гг. предоставлены Министерством природных ресурсов и экологии Республики Карелия (МПРиЭ РК).
В рамках выполненного исследования рассматривались аспекты пространственной организации вида на экспериментальной территории. Поскольку изучение собственно пространственной экологии волка не входило в задачи исследования, то мы ограничились составлением генерализованного представления о территориальной структуре населения волка Кондопожского района РК. Эта работа выполнена для анализа изменений популяционной структуры вида изучаемой территориальной группировки под влиянием охоты. Для фиксации границ семейных участков мы использовали ряд независимых источников, данных: опросные сведения районного государственного инспектора, охотоведов и охотников, первичные материалы ЗМУ и акты добычи животных. Общая картина складывалась из многолетних наблюдений стай и одиночных волков и их следов в разные сезоны года, встреч выводков, мест групповой вокализации, расположения логовищ, традиционных маршрутов волков и мест их добычи. Подчеркиваем, для нас не стояло задачи охарактеризовать пространственную организацию семейных групп волков, но при этом было важно понять в целом границы занимаемых ими участков.
За период исследований было собрано 111 проб биоматериала (мышечные ткани, шкуры) от легально добытых волков в Кондопожском районе РК с 2012 по 2022 гг. с указанием: пола, возраста животного, числа особей в группе, способа добычи, даты, географических координат и ряда других дополнительных параметров. Полученные образцы по координатам системы GPS соотносились с территориями стай. Для последующего генетического анализа из указанной выше выборки были использованы 60 образцов. Дополнительно мы использовали 30 образцов волков со всей территории Карелии. Таким образом, общий объем биоматериала использованного для анализа контрольного региона I мтДНК составил – 90 проб.
ДНК из биоматериала выделяли с помощью набора Qiagene DNeasy Tissue kit (Qiagen), следуя инструкции производителя.
Изучение генетического разнообразия, динамики пространственно-временной структуры населения вида в районе исследований, филогеографической характеристики выполнены с использованием фрагмента контрольного региона I мтДНК длиной 350 п.н. (Saccone et al., 1987). Использованы универсальные праймеры Thr-L 15926 5'-CAATTCCCCGGTCTTGTAAACC-3' и DL-H 16340 5'-CCTGAAGTAGGAACCAGATG-3' (Vilà et al., 1999).
Амплификацию фрагмента контрольного региона I мтДНК проводили в объеме 25 µл, содержащим 16.5 µл H2O, 5 µл Screen Mix (Евроген), 1 µл каждого праймера (10 μM, Синтол) и 1.5 µл матричной ДНК. Протокол ПЦР: первоначальная денатурация при 95°С в течение 3 минут, 35 циклов – 20 с при 95°С, 20 с при 52°С и 20 с при 72°С, финальная элонгация в течение 5 мин при 72°C. Определение нуклеотидных последовательностей амплифицированного участка мтДНК было проведено по методу Сэнгера в двух направлениях с применением наборов для секвенирования ДНК BigDye Terminator 3.1. (Applied Biosystems, США) и генетического анализатора Seqstudio (Applied Biosystems). Полученные последовательности были отредактированы вручную и выравнены в программе MEGA11 (Tamura et al., 2021) при помощи алгоритма ClustalW. Гаплотипическое (Hd) и нуклеотидное (Pi) разнообразие рассчитывались в программе DnaSP 5.0 (Librado, Rozas, 2009).
Филогенетическая реконструкция проведена в MEGA11 методом ближайшего соседа (Saitou, Nei, 1987) в 1000 бутсреп репликациях. Эволюционные расстояния подсчитаны по методу Тамура-Ней (Tamura, Nei, 1993).
Все материалы ЗМУ, данные по добытым животным и полученные последовательности гаплотипов внесены в специально подготовленные формы в программе Excel. Геоинформационная система экспериментальной территории в комплексе с анализируемыми данными создана на базе программ: SASPlanet.190707 и QGIS Desktop 3.4.14.
Динамику численности волка описывает линейная модель, расчеты для нее выполнены в программе RStudio 2021.09.1+372 “Ghost Orchid” с использованием пакета “basicTrendline” (Mei, Yu, 2020).
Для анализа связей в системе “хищник-жертва-охота” были рассчитаны ранговые коэффициенты корреляции Спирмена в программе STATGRAPHICS Plus Version 5.
РЕЗУЛЬТАТЫ ИССЛЕДОВАНИЯ
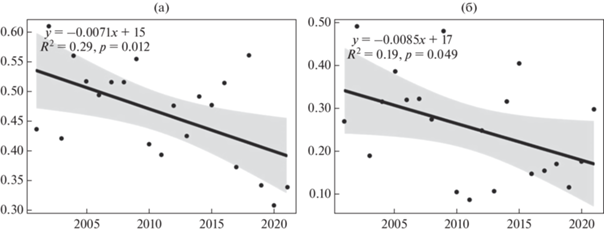
Характеризуя динамические показатели населения волка с начала нового тысячелетия, отмечается тенденция к сокращению его численности, как на экспериментальной территории в Кондопожском районе, так и в целом в подзоне средней тайги Карелии (рис. 1). Линейные модели, построенные в программе RStudio для описания этих процессов, показывают достоверное снижение численности вида на обеих территориях (рис. 2).
Рис. 1.
Динамика численности лося в подзоне средней тайги в Карелии (1), в Кондопожском районе РК (2) и волка для тех же территорий, соответственно (3) и (4), а также добыча волка в Кондопожском р-не РК (зеленые столбики). По оси абсцисс – годы. По оси ординат: а – число следов лося и волка на 10 км маршрута; б – количество волков добытых в Кондопожском р-не РК, экз.
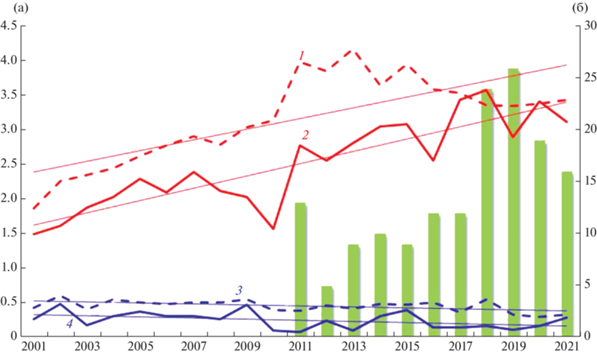
Рис. 2.
Модель, описывающая динамику численности волка в подзоне средней тайги (а) и в Кондопожском районе (б) Карелии. По оси абсцисс – годы. По оси ординат – число следов волка на 10 км маршрута.
Анализируя взаимоотношения в системе “хищник-жертва” с учетом тайм лага на экспериментальной территории с 2000-х гг., взаимосвязь динамик численности видов не прослеживается (r = –0.220; p = 0.337). Значимых достоверных корреляционных связей между изменениями численности хищника и жертвы (r = 0.006; p = 0.985), добычей волка и динамикой волка (r = 0.194; p = = 0.559) и лося (r = 0.456; p = 0.171) на изучаемой территории не выявлено. Точно также отсутствуют достоверные корреляционные связи между динамикой численности волка и лося в подзоне средней тайги (r = –0.373; p = 0.104). Рассматривая изменение этих параметров в большей разрядности на территории всего региона – Республика Карелия и за более продолжительный период времени, выявлено (рис. 3):
Рис. 3.
Динамика численности лося (1) и волка (2), а также добыча волка в Карелии (3). По оси абсцисс – годы. По оси ординат: число следов волка (а) и лося (б) на 10 км маршрута; В – количество волков, добытых Карелии, экз.
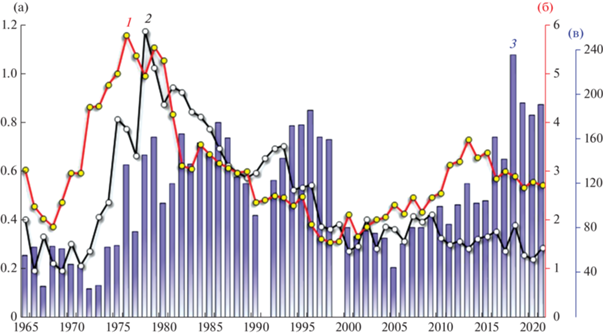
1) согласованность хода численности волка и лося с 1965 по 2000 гг. (r = 0.707; p = 0.0001);
2) связи между добычей волка и ходом его численности в этот период (r = 0.245; p = 0.1727), а также лося (r = –0.038; p = 0.8302) выявлено не было;
3) отсутствие зависимости изменений динамики численности хищника от таковых жертвы за 2001–2021 гг. (r = –0.286; p = 0.200);
4) в этот же время увеличение добычи волка положительно сказывается на популяционной динамике лося (r = 0.733; p = 0.001) и, что очевидно, отрицательно − на ходе численности самого хищника (r = –0.566; p = 0.011).
В указанную выше матрицу расчета корреляционных связей мы включили и данные по динамике зайца-беляка в Карелии. Оказалось, что для периода 1965–2000 г. существует значимая связь в паре волк-заяц (r = 0.607; p = 0.001), но в отличие от пары волк-лось, в случае с зайцем она сохраняется и в новом тысячелетии (r = 0.474; p = 0.034).
Общая биогеографическая характеристика населения волка Фенноскандии представлена на рис. 4а. Прослеживается изолированность шведско-норвежской популяции, выраженная мозаичность финской и равномерное население волка на юге и в центральной Карелии, тогда как север, включая Мурманскую область, напротив заселен хищником неравномерно, присутствие волка непостоянно, а численность его там низка.
Рис. 4.
Местоположение района исследований – красный прямоугольник и здесь же распространение волка в Фенноскандии по: Kaczensky et al, 2021, дополненное нашими данными для Кольско-Карельского региона (а). Места добычи волков (1)*, полигоны соответствующие территориям занимаемыми разными стаями (2), особи с указанием пола, даты добычи и цветовым обозначением соответствующего гаплотипа мтДНК OP503597 (3)** и OP503598 (4), на территории Кондопожского муниципального района (б). * – точка на карте, в нескольких случаях, совпадает для животных, добытых в одной и той же локации, ** – стайные особи сгруппированы вместе.
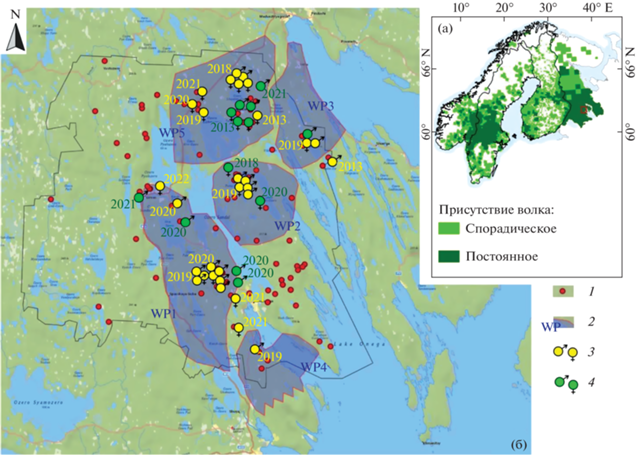
Данные по добыче волков, их семейным участкам и гаплотипам мтДНК, принадлежащим разным стаям, отмечены на карте Кондопожского района (рис. 4б). На территории района нами установлены участки обитания пяти стай (рис. 4б), что не исключает наличия территорий других семей.
Результаты оценки генетического разнообразия представлены в табл. 1. Полученная выборка разделена на два кластера: 1 – Кондопожский р-н РК (n = 60); 2 – Республика Карелия (n = 32, включая два образца с территории Кондопожского р-на). Всего было получено три гаплотипа: два принадлежали волкам и один собаке. Полученные нуклеотидные последовательности волков были депонированы в международной базе данных GenBank с номерами доступа: OP503597 и OP503598. При сравнении с данными из GenBank установлено: Гаплотип № 1 (OP503597) ранее был отмечен у волков из России, в частности из района Уральских гор, а так же в Латвии, Финляндии и Швеции. Гаплотип № 2 (OP503598) полностью совпал с гомологичными нуклеотидными последовательностями фрагмента контрольного региона I мтДНК волка из России, Латвии, Эстонии, Польши, Беларуси, Украины, Швеции, Норвегии и Финляндии (Ellegren et al., 1996; Vilà et al., 1999; Randi et al., 2000; Valière et al., 2003; Flagstad et al., 2003; Leonard et al., 2005; Bjornerfeldt et al., 2006; Weckworth et al., 2010; Pilot et al., 2010; Hindrikson et al., 2012). Доля гаплотипа №1 в исследованной выборке составила 67%.
Таблица 1.
Параметры генетического разнообразия фрагмента контрольного региона мтДНК изученных выборок волков
| Локалитет, период | n | H | Hd | P | S |
|---|---|---|---|---|---|
| Карелия, 2011–2022 гг. | 32 | 3* | 0.546 ± 0.036 | 0.00719 ± 0.00053 | 8 |
| Кондопожский р-н РК, 2011–2022 гг. | 60 | 2 | 0.440 ± 0.045 | 0.00564 ± 0.00058 | 5 |
n – размер выборки; H – число гаплотипов; Hd – гаплотипическое разнообразие; P – нуклеотидное разнообразие; S – число полиморфных сайтов.
* – пояснения см. рис. 6.
В филогенетический анализ включена 31 последовательность контрольного региона мтДНК длиной 308 п.н., из них два гаплотипа, полученных в нашей работе, 28 из GenBank и в качестве “внешней группы” одна нуклеотидная последовательность шакала – OL323053 (Rykov et al., 2022) (рис. 5, табл. 2).
Рис. 5.
Филогенетическое дерево контрольного региона мтДНК волка, построенное методом ближайшего соседа.
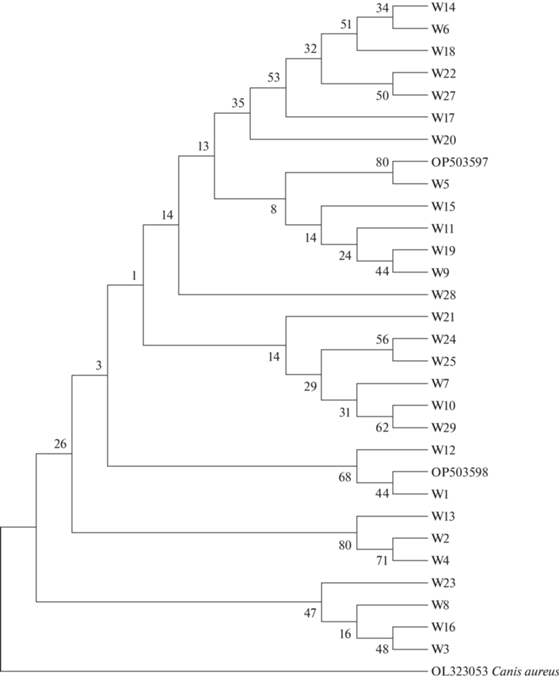
Таблица 2.
Гаплотипы фрагмента контрольного региона мтДНК волка (Canis lupus L.), использованные для построения филогенетического древа (рис. 5)
| Гаплотип | Номер доступа в GenBank | Локализация гаплотипа | |
|---|---|---|---|
| Pilot et al., 2010 | Randi et al., 2000 | ||
| W1 | FJ978005 | AF115692, AF115693 | Польша, Латвия, Эстония, Беларусь, Украина, Россия, Швеция, Норвегия, Финляндия |
| W2 | FJ978007 | Польша, Литва, Латвия, Беларусь, Украина, Россия | |
| W3 | FJ978009 | Польша, Латвия, Беларусь, Украина, Россия, Болгария, Саудовская Аравия | |
| W4 | FJ978010 | AF115690 | Беларусь, Украина, Россия, Швеция, Румыния, Болгария, Греция |
| W5 | FJ978011 | AF115698 | Латвия, Россия, Финляндия, Швеция |
| W6 | FJ978013 | AF115701 | Польша, Беларусь, Украина, Россия, Болгария, Греция |
| W7 | FJ978015 | Беларусь, Украина, Россия, Саудовская Аравия, Китай | |
| W8 | FJ978017 | Россия, Швеция, Норвегия, Финляндия | |
| W9 | FJ978018 | Латвия, Россия, Швеция | |
| W10 | FJ978019 | AF115694, AF115695 | Польша, Россия, Хорватия, Болгария, Греция, Турция, Испания, Португалия |
| W11 | FJ978021 | Беларусь, Украина, Словакия, Болгария | |
| W12 | FJ978022 | Беларусь, Россия | |
| W13 | FJ978023 | AF115691 | Болгария, Греция, Югославия |
| W14 | FJ978025 | Польша, Словакия, Румыния, Болгария, Греция | |
| W15 | FJ978026 | Украина | |
| W16 | FJ978027 | AF115687, AF115688 | Болгария |
| W17 | FJ978029 | Болгария, Греция | |
| W18 | FJ978030 | Украина | |
| W19 | FJ978031 | Польша, Болгария, Турция | |
| W20 | FJ978033 | Турция | |
| W21 | FJ978034 | Россия | |
| W22 | FJ978035 | AF115699 | Италия, Швейцария, Франция |
| W23 | AF115689 | Хорватия | |
| W24 | AF115703 | Испания, Португалия | |
| W25 | AF115702 | Испания | |
| W27 | AF115700 | Болгария | |
| W28 | AF115697 | Израиль | |
| W29 | AF115696 | Израиль | |
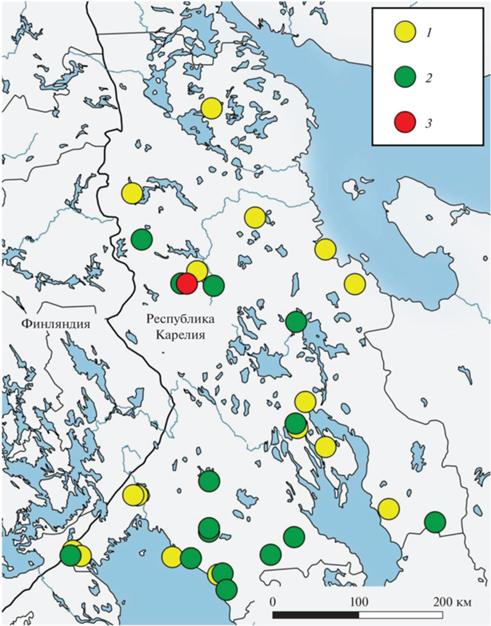
Отмеченные нами гаплотипы распределены по территории Карелии довольно равномерно, однако гаплотип № 1 распространен более широко и дальше на север (рис. 6).
Рис. 6.
Распределение гаплотипов контрольного региона мтДНК волка по территории Карелии: 1 – гаплотип №1 OP503597; 2 – гаплотип № 2 OP503598; 3 – “гибрид”, гаплотип собаки Canis familiaris L.
В ходе анализа материалов по добыче волка и гаплотипического разнообразия контрольного региона I мтДНК в районе исследований отмечены особенности организации пространственно-временной структуры популяции. На рис. 4 показана территория стаи WP5, здесь в течение одного месяца 2013 г. вокруг пос. Кяппесельга были добыты шесть волков, пять из которых имели гаплотип № 2, а один № 1. Вероятно, они принадлежали одной стае, однако достоверно степень родства этих животных нам не известна. Из-за постоянного пресса охоты стая здесь сформировалась только к 2018 г. и была изъята. Эта семья состояла из шести особей (три самца и три самки), имевших особенности окраса – ярко выраженный рыжеватый оттенок. Животные вели полусинантропный образ жизни – питаясь отходами форелевого хозяйства, что возможно объясняет и особенности окраса зверей. Пять членов этой стаи имели гаплотип №1, от одной особи биоматериал не был получен. Позднее и по настоящий момент на этой территории добывают одиночных особей с вариациями двух упомянутых гаплотипов, но с преобладанием № 1. Семья волков на территории WP2 была изъята в 2019 г., все особи имели гаплотип №1, в последующем здесь добывали особей с гаплотипом № 2. Осенью 2019 г. на территории WP1 обитала стая из восьми волков, из них в декабре этого же года добыли двух самцов (2+ и 3+). Оставшиеся 6 зверей ушли в заповедник “Кивач”, расположенный полностью внутри территории WP1. Однако в феврале 2020 г. эти волки покинули ООПТ “Кивач” и были отстреляны, включая матерых самца и самку пяти лет. Все восемь членов этой стаи имели гаплотип № 1. Уже осенью 2020 г. по периферии территории WP1 стали добывать отдельных зверей с гаплотипами № 1 и № 2. Единственная смешанная группа волков, отмеченная в сопроводительных документах к добыче, как стая, состоявшая из трех особей с гаплотипами № 1 (две особи) и № 2 (одна особь), была добыта на территории WP3 в 2019 г. Участок стаи WP4 (рис. 4) с юго-восточной стороны изображен с зубчатым краем, поскольку нам неизвестно где оканчивается территория данной семьи. На обсуждении этой стаи мы не будем останавливаться, поскольку здесь в разные годы были добыты всего три одиночных волка.
ОБСУЖДЕНИЕ РЕЗУЛЬТАТОВ
История волков Фенноскандии мало чем отличалась от всего, что происходило c крупными хищниками в западной Европе. В Скандинавии (Швеции и Норвегии) волки перестали существовать в середине XX в. (Wabakken et al., 2001), а еще раньше примерно к 1920-м гг., эти хищники практически исчезли с территории Финляндии (Pulliainen, 1980). В первой половине XX века в Карелии, особенно в северной ее части, волк был крайне редок, а последующий рост его населения совпал с интенсивным лесопромышленным освоением республики и увеличением численности лося (Данилов и др., 2020а). Возникнув вновь в начале 1980-х гг., скандинавская популяция волков и по сей день остается практически изолированной (Smeds et al., 2021). В отношении финской популяции считается, что она на всех этапах своего развития до начала нового тысячелетия отражала колебания численности карельской (российской) (Aspi et al., 2006).
Современная численность волка в Карелии примерно вдвое ниже, чем в 1970–1980-е гг., при этом, добыча вида достигла и даже превышает показатели того периода. С 2005 г. отмечается более чем пятикратный рост ежегодной добычи волков с 40 до 236 в 2018 г. (по материалам государственной экологической экспертизы лимитов добычи охотничьих животных МПРиЭ РК). Нелегальной добычи волков в регионе нет. Разрешения на охоту доступны и за добытого волка выплачивается премия. Кроме того, с 2018 г. у охотников появилась возможность получить дополнительную лицензию на добычу лося за истребление волков, что стало очередным триггером интенсификации этого процесса (рис. 3). Активизация охоты не замедлила сказаться на численности волка. Все это происходит на фоне длительной депрессии численности зайца-беляка, начавшейся в конце 1980-х гг. По мнению некоторых исследователей (Данилов и др., 1979; Руковский, 1985 и др.), уровень численности зайца может иметь критическое значение для выживания волчьих выводков. В пользу высказанного предположения говорит и отмеченная нами сильная корреляционная связь между изменениями численности этой пары. Постепенно к XXI в. естественные факторы, в частности популяционная динамика основной жертвы – лося, перестают быть ведущими, и на первый план выходит деятельность человека в виде охоты. Прямым следствием добычи волка является сокращение численности его населения. Впоследствии, вероятно срабатывает некий каскадный эффект, отражающийся на многих аспектах популяционной структуры. Частое истребление стай или регулярная потеря их членов приводит к разрушению социальной структуры, ротации размножающихся особей, изменению физиологического статуса животных, снижению успешности размножения и выживаемости молодняка, инбридингу и гибридизации (Рябов, 1973; Jędrzejewska et al., 1996; Grewal et al., 2004; Brainerd et al., 2008; Bryan et al., 2015 и др.). Однако как частный случай активная охота может способствовать увеличению генетического разнообразия, но при условии интенсивного притока особей с других территорий (Jędrzejewski et al., 2005). Тем не менее, итогом чрезмерного изъятия животных является потеря уникальных генов и общее обеднение генофонда, как это было показано на примере частично изолированной скандинавской популяции волка (Kardos et al., 2018; Smeds et al., 2021).
Не располагая демографическими показателями на текущий момент, судить о доле изымаемых особей, их “удельном весе” в популяции в ходе охоты трудно, мы можем попытаться сделать это только приблизительно. В случае с самым “оптимистичным” прогнозом для рассматриваемой популяции, опираясь на данные приводимые П.И. Даниловым (2005) для Карелии, даже если соотношение полов близко к 1 : 1, а в размножении участвуют до 70% всех самок, охотничье изъятие будет соответствовать показателям воспроизводства популяции после естественной смертности сеголетков к началу зимнего периода. Таким образом, пополнение возможно только за счет притока особей извне, а этого, судя по трендам численности, не происходит в достаточной степени (рис. 2 и 3).
В представленной работе мы использовали анализ мтДНК, являющийся инструментом разнообразных филогенетических построений и филогеографических исследований, редко используемый для изучения современных событий. Однако в своих рассуждениях мы шли от общей картины гаплотипического разнообразия региона к пониманию механизмов его формирования через анализ современных локальных популяционных преобразований. За период наблюдений на изучаемой территории нам удалось определить несколько семейных участков волков и проследить за судьбой обитавших там стай. Выполненный нами генетический анализ показал, что в целом пул гаплотипов мтДНК волков Карелии (рис. 6) и района исследований (рис. 4б) неуникален и представлен всего двумя распространенными в Евразии вариантами (рис. 5). Исходя из этих предпосылок, предполагалось, что характер динамики гаплотипического разнообразия в результате охоты состоял в “перетасовке” имеющихся двух вариантов. По трем стайным участкам WP1, WP2 и WP5 информация была наиболее подробной. Три стаи, обитавшие на этих территориях, полностью состояли из особей “носителей” гаплотипа №1 (рис. 4б). Это говорит в пользу родства их членов в результате материнского типа наследования мтДНК, но и самцы-основатели этих стай так же не отличались гаплотипами. Известно, что в естественных условиях ядро популяции формирует семья-стая, в которой обычно в размножении участвует только α-пара. В случае с нарушенной популяционной структурой в размножение могут вступать особи разного возраста, социального статуса и даже близкого родства (Данилов и др., 1985; Ballard et al., 1987; Mech, 1999; Fuller et al., 2003; Юдин, 2013). Однако и эта вынужденная реакция имеет свои биологически обусловленные пределы, ярким примером служат наблюдения за волками на острове Айл-Рояль, когда небольшая и в определенный момент своего существования изолированная популяция, оказывается не в состоянии преодолеть комплекс внутривидовых ограничений и последствий, вызванных инбридинговой депрессией (Hedrick et al., 2019). Рассматривая наш пример, возможно, что наблюдаемая структура есть результат построения семей близкородственными особями (у всех один гаплотип, притом, что в регионе распространены два) в условиях постоянного преследования, а, следовательно, и стресса животных. В этом смысле интересна история волков с семейного участка WP5 (рис. 4б). В самом начале наших наблюдений в 2013 г., здесь поодиночке добыли шесть зверей, пять из которых были с гаплотипом № 2, а один с № 1, возможно, что они были из одной стаи. История этой группы была прервана, и впоследствии здесь обосновалась стая с гаплотипом № 1, но и она закончила свое существование в 2018 г. Таким образом, полностью стираются все генетические линии, присущие конкретным семьям, и если это происходит до дисперсии молодых, то эти преобразования уже необратимы. Масштабность вмешательства в естественные генетические процессы волка Карелии становится очевидной на фоне общего регистрируемого в настоящий момент уровня добычи этого вида (рис. 3).
Следующий механизм, включающийся в условиях жесткой нехватки особей своего вида – межвидовая гибридизация. В относительно небольшой выборке с территории Карелии (n = 32), по крайней мере, один из исследованных нами образцов принадлежал волко-собачьему гибриду (рис. 6). Материнский тип наследования мтДНК предполагает, что (про)матерью гибрида была собака. Для гибридизации между волками и собаками характерна половая асимметрия и описанный вариант межвидового скрещивания встречается редко, чаще волчица, оставшись одна, подбирает себе в пару кобеля собаки (Hindrikson et al., 2012). Данная проба получена из северной Карелии, где плотность популяции ниже, а распределение волчих стай носит мозаичный характер (Данилов, 2005). Сочетания условий сильно разреженного населения вида и интенсивной охоты на него, по всей видимости, оказалось достаточно для появления редкого по характеру происхождения гибрида. В результате неизбирательная охота ведет к “засорению” генома дикого вида, что ставит вопросы правового характера о статусе популяции и перспективах ее дальнейшего “легального” существования. Эти вопросы являются предметом широкого обсуждения в Европе, а на практике в Скандинавии действует правило незамедлительной выбраковки гибрида из природы, что обеспечивает генетическую “чистоту” популяции, несмотря на высокую инбредность (Liberg et al., 2012; Smeds et al., 2021).
В биогеографическом смысле фауна млекопитающих Карелии относится к Восточной Фенноскандии и функционально связывает Фенноскандию с европейским севером России и далее на восток, причем реализуется она ограниченно посредством работы трех экологических коридоров (Linden et al., 2000; Курхинен и др., 2006). Ряд видов диких животных в Финляндии восстановились и существуют за счет “донорства” популяций с территории Карелии. Данное утверждение справедливо в отношении таких зверей как лесной северный олень (Данилов и др., 2020б), росомаха (Данилов, Тирронен, 2010) или волк (Pulliainen, 1980). В свою очередь, население волка Скандинавии характеризуется общностью происхождения с финско-российской популяцией, которая по результатам полногеномного секвенирования объединена в один кластер (Smeds et al., 2021). При этом в отношении двух территориальных субъединиц географически и генетически единой популяции финско-карельских волков реализуются совершенно разные стратегии управления. Охота на волка в Финляндии и Скандинавии – сложный процесс согласования и поиска компромисса многих заинтересованных сторон с европейскими директивами в отношении крупных хищников. В целом добыча невелика, а управление в большей степени сводится к охране, хотя отмечается и браконьерство в форме социального протеста (Suutarinen, Kojola, 2018; Liberg et al., 2020). Кардинальные различия в подходах популяционного менеджмента волков двух стран сказываются на трендах численности вида. В новом тысячелетии они находятся в противофазе (Aspi et al., 2009; Suutarinen, Kojola, 2017). Более того, в генетической структуре населения волков двух стран также проявляются различия. Так Янссон с соавторами (Jansson et al., 2012) указывают на снижение потока генов из России в Финляндию по мере роста численности вида в последней. Это может объясняться “насыщением” и стабилизацией популяционной семейной структуры волков этой территории. Э. Ранди отмечает, что для демографически стабильных популяций, по-видимому, характерен очень ограниченный поток генов (Randi, 2011). Очевидно, в такой системе происходят процессы характерные для естественной популяции за пределами периода экспансии. Более того, оценка направлений потоков недавней миграции, показала, что в большей степени он идет из Финляндии в Россию, чем наоборот (Aspi et al., 2009). В отсутствии других источников для обмена генетическим материалом, финская и скандинавская популяции уязвимы и крайне нуждаются в связи с “материнской” – российской и интенсивном обмене мигрантами для поддержания жизнеспособности и нивелирования эффектов изоляции (Jansson, 2013; Laikre et al., 2016). Однако на современном этапе ситуация обратная – теперь финская популяция волков выступает в роли донорской.
Гаплотипическое разнообразие контрольного региона мтДНК волков Финляндии, представлено в статье Э. Ранди с соавторами (Randi et al., 2000), а обнаруженные ими последовательности загружены в GenBank (AF115692, AF115693, AF115698). После выравнивания фрагментов по длине они полностью совпали с двумя гаплотипами, полученными в нашей работе (OP503597, OP503598). Ретроспективный анализ динамики гаплотипического полиморфизма мтДНК волков за минувшее столетие в Финляндии показал, что всего существовало восемь гаплотипов, пять из которых к настоящему времени уже утрачены в современной популяции (Jansson, 2013). На сегодняшний день, для волка Евразии отмечено 57 гаплотипов, из которых 41 уникальны для территории России (Нечаева и др., 2022). Авторы этого исследования полагают, что волки лесной и лесостепной зон России формируют ядро генофонда вида в Палеарктике. Таким образом, на фоне выраженного разнообразия (заметим, что исследованиями охвачен далеко не весь ареал), генетическая структура мтДНК волка изучаемого региона выглядит обедненной. Наиболее очевидно, это объясняется историей вида, этапами сильного сокращения численности и эффектом “бутылочного горлышка”.
Список литературы
Бибиков Д.И., Приклонский С.Г., Филимонов А.Н. СССР. Численность и особенности образа жизни по регионам // Волк. Происхождение, систематика, морфология, экология. М.: Наука, 1985. С. 452–466.
Данилов П.И., Русаков О.С., Туманов И.Л. Хищные звери Северо-Запада СССР. Л.: Наука, 1979. 164 с.
Данилов П.И., Гурский И.Г., Кудактин А.Н. Размножение // Волк. Происхождение, систематика, морфология, экология. М.: Наука, 1985. С. 378–388.
Данилов П.И. Охотничьи звери Карелии: экология, ресурсы, управление, охрана. М.: Наука, 2005. 340 с.
Данилов П.И., Тирронен К.Ф. Виды индикаторы // Мониторинг и сохранение биоразнообразия таежных экосистем Европейского Севера России. Петрозаводск, 2010. С. 158–169.
Данилов П.И., Тирронен К.Ф., Панченко Д.В. Лось Alces alces L. и волк Canis lupus L.: мониторинг популяций и взаимоотношений на Европейском Севере России // Бюллетень МОИП. 2020а. Т. 125. Вып. 2. С. 12–24.
Данилов П.И., Панченко Д.В., Тирронен К.Ф. Северный олень Восточной Фенноскандии. Петрозаводск: КарНЦ РАН. 2020б. 187 с.
Курхинен Ю.П., Данилов П.И., Ивантер Э.В. Млекопитающие Восточной Фенноскандии в условиях антропогенной трансформации таежных экосистем. М.: Наука, 2006. 208 с.
Нечаева А.В., Белоконь М.М., Белоконь Ю.С., Казимиров П.А., Бондарев А.Я., Давыдов А.В., Политов Д.В. Генетическое разнообразие Canis lupus L. в Восточной Европе на основе митохондриальных данных // Мат. конф. “Генетические процессы в популяциях. Москва. 11–14 октября 2022 г. М.: Ваш Формат. С. 44.
Руковский Н.Н. Питание. Питание и биоценотические отношения // Волк. Происхождение, систематика, морфология, экология. М.: Наука, 1985. С. 325–335.
Рябов Л.С. Волко-собачьи гибриды в Воронежской области // Бюлл. МОИП. Отд. Биол., 1973. Т. 78. Вып. 6. С. 25–39.
Филонов К.П. Копытные животные и крупные хищники на заповедных территориях. М.: Наука, 1989. 253 с.
Юдин В.Г. Волк Дальнего Востока России. 2-е изд., перераб. и доп. Владивосток: Дальнаука, 2013. 411 с.
Allendorf F.W., England P.R., Luikart G., Ritchie P.A., Ryman N. Genetic effects of harvest on wild animal populations // Trends Ecol. Evol. 2008. V. 23. P. 327–337. https://doi.org/10.1016/j.tree.2008.02.008
Allendorf F.W., Hard J.J. Human-induced evolution caused by unnatural selection through harvest of wild animals // PNAS. 2009. V. 106(1). P. 9987–9994. https://doi.org/10.1073/pnas.0901069106
Aspi J., Roininen E., Kiiskilä J., Ruokonen M., Kojola I., Bljudnik L., Danilov P., Heikkinen S., Pulliainen E. Genetic structure of the northwestern Russian wolf populations and gene flow between Russia and Finland // Conserv. Gen. 2009. V. 10(4). P. 815–826. https://doi.org/10.1007/s10592-008-9642-x
Aspi J., Roininen E., Ruokonen M., Kojola I., Vilà C. Genetic diversity, population structure, effective population size, and demographic history of the Finnish wolf population // Molecular Ecology. 2006. V.15. P. 1561–1576. https://doi.org/10.1111/j.1365-294X.2006.02877.x
Ballard W.B., Whitman J.S., Gardner C.L. Ecology of an exploited wolf population in south-central Alaska // Wildl. Monogr. 1987. V. 98. 54 p.
Bjornerfeldt S., Webster M.T., Vila C. Relaxation of selective constraint on dog mitochondrial DNA following domestication // Genome Res. 2006. V. 16(8). P. 990–994. https://doi.org/10.1101/gr.5117706
Brainerd S.M., Andren H., Bangs E.E., Bradley E.H., Fontaine J.A., Hall W., Iliopoulos Y., Jimenez M.D., Jozwiak E.A., Liberg O., Mack C.M., Meier T.J., Niemeyer C.C., Pedersen H.C., Sand H., Schultz R.N., Smith D.W., Wabakken P., Wydeven A.P. The effects of breeder loss on wolves // J. Wildl. Manag. 2008. V. 72. P. 89–98. https://doi.org/10.2193/2006-305
Bryan H.M., Jeg S., Koren L., Paquet P.C., Wynne-Edwards K.E., Musiani M. Heavily hunted wolves have higher stress and reproductive steroids than wolves with lower hunting pressure // Funct. Ecol. 2015. V. 29. P. 347–356. https://doi.org/10.1111/1365-2435.12354
Boitani L. Wolf conservation and recovery. In: Wolves. Behavior, Ecology and Conservation (eds Mech LD, Boitani L), University of Chicago Press, Chicago, Illinois. 2003. 317–340 p.
Boitani L., Alvarez F., Anders O., Andren H., Avanzinelli E., Bailey V., Blanco J.C., Breitenmoser U., Chapron G., Ciucci P., Dutsov A., Groff C., Huber D., Ionescu O., Knauer F., Kojola I., Kubala J., Kutal M., Linnell J., Majic A., Mannil P., Manz R., Marucco F., Melovski D., Molinari A., Norberg H., Nowak S., Ozolins J., Palazon S., Potocnik H., Quenette P.-Y., Reinhardt I., Rigg R., Selva N., Sergiel A., Shkvyria M., Swenson J., Trajce A., von Arx M., Wolfl M., Wotschikowsky U., Zlatanova D. Key actions for Large Carnivore populations in Europe. Institute of Applied Ecology (Rome, Italy) // Report to DG Environment, European Commission, Bruxelles. 2015. Contract no. 07.0307/2013/654446/SER/B3.
Boitani L., Kaczensky P., Alvares F., Andrén H., Balys V., Blanco J.C., Chapron G., Chiriac S., Cirovic D., Drouet-Houguet N., Groff C., Huber D., Iliopoulos Y., Ionescu O., Kojola I., Krofel M., Kutal M., Linnell J., Majic A., Mannil P., Marucco F., Melovski D., Mengüllüoğlu D., Mergeay J., Nowak S., Ozolins J., Perovic A., Rauer G., Reinhardt I., Rigg R., Salvatori V., Sanaja B., Schley L., Shkvyria M., Sunde P., Tirronen K., Trajce A., Trbojevic I., Trouwborst A., von Arx M., Wolfl M., Zlatanova D., Patkó L. Assessment of the conservation status of the Wolf (Canis lupus) in Europe // Report to Bern Convention – Convention on the Conservation of European Wildlife and Natural Habitats. 2022. 25 p.
Ellegren H., Savolainen P., Rosen B. The genetical history of an isolated population of the endangered grey wolf Canis lupus: A study of nuclear and mitochondrial polymorphisms // Phil. Trans. Roy. Soc. 1996. V. 351. P. 1661–1669. https://doi.org/10.1098/rstb.1996.0148
Flagstad Ø., Walker C., Vilà C., Sundqvist A.-K., Fernholm B., Hufthammer A.K., Wiig Ø., Kojola I., Ellegren H. Two centuries of the Scandinavian wolf population: patterns of genetic variability and migration during an era of dramatic decline // Mol. Ecol. 2003. V. 12. P. 869–880. https://doi.org/10.1046/j.1365-294X.2003.01784.x
Fuller T.K., Mech L.D., Cochrane J.F. Wolf population dynamics In: Wolves. Behavior, Ecology and Conservation (eds Mech LD, Boitani L), University of Chicago Press, Chicago, Illinois. 2003. 161–191 p.
Gade-Jorgensen I., Stagegaard R. Diet composition of wolves Canis lupus in east-central Finland // Acta Theriol. 2000. V. 45. P. 537–547.
Grewal S.K., Wilson P.J., Kung T.K., Shami K., Theberge M.T., Theberge J.B., White B.N. A genetic assessment of the eastern wolf (Canis lycaon) in Algonquin Provincial Park // J. Mammalogy. 2004. V. 85. P. 625–632. https://doi.org/10.1644/1545-1542(2004)085%3C0625:AGAOTE%3E2.0.CO;2
Harris R.B., Wall W.A., Allendorf F.W. Genetic consequences of hunting: What do we know and what should we do? // Wildl. Soc. Bull. 2002. V. 30. P. 634–643. https://doi.org/10.2307/3784528
Hedrick P.W., Robinson J.A., Peterson R.O., Vucetich J.A. Genetics and extinction and the example of Isle Royale wolves // Animal Conserv. 2019. V. 22. P. 302–309. https://doi.org/10.1111/acv.12479
Hindrikson M., Mannil P., Ozolins J., Krzywinski A., Saarma U. Bucking the Trend in Wolf-Dog Hybridization: First Evidence from Europe of Hybridization between Female Dogs and Male Wolves // PLoS ONE. 2012. V. 7(10). e46465. https://doi.org/10.1371/journal.pone.0046465
Jansson E., Ruokonen M., Kojola I., Aspi J. Rise and fall of a wolf population: genetic diversity and structure during recovery, rapid expansion and drastic decline // Mol. Ecol. 2012. https://doi.org/10.1111/mec.12010
Jansson E. Past and present genetic diversity and structure of the Finnish wolf population. PhD Thesis. Oulu 2013.
Jędrzejewska B., Jędrzejewski W., Bunevich A.N., Miłkowski L., Okarma H. Population dynamics of wolves Canis lupus in Białowieza a primeval forest (Poland and Belarus) in relation to hunting by humans, 1847–1993 // Mammal Review. 1996. V. 26. P. 103–126. https://doi.org/10.1111/j.1365-2907.1996.tb00149.x
Jędrzejewski W., Branicki W., Veit C., Meðugorac I., Pilot M., Bunevich A.N., Jêdrzejewska B., Schmidt K., Theuerkauf J., Okarma H., Gula R., Szymura L., Förster M. Genetic diversity and relatedness within packs in an intensely hunted population of wolves Canis lupus // Acta Theriol. 2005. V. 50. P. 3–22. https://doi.org/10.1007/BF03192614
Kaartinen S., Antikainen H., Kojola I. Habitat model for a recolonizing wolf (Canis lupus) population in Finland // Ann. Zool. Fenn. 2015. V. 52. P. 77–89. https://doi.org/10.5735/086.052.0207
Kaczensky P., Linnell J.D.C., Huber D., von Arx M., Andren H., Breitenmoser U., Boitani L. Distribution of large carnivores in Europe 2012–2016: Distribution maps for Brown bear, Eurasian lynx, Grey wolf, and Wolverine, Dryad, Dataset, 2021. https://doi.org/10.5061/dryad.pc866t1p3
Kardos M., Åkesson M., Fountain T., Flagstad Ø., Liberg O., Olason P., Sand H., Wabakken P., Wikenros C., Ellegren H. Genomic consequences of intensive inbreeding in an isolated wolf population // Nature Ecol. and Evol. 2018. V. 2(1). P. 124–131. https://doi.org/10.1038/s41559-017-0375-4
Kojola I., Kaartinen S., Hakala A., Heikkinen S., Voipio H-M. Dispersal behavior and the connectivity between wolf populations in Northern Europe // J. Wildl. Manag. 2009. V. 73. P. 309–313. https://doi.org/10.2193/2007-539
Kojola I., Helle P., Heikkinen S., Linden H., Paasivaara A., Wikman M. Tracks in snow and population size estimation: wolf in Finland // Wildl. Biol. 2014. V. 20. P. 279–284. https://doi.org/10.2981/wlb.00042
Laikre L., Olsson F., Jansson E., Hossjer O., Ryman N. Metapopulation effective size and conservation genetic goals for the Fennoscandian wolf (Canis lupus) population // Heredity. 2016. V. 117. P. 279–289. https://doi.org/10.1038/hdy.2016.44
Leonard J., Vilà C., Wayne R. Legacy lost: genetic variability and population size of extirpated US grey wolves (Canis lupus) // Mol. Ecol. 2005. V. 14. P. 9–17. https://doi.org/10.1111/j.1365-294X.2004.02389.x
Liberg O., Aronson Å., Sand H., Wabakken P., Maartmann E., Svensson L., Åkesson M. Monitoring of wolves in Scandinavia // Hystrix. 2012. V. 23(1). P. 29–34. https://doi.org/10.4404/hystrix-23.1-4670
Liberg O., Suutarinen J., Åkesson M., Andrén H., Wabakken P., Wikenros C., Sand H. Poaching-related disappearance rate of wolves in Sweden was positively related to population size and negatively to legal culling // Biol. Conserv. 2020. V. 243. https://doi.org/10.1016/j.biocon.2020.108456
Librado P., Rozas J. DnaSP v5: a software for comprehensive analysis of DNA polymorphism data // Bioinformatics. 2009. V. 25(11). P. 1451–1452.
Linden H., Danilov P.I., Gromtsev A.N., Helle P., Ivanter E.V., Kurhinen Ju. Large-scale forest corridors to connect the taiga fauna to Fennoscandia // Wildl. Biol. 2000. V. 6(3). P. 179–188. https://doi.org/10.2981/wlb.2000.007
Mech L.D. Alpha status, dominance, and division of labor in wolf packs // Can. J. Zool. 1999. V. 77. P. 1196–1203.
Mech D., Boitani L. Wolves: behaviour, ecology and conservation. London. The University of Chicago Press. 2003.
Mei W., Yu G. BasicTrendline: Add Trendline and Confidence Interval of Basic Regression Models to Plot. R package version 2.0.5. 2020. https://CRAN.R-project.org/package=basicTrendline.
Pilot M., Branicki W., Jędrzejewski W., Goszczyński J., Jędrzejewska B., Dykyy I., Shkvyrya M., Tsingarska E. Phylogeographic history of grey wolves in Europe // BMC Evol. Biol. 2010. V. 21. P. 10–104. https://doi.org/10.1186/1471-2148-10-104
Pulliainen E. The status, structure and behaviour of the wolf (Canis lupus L.) along the Fenno-Soviet border // Annales Zool. Fennici. 1980. V. 17. P. 107–112.
Randi E. Genetics and conservation of wolves Canis lupus in Europe // Mammal Review. 2011. V. 41. P. 99–111. https://doi.org/10.1111/j.1365-2907.2010.00176.x
Randi E., Lucchini V., Christensen M.F., Mucci N., Funk S.M., Dolf G., Loeschcke V. Mitochondrial DNA variability in Italian and East European wolves: Detecting the consequences of small population size and hybridization // Conserv. Biol. 2000. V. 14. P. 464–473. https://doi.org/10.1046/j.1523-1739.2000.98280.x
Rykov A.M., Kuznetsova A.S., Tirronen K.F. The first record of the golden jackal (Canis aureus Linnaeus, 1758) in the Russian Subarctic // Polar Biol. 2022. V. 45. P. 965–970. https://doi.org/10.1007/s00300-022-03037-0
Saccone C., Attimonelli M., Sbisá E. Structural elements highly preserved during the evolution of the D-loop-containing region in vertebrate mitochondrial DNA // J. Mol. Evol. 1987. V. 26. P. 205–211.
Saitou N., Nei M. The neighbor-joining method: A new method for reconstructing phylogenetic trees // Mol. Biol. Evol. 1987. V. 4. P. 406–425. https://doi.org/10.1093/oxfordjournals.molbev.a040454
Seddon J.M., Sundqvist A-K., Björnerfeldt S., Ellegren H. Genetic identification of immigrants to the Scandinavian wolf population // Conserv. Genet. 2006. V. 7. P. 225–230. https://doi.org/10.1007/s10592-005-9001-0
Smeds L., Aspi J., Berglund. J, Kojola I., Tirronen K., Ellegren H. Whole-genome analyses provide no evidence for dog introgression in Fennoscandian wolf populations // Evol. Appl. 2021. V. 14. P. 721–734. https://doi.org/10.1111/eva.13151
Suutarinen J., Kojola I. Poaching regulates the legally hunted wolf population in Finland // Biol. Conserv. 2017. V. 215. P. 11–18. https://doi.org/10.1016/j.biocon.2017.08.031
Suutarinen J., Kojola I. One way or another: predictors of wolf poaching in a legally harvested wolf population // Anim. Conser. 2018. https://doi.org/10.1111/acv.12409
Tamura K., Nei M. Estimation of the number of nucleotide substitutions in the control region of mitochondrial DNA in humans and chimpanzees // Mol. Biol. Evol. 1993. V. 10. P. 512–526. https://doi.org/10.1093/oxfordjournals.molbev.a040023
Tamura K., Stecher G., Kumar S. MEGA 11: Molecular Evolutionary Genetics Analysis Version 11 // Mol. Biol. Evol. 2021. V. 38(7). P. 3022–3027.
Valière N., Fumagali L., Gielly L., Miquel C., Benoit L., Poulle M.-L., Weber J.-M., Arlettaz R., Taberlet P. Long-distance wolf recolonization of France and Switzerland inferred from non-invasive genetic sampling over a period of 10 years // Anim Conserv. 2003. V. 6. P. 83–92. https://doi.org/10.1017/s1367943003003111
Vilà C., Amorim I.R., Leonard J.A., Posada D., Castroviejo J., Petrucci-Fonseca F., Crandall K.A., Ellegren H., Wayne R.K. Mitochondrial DNA phylogeography and population history of the Gray Wolf Canis lupus // Mol. Ecol. 1999. V. 8. P. 2089–2103. https://doi.org/10.1046/j.1365-294x.1999.00825.x
Wabakken P., Sand H., Liberg O., Bjarvall A. The recovery, distribution, and population dynamics of wolves on the Scandinavian peninsula, 1978–1998 // Can. J. Zool. 2001. V. 79. P. 710–725. https://doi.org/10.1139/z01-029
Weckworth B.V., Talbot S., Cook J. Phylogeography of Wolves (Canis lupus) in the Pacific Northwest // J. Mammal. 2010. V. 91(2). P. 363–375. https://doi.org/10.1644/09-MAMM-A-036.1
Дополнительные материалы отсутствуют.
Инструменты
Известия РАН. Серия биологическая


 Пн.-пт.: 10.00-19.00