

Журнал высшей нервной деятельности им. И.П. Павлова, 2023, T. 73, № 5, стр. 680-687
Особенности удержания в рабочей памяти цветных и монохромных изображений у обезьян Macaca mulatta
Д. Н. Подвигина 1, 2, *, Л. Е. Иванова 1, А. К. Хараузов 1
1 Институт физиологии им. И.П. Павлова РАН
Санкт-Петербург, Россия
2 Санкт-Петербургский государственный университет
Санкт-Петербург, Россия
* E-mail: daria-da@yandex.ru
Поступила в редакцию 07.12.2022
После доработки 09.06.2023
Принята к публикации 03.07.2023
- EDN: VWXYOS
- DOI: 10.31857/S004446772305009X
Аннотация
В поведенческих экспериментах исследовали способность макак-резусов к удержанию в рабочей памяти зрительных объектов, различающихся по форме, по цвету, либо по сочетанию этих признаков. Шесть самцов макак-резусов выполняли задачу отсроченного сопоставления с образцом, где образцами служили три геометрические фигуры из набора стимулов. В первой серии экспериментов это были разноцветные фигуры разной формы, во второй – круги разных цветов, в третьей – монохромные изображения различных фигур из набора стимулов. При использовании обоих признаков для удержания в памяти объектов обезьяны продемонстрировали максимальный результат, а задачу сопоставления по цвету выполняли в целом лучше задачи сопоставления по форме. Последний результат расходится с данными ряда работ, где в аналогичных экспериментах, но с одним образцом для запоминания, была продемонстрирована противоположная тенденция. Причиной этого может быть смещение фокуса внимания от локальных признаков (контуры фигур) к глобальным (цвет) при запоминании информации в условиях бо́льшей нагрузки на рабочую память в нашем исследовании.
Макаки-резусы являются наиболее популярной животной моделью для исследования когнитивных функций и их нарушений в результате различных патологий центральной нервной системы. Существует ряд стандартизированных методик исследования различных когнитивных процессов, применяемых как на людях, так и на животных. Одним из таких методов является задача отсроченного сравнения с образцом (delayed matching-to-sample task, DMTS), позволяющая исследовать особенности рабочей памяти и внимания. Задачи такого типа позволили установить роль гиппокампа, префронтальной и медиальной височной коры в процессах кратковременной памяти, контроля и внимания, и в исследованиях на приматах используются параллельно с регистрацией активности нейронов или при удалении определенных участков мозга, чтобы выявить их роль в обеспечении той или иной функции (Бондарь и др., 2018; Fuster, 2019). Для корректной трактовки получаемых результатов и их экстраполяции на людей необходимо в поведенческих экспериментах установить соответствие результатов выполнения данных задач людьми и макаками-резусами.
Процессы памяти и внимания в последнее время все чаще рассматриваются в тесной взаимосвязи с перцептивными процессами. Обсуждается не только влияние высокоуровневых процессов на восприятие, но и наоборот, наличие восходящих влияний на внимание и память со стороны восприятия (Kosilo et al., 2022). В литературе можно найти множество свидетельств параллельной перцептивной обработки информации о различных признаках зрительных объектов, например, таких, как цвет и форма (Livingstone, Hubel, 1987; Viviani, Aymoz, 2001; Hitch et al., 2020), а также их относительно независимого хранения в рабочей памяти как у людей, так и у других приматов (Christophel et al., 2017). Это, в свою очередь, может сказываться на некоей неравнозначности данных признаков в ходе выполнения различных когнитивных задач со зрительными объектами. Так, например, есть сведения о том, что в задачах на переключение внимания между этими признаками наблюдаются некоторые “сдвиги” (biases) в сторону предпочтения одного из этих двух признаков, причем направление данной тенденции зависит от возраста и наличия неврологических нарушений (Prevor, Diamond, 2005; Ellefson et al., 2006). В недавнем сравнительном исследовании (Mansouri et al., 2020) было показано, что при выполнении заданий на переключение внимания люди успешнее переключаются с задачи сопоставления объектов по форме на задачу сопоставления по цвету, чем наоборот. Причем авторы впервые показали, что данная тенденция имеет противоположное направление у макак-резусов, которые демонстрировали предпочтение в отношении формы. Эта тенденция для макак-резусов была продемонстрирована и в других схожих задачах (Ghasemian et al., 2021).
У людей предпочтение в отношении цвета было обнаружено при выполнении задач на рабочую память: так, в работе (Allen et al., 2006), одним из соавторов которой является создатель популярной модели рабочей памяти Алан Бэддели, было показано, что при запоминании нескольких зрительных объектов по одному из признаков (цвет или форма) испытуемые демонстрировали лучший результат при запоминании цвета фигур. Интересно, что в похожем задании (запоминание геометрических фигур по форме и цвету) макаки-резусы продемонстрировали обратную тенденцию – больший процент правильных ответов при запоминании формы (Fehring et al., 2022). Однако авторы этой недавно вышедшей работы использовали задание на запоминание одной фигуры, в отличие от эксперимента (Allen et al., 2006), где люди должны были удержать в памяти четыре объекта, то есть нагрузка на рабочую память у обезьян была гораздо ниже.
Целью нашей работы было проверить в поведенческих экспериментах, наблюдается ли у макак-резусов предпочтение отдельных признаков объектов (цвета либо формы) при их удержании в рабочей памяти в условиях повышенной нагрузки на нее.
МЕТОДИКА
Исследование проводили на шести самцах Macaca mulatta в возрасте 7–16 лет (ЦКП “Биоколлекция ИФ РАН для исследования интегративных механизмов деятельности нервной и висцеральных систем”). Вес животных – 8–13 кг. Все животные были рождены и выращены в неволе и имели опыт участия в поведенческих экспериментах. Эксперименты проводили в соответствии с положениями Директивы 2010/63/EU Европейского Парламента и Совета Европейского Союза от 22 сентября 2010 г. по охране животных, используемых в научных целях (European Union Directive 2010/63/EU, EU 2010). Протокол исследования одобрен Комиссией по содержанию и использованию лабораторных животных Института физиологии им. И.П. Павлова РАН.
Эксперименты проводили с использованием экспериментального комплекса для психофизических и поведенческих исследований на обезьянах, разработанного в Институте физиологии им. И.П. Павлова РАН. Основу комплекса составляет компьютер с сенсорным монитором Iiyama prolite t2250mts на базе оптической технологии регистрации прикосновений с размером видимой области 268 × 477 мм. Используемое программное обеспечение EventIDE (разработчик Okazolab) позволяет проводить зрительную и слуховую стимуляцию любой сложности, автоматически регистрировать ответную реакцию животного и обеспечивать пищевое и/или питьевое подкрепление после верного ответа. Во время эксперимента обезьяна находится в передвижной клетке из прозрачного оргстекла с отверстием для передних конечностей. Расстояние между клеткой и сенсорным экраном – 20 см. Подробно экспериментальная установка описана в статье Ивановой и соавторов (Иванова и др., 2016).
Стимулы
Набор стимулов в задаче отсроченного сравнения с образцом включал 11 простых геометрических фигур (круг, треугольник, ромб, прямоугольник, флаг, пятиугольник, стрелка, сердце, эллипс, кольцо, крест), предъявляемых на сером фоне. Яркость фона составляла 63 Кд/м2. В зависимости от экспериментальной серии в качестве стимулов использовали либо черные изображения фигур, либо цветные. В задаче запоминания по цвету и форме каждой из 11 геометрических фигур случайным образом присваивался один из восьми цветов, равномерно распределенных по участку спектра видимого излучения (красный, оранжевый, зеленый, голубой, бирюзовый, фиолетовый, розовый, болотный). Для определения яркости цветов использовали cпектрорадиометр Jeti Specbos 1201 (JETI Technische Instrumente GmbH, Jena, Germany). После выравнивания цветов по значениям их яркости, измеренным в Кд/м2, была проведена процедура выравнивания их по воспринимаемой яркости (на основании субъективных отчетов экспериментаторов). Характеристики используемых в исследовании цветов приведены в табл. 1. В задаче запоминания объектов только по цвету обезьянам предъявляли одни и те же геометрические фигуры – круги, окрашенные в один из восьми цветов. В задаче запоминания по форме образцами были черные изображения фигур разной формы. Все фигуры были вписаны в квадрат со сторонами 9.9 угл. град. Хотя площадь фигур при этом различалась, мы выбрали именно такой способ выравнивания размеров изображений, поскольку наши наблюдения показывают, что животные в большей степени реагируют на различие в размерах по направлениям длина-ширина, чем на различия в площади стимулов. Кроме того, постэкспериментальный анализ ответов обезьян на фигуры разной формы и, соответственно, разной площади показал, что животные не отдавали предпочтение при выборе каким-либо фигурам (в том числе фигурам большей площади).
Таблица 1.
Характеристики цветов, используемых в эксперименте Table 1. Characteristics of the colors used in the study
| Название цвета | Яркость, Кд/м2 | Координаты в цветовом пространстве MKO-31, x; y |
|---|---|---|
| Бирюзовый | 10 | 0.294; 0.358 |
| Голубой | 11.8 | 0.229; 0.226 |
| Зеленый | 11.8 | 0.319; 0.482 |
| Фиолетовый | 4.5 | 0.271; 0.224 |
| Болотный | 6.2 | 0.372; 0.398 |
| Красный | 6.1 | 0.463; 0.338 |
| Розовый | 12.7 | 0.403; 0.350 |
| Оранжевый | 10.6 | 0.486; 0.380 |
Процедура
Подробно стимулы и процедура предъявления описаны в статье (Подвигина и др., 2021). Также в статье есть подробное описание процесса обучения макак выполнению данной задачи с одним и более образцами для запоминания. На рис. 1 схематично представлен ход одной пробы в задаче на запоминание трех образцов по форме и цвету. За секунду до начала каждой пробы животному подавали короткий звуковой сигнал, предупреждающий о начале предъявления фигур-образцов. Затем предъявляли фигуры-образцы. Время предъявления образцов составляло 1000 мс (t1). После исчезновения образцов экран оставался пустым на 1000 мс (время удержания информации в памяти, t2). Затем на экране появлялись две фигуры для выбора: одна из них присутствовала среди образцов, вторая – нет; альтернативная фигура отличалась от целевой как по цвету, так и по форме (когда в эксперименте использовали оба параметра). Положение верного ответа на экране (справа или слева) изменялось в каждой пробе в случайном порядке. За нажатие на верный ответ животное автоматически получало пищевое подкрепление. Фигуры для выбора оставались на экране до того момента, как обезьяна нажмет на экран. Если по каким-то причинам обезьяна игнорировала тест, фигуры исчезали через 2000 мс (t3). Затем цикл повторялся. Значение интервала между пробами случайным образом изменялось в диапазоне от 4000 до 5000 мс (t4). Созданная экспериментальная программа позволяет менять количество одновременно предъявляемых для запоминания образцов от одного до пяти.
Рис. 1.
Схема предъявления стимулов в задаче отсроченного сравнения с образцом, когда животному для удержания в памяти предъявляются три образца-фигуры разной формы и цвета. Пояснения в тексте. Fig. 1. The stimulus presentation pattern in the delayed matching-to-sample task when the three items of different shape and color are presented to an animal to memorize. See text for details.
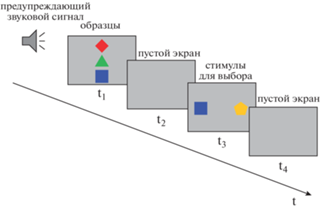
В данном исследовании животные выполняли задачу на удержание в рабочей памяти трех образцов. Исследование включало три серии экспериментов. В первой серии в качестве стимулов использовали цветные геометрические фигуры, животные должны были удержать в памяти три образца – различные фигуры разных цветов, – а затем спустя одну секунду выбрать из двух фигур ту, что присутствовала среди образцов. Вторая фигура отличалась от фигур-образцов и цветом, и формой. То есть эта серия предполагала удержание в памяти по двум признакам – цвету и (или) форме (“выбор по цвету и форме”). Во второй серии стимулами были цветные круги одинакового размера. Животные также должны были удержать в памяти три образца, в этот раз ориентируясь на их цвет (“выбор по цвету”). В третьей серии обезьяны удерживали в памяти форму стимулов – в качестве образцов использовали черные изображения геометрических фигур (также три фигуры; “выбор по форме”). Серии проводились в указанной последовательности, каждая серия длилась 10 дней. В один экспериментальный день каждое животное выполняло от 80 до 130 проб одной задачи.
Все животные прошли обучение задаче и тренировку с меньшим количеством образцов до начала выполнения первой, второй и третьей экспериментальных серий, чтобы к началу эксперимента у них сформировался условный рефлекс на каждый из типов стимулов – цветные фигуры, черно-белые фигуры и цветные круги.
В эксперименте регистрировали ответы животных (верный/неверный), время их ответов и пропуски. Анализировали процент верных ответов в каждой экспериментальной сессии (за один экспериментальный день).
Для статистической обработки результатов использовали двухфакторный ранговый дисперсионный анализ Фридмана для связанных выборок, ANOVA с повторными измерениями и t-критерий Стьюдента (одновыборочный и для парных выборок), анализ проводили с использованием программы IBM SPSS Statistics версия 28.0.
РЕЗУЛЬТАТЫ ИССЛЕДОВАНИЙ
Для того чтобы убедиться, что животные к началу эксперимента обучились задаче каждой из серий, и процент их верных ответов не увеличивался в ходе эксперимента, мы проанализировали, различаются ли достоверно результаты каждой обезьяны в разные экспериментальные дни в каждой из трех серий. Критерий Фридмана не показал значимых различий ни для одной экспериментальной серии (p > 0.1). Поэтому для дальнейшего анализа мы использовали результаты всех 10 экспериментальных дней для каждой серии. Во всех трех задачах (выбор по цвету, выбор по форме и выбор по цвету и форме) процент верных ответов всех макак (табл. 2) был достоверно выше 50% (p < 0.05, одновыборочный t-критерий).
Таблица 2.
Средние значения процента верных ответов каждой из обезьян в трех экспериментальных сериях. Погрешности – стандартная ошибка среднего Table 2. Mean percentage of the correct responses for each monkey in the three experimental sessions. The standard errors of mean are given
| Выбор по форме | Выбор по цвету | Выбор по цвету и форме | |
|---|---|---|---|
| Юпитер | 60.4 ± 0.9 | 67.0 ± 1.8 | 72.6 ± 1.4 |
| Юнт | 63.7 ± 2.0 | 65.8 ± 1.1 | 74.7 ± 1.7 |
| Лев | 63.3 ± 2.0 | 72.4 ± 1.2 | 74.3 ± 1.0 |
| Лиман | 55.9 ± 1.9 | 60.8 ± 1.8 | 67.5 ± 1.7 |
| Эдик | 56.6 ± 2.5 | 66.1 ± 1.4 | 64.4 ± 1.5 |
| Филин | 65.3 ± 2.6 | 68.5 ± 2.4 | 77.0 ± 1.1 |
Результаты ANOVA с повторными измерениями, полученные по данным всех шести обезьян, показали, что фактор “экспериментальная серия” (выбор по форме, выбор по цвету, выбор по цвету и форме) оказывает значимое влияние на процент правильных ответов, которые давали животные в каждой из трех серий (F = 61.217, p < 0.001). Мы попарно сравнили между собой результаты трех экспериментальных серий с помощью t-критерия для парных выборок. Cравнение средних значений процента верных ответов животных при решении задач на запоминание объектов по их форме и по цвету показало, что макаки-резусы хуже справляются с задачей отсроченного сопоставления с образцом при сопоставлении изображений по форме и лучше – по цвету (t = –5.604, p $ \ll $ 0.001). Также макаки лучше выполняют задачу сопоставления по двум признакам, чем отдельно по цвету (t = –5.174, p $ \ll $ 0.001) или по форме (t = –11.511, p $ \ll $ 0.001).
Чтобы выявить индивидуальные особенности животных – то, насколько обнаруженные предпочтения выражены у каждой обезьяны, – мы проанализировали и сравнили попарно результаты выполнения трех задач отдельно каждым животным.
Как видно из табл. 2 и рис. 2, все шесть животных давали в среднем меньше правильных ответов в задаче “выбор по форме” по сравнению с задачей “выбор по цвету”. Таблица 3 показывает, что у трех животных это различие достигало статистической значимости на индивидуальном уровне.
Рис. 2.
Процент верных ответов обезьян в задачах на запоминание трех образцов по цвету (“выбор по цвету”), форме (“выбор по форме”) и по этим двум признакам вместе (“выбор по цвету и форме”). ** – p < < 0.01, * – p < 0.05 (t-критерий для парных выборок). Результаты для каждой задачи получены по 10 экспериментальным дням (N = 10). Fig. 2. The percentage of the correct responses monkeys gave in the tasks of delayed matching by the color of the sample (“matching by colour”), by its shape (“matching by shape”) and by these two features (“matching by color and shape”). ** – p < 0.01, * – p < 0.05 (paired sample t-test).
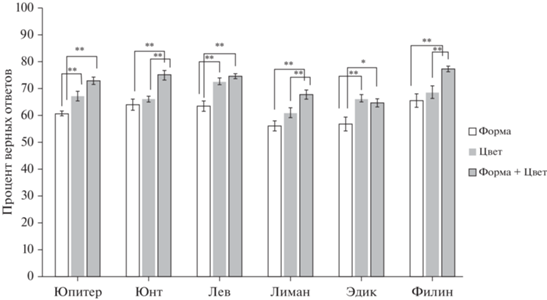
Таблица 3.
Результаты попарного сравнения результатов выполнения животными трех экспериментальных задач. ** – p < 0.01, * – p < 0.05 (t-критерий для парных выборок) Table 3. The pairwise comparison of the results of the animals performing the three experimental tasks. ** – p < 0.01, * – p < 0.05 (paired sample t-test)
| Животное | Выбор по форме в сравнении с выбором по цвету | Выбор по форме в сравнении с выбором по цвету и форме | Выбор по цвету в сравнении с выбором по цвету и форме | |||
|---|---|---|---|---|---|---|
| T | двухсторонняя значимость | T | двухсторонняя значимость | T | двухсторонняя значимость | |
| Юпитер | –4.121 | 0.003** | –7.283 | 0.000** | –2.090 | 0.066 |
| Юнт | –1.000 | 0.343 | –3.676 | 0.005** | –3.967 | 0.003** |
| Лев | –4.625 | 0.002** | –5.693 | 0.000** | –1.194 | 0.267 |
| Лиман | –2.073 | 0.068 | –6.768 | 0.000** | –3.771 | 0.004** |
| Эдик | –3.728 | 0.005** | –3.197 | 0.011* | 0.944 | 0.370 |
| Филин | –0.917 | 0.383 | –3.959 | 0.003** | –3.494 | 0.007** |
При выполнении задачи “выбор по цвету” пять из шести обезьян (кроме Эдика) давали в среднем меньше верных ответов по сравнению с задачей “выбор по цвету и форме”. Статистический анализ по каждому отдельному животному показал, что у Юнта, Лимана и Филина эти отличия были достоверны.
Среднее значение количества правильных ответов при выполнении задачи “выбор по форме” у всех макак было значимо ниже среднего числа верных ответов при выполнении задачи “выбор по цвету и форме” (табл. 3).
Таким образом, анализ индивидуальных различий результатов выполнения задачи отсроченного сопоставления с образцом по цвету, по форме и по обоим признакам показал, что средние значения числа верных ответов были больше для задачи сопоставления по цвету по сравнению с формой у всех обезьян, однако значимого уровня различия достигли только у трех особей. То же касается и результатов сопоставления по цвету по сравнению с условием, когда животные могли пользоваться двумя признаками для сопоставления: на индивидуальном уровне значимые различия успешности выполнения этих двух задач наблюдались у трех обезьян. Однако эти индивидуальные различия не отразились на общем результате анализа количества верных ответов, рассчитанных для группы из шести обезьян по каждой из трех экспериментальных серий, который показал значимые различия между всеми тремя сериями.
ОБСУЖДЕНИЕ РЕЗУЛЬТАТОВ
Результаты сравнения успешности выполнения задачи отсроченного сопоставления с образцом всеми шестью макаками в трех экспериментальных сериях продемонстрировали, что макаки-резусы лучше выполняют эту задачу, когда удерживаемым в памяти признаком объекта является цвет (по сравнению с запоминанием по форме). Этот результат совпадает с данными, полученными Allen и соавторами (Allen et al., 2006) в схожих экспериментальных условиях на людях. В этом исследовании в одном из экспериментов испытуемым для запоминания предъявляли четыре геометрические фигуры, отличающиеся либо по форме, либо по цвету, а спустя 900 мс показывали одну фигуру, либо присутствовавшую среди образцов, либо нет. Точность выполнения задачи, рассчитанная по соотношению верных ответов и ложных выборов, была выше для одинаковых цветных фигур, чем для черно-белых изображений разных геометрических форм. Сами авторы не предлагают никакого объяснения данному результату, кроме того, что цвет является более простым признаком, чем форма (Allen et al., 2006). В работе (Fehring et al., 2022) в похожей задаче – запоминание одной фигуры по цвету либо по форме – макаки-резусы продемонстрировали противоположный результат: давали больше верных ответов при отставленном сопоставлении по форме объекта по сравнению с цветом. В этом же исследовании ту же задачу выполняли люди, показав, как и у Allen и соавторов, лучший результат в случае сопоставления по цвету. Авторы пишут, что эти противоположные результаты у людей и макак-резусов нельзя объяснить различиями процессов восприятия и детекции формы и цвета изображений, поскольку в целом ряде исследований было показано, что эти процессы схожи у двух видов (например, Rajalingham et al., 2015). Исследователи предполагают, что результат, полученный в их работе, можно интерпретировать в терминах фокуса внимания, который у макак направлен на более локальные черты объектов (форма), а у людей – на более глобальные признаки (цвет) (Fehring et al., 2022). В то же время макаки не демонстрируют предпочтения в отношении одного из этих признаков в задачах на зрительный поиск, не требующих привлечения ресурсов памяти (Bichot et al., 2005). А при выполнении задач на обучение различению (discrimination learning task) макаки-резусы демонстрировали обратную тенденцию: их результаты ухудшались при переходе с задачи, в которой релевантным признаком был цвет объектов, на задачу, где таким признаком была форма, но не наоборот (Baxter, Gaffan, 2007).
В нашем исследовании мы усложнили задачу, по сравнению с (Fehring et al., 2022): животным надо было удерживать в памяти сразу три объекта, что максимально приближено к условиям эксперимента Allen и коллег. Если попытаться объяснить противоречивые результаты нашей работы и работы Fehring и соавторов, привлекая логику последних, худший результат при удержании в памяти формы объектов в нашем случае может быть следствием фокуса внимания на локальных признаках объектов при их запоминании, что в ситуации запоминания большого числа объектов может приводить к ухудшению запоминания, а стратегия фокусировки на более глобальных признаках объектов, таких как цвет, напротив, оказывается более продуктивной.
В экспериментальной серии, в которой животные располагали обоими признаками для запоминания фигур, успешность выполнения задачи была максимальна. Необходимо, правда, отметить, что задаче выбора по двум признакам – цвету и форме – предшествовал немного более длительный период тренировки, однако результативность ее выполнения существенно не изменилась за время тренировки. Поскольку задача не предполагала одновременное удержание в памяти обоих признаков, возможно, частичная потеря информации, например, о цвете, могла быть скомпенсирована информацией о форме. Хотя в литературе есть свидетельства того, что объекты, обладающие этими двумя признаками, воспринимаются и удерживаются в памяти как целое: признаки автоматически связываются в единый образ (Luria, Vogel, 2011).
ЗАКЛЮЧЕНИЕ
В данном исследовании мы показали схожесть результатов выполнения задачи отсроченного сопоставления с образцом макаками-резусами и людьми, используя экспериментальную парадигму, аналогичную (Allen et al., 2006). Как и люди в этом исследовании, макаки-резусы в нашей работе в среднем более успешно справлялись с задачей удержания в памяти цвета зрительных объектов по сравнению с их формой. Вероятно, усложнение задачи (нагрузка на рабочую память) у макак приводит к смещению фокуса внимания с локальных (форма) на глобальные (цвет) признаки объектов, обеспечивая лучшее их запоминание. Лучше всего животные выполняли задачу при наличии двух признаков для сопоставления объектов с образцом – цвета и формы, – вероятно, потому, что частичная потеря информации, например, о цвете, в условиях нашего исследования компенсировалась информацией о форме.
Список литературы
Бондарь И.В., Васильева Л.Н., Терещенко Л.В., Буйневич А.В., Латанов А.В. Обучение макак-резусов сложным когнитивным задачам. Журн. высшей нервной деятельности им. ИП Павлова. 2018. 68 (4): 459–476. https://doi.org/10.1134/S0044467718040044
Иванова Л.Е., Коржанова З.Н., Варовин И.А., Пронин С.В., Хараузов А.К., Шелепин Ю.Е. Изучение взаимодействия макак-резусов с тактильными мониторами при наблюдении низкочастотных тестовых изображений. Российский физиологический журн. им. И.М. Сеченова. 2016. 102 (8): 931–939.
Подвигина Д.Н., Иванова Л.Е., Хараузов А.К. Обучение макак-резусов задаче отсроченного сравнения с образцом на сенсорном мониторе. Интегративная физиология. 2021. 2 (4): 443–454. https://doi.org/10.33910/2687-1270-2021-2-4-443-454
Allen R.J., Baddeley A.D., Hitch G.J. Is the binding of visual features in working memory resource-demanding? J. Experimental Psychology: General. 2006. 135 (2): 298–313. https://doi.org/10.1037/0096-3445.135.2.298
Baxter M.G., Gaffan D. Asymmetry of attentional set in rhesus monkeys learning colour and shape discriminations. Quarterly J. Experimental Psychology. 2007. 60 (1): 1–8. https://doi.org/10.1080/17470210600971485
Bichot N.P., Rossi A.F., Desimone R. Parallel and serial neural mechanisms for visual search in macaque area V4. Science. 2005. 308 (5721): 529–534. https://doi.org/10.1126/science.1109676
Christophel T.B., Klink P.C., Spitzer B., Roelfsema P.R., Haynes J.D. The distributed nature of working memory. Trends in cognitive sciences. 2017. 21 (2): 111–124. https://doi.org/10.1016/j.tics.2016.12.007
Ellefson M.R., Shapiro L.R., Chater N. Asymmetrical switch costs in children. Cognitive Development. 2006. 21 (2): 108–130. https://doi.org/10.1016/j.cogdev.2006.01.002
Fehring D.J., Pascoe A.J., Haque Z.Z., Samandra R., Yokoo S., Abe H., Rosa M.G.P., Tanaka K., Yamamori T., Mansouri F.A. Dimension of visual information interacts with working memory in monkeys and humans. Scientific Reports. 2022. 12 (1): 1–15. https://doi.org/10.1038/s41598-022-09367-7
Fuster J.M. Single-unit studies of the prefrontal cortex. The frontal lobes revisited. Psychology Press. 2019. 109–120.
Ghasemian S., Vardanjani M.M., Sheibani V., Mansouri F.A. Dimensional bias and adaptive adjustments in inhibitory control of monkeys. Animal Cognition. 2021. 24 (4): 815–828. https://doi.org/10.1007/s10071-021-01483-7
Hitch G.J., Allen R.J., Baddeley A.D. Attention and binding in visual working memory: Two forms of attention and two kinds of buffer storage. Attention, Perception, & Psychophysics. 2020. 82: 280–293. https://doi.org/10.3758/s13414-019-01837-x
Kosilo M., Martinovic J., Haenschel C. Luminance contrast drives interactions between perception and working memory. J. Cognitive Neuroscience. 2022. 34 (7): 1128–114. https://doi.org/10.1162/jocn_a_01852
Livingstone M.S., Hubel D.H. Psychophysical evidence for separate channels for the perception of form, color, movement, and depth. J. Neuroscience. 1987. 7 (11): 3416–3468. https://doi.org/10.1523/JNEUROSCI.07-11-03-416.1987
Luria R., Vogel E.K. Shape and color conjunction stimuli are represented as bound objects in visual working memory. Neuropsychologia. 2011. 49 (6): 1632–1639.
Mansouri F.A., Buckley M.J., Fehring D.J., Tanaka K. The role of primate prefrontal cortex in bias and shift between visual dimensions. Cerebral Cortex. 2020. 30 (1): 85–99. https://doi.org/10.1016/j.neuropsychologia.2010.11.031
Prevor M.B., Diamond A. Color–object interference in young children: A Stroop effect in children 31/2–61/2 years old. Cognitive development. 2005. 20 (2): 256–278. https://doi.org/10.1016/j.cogdev.2005.04.001
Rajalingham R., Schmidt K., DiCarlo J.J. Comparison of object recognition behavior in human and monkey. J. Neuroscience. 2015. 35 (35): 12127–12136. https://doi.org/10.1523/JNEUROSCI.0573-15.2015
Viviani P., Aymoz C. Colour, form, and movement are not perceived simultaneously. Vision Research. 2001. 41 (22): 2909–2918. https://doi.org/10.1016/S0042-6989(01)00160-2
Дополнительные материалы отсутствуют.
Инструменты
Журнал высшей нервной деятельности им. И.П. Павлова


 Пн.-пт.: 10.00-19.00