

Российские нанотехнологии, 2024, T. 19, № 3, стр. 291-294
ВЛИЯНИЕ РАЗМЕРОВ ЯЧЕЙКИ МОДЕЛИРОВАНИЯ НА СТАБИЛЬНОСТЬ ДИМЕРОВ И ГЕКСАМЕРОВ ЛИЗОЦИМА В КРИСТАЛЛИЗАЦИОННОМ РАСТВОРЕ
Ю. В. Кордонская 1, *, И. Ф. Гарипов 1, В. И. Тимофеев 1, М. А. Марченкова 1, Ю. А. Дьякова 2, Ю. В. Писаревский 1, М. В. Ковальчук 1, 2
1 Институт кристаллографии им. А.В. Шубникова Курчатовского комплекса кристаллографии и фотоники НИЦ “Курчатовский институт”
Москва, Россия
2 Национальный исследовательский центр “Курчатовский институт”
Москва, Россия
* E-mail: yukord@mail.ru
Поступила в редакцию 11.01.2024
После доработки 11.01.2024
Принята к публикации 21.02.2024
Аннотация
В ходе молекулярно-динамического исследования изучено влияние размера ячейки моделирования на стабильность димеров и гексамеров лизоцима, образующихся в его растворе перед кристаллизацией. Для этого было смоделировано поведение данных олигомеров в ячейках разного размера и оценена их стабильность. Результаты показали, что увеличение ячейки моделирования не приводит к уточнению результатов моделирования. Стабильность димера слабо зависела от размеров ячейки, при этом гексамеры распались во всех рассматриваемых ячейках, что согласуется с данными малоуглового рассеяния. Определено минимальное расстояние между белком и гранью ячейки (1 нм), при котором результаты моделирования поведения олигомеров в кристаллизационных растворах являются достоверными.
ВВЕДЕНИЕ
Изучение свойств белковых кристаллов и процессов кристаллизации белков является актуальной темой для разработки методов поиска условий кристаллизации, а также исследования различий структур белковых молекул в растворе и в кристаллическом состоянии.
Одним из широко используемых методов исследования свойств кристаллов белков и изучения процесса белковой кристаллизации является молекулярная динамика (МД) [1–5]. Например, МД-моделирование использовалось для воспроизведения процесса формирования белковых кристаллов [6]. Несколько исследований по кристаллизации белков с использованием методов вычислительной биологии были сосредоточены на анализе подвижности атомов молекул белка в различных условиях [7, 8]. В [7] с целью изучения стабильности кристаллов белка с помощью вычислительных методов было проанализировано влияние зарядов аминокислотных остатков на поверхности белка и концентрации ионов в кристаллизационном растворе. Кроме того, метод МД использовался для исследования свойств белковых олигомеров, образующихся в растворах перед кристаллизацией [8, 9].
Согласно [10–12] растворы некоторых белков перед их кристаллизацией содержат белковые олигомеры. Их структуры аналогичны тем, что встречаются в кристаллах белка. С помощью метода малоуглового рентгеновского рассеяния (МУРР) было установлено, что перед кристаллизацией лизоцима (в тетрагональной сингонии) в его растворе образуются димеры и октамеры, при этом тетрамеры и гексамеры отсутствовали [10]. Затем с помощью МД было определено, какой именно тип октамера содержит кристаллизационный раствор лизоцима [9].
В [13] показано, что размер ячейки моделирования влияет на стабильность тетрамерной молекулы гемоглобина человека в растворе. Однако влияние размеров ячейки моделирования на стабильность белковых олигомеров, образующихся в растворе при кристаллизации белка, во время МД-расчетов остается неизвестным. Чтобы определить, в какой степени размер ячейки влияет на стабильность белковых олигомеров, в настоящей работе провели МД-моделирование димера и гексамера лизоцима (являющихся фрагментами тетрагональной кристаллической структуры лизоцима) в ячейках разного размера.
МЕТОДЫ ИССЛЕДОВАНИЯ
Все расчеты были выполнены с использованием программы AMBER версии 2019 [14]. МД-моделирование проводили в силовом поле Amber ff19SB [15], содержащем уточненные торсионные потенциалы для некоторых групп атомов и специфичные параметры аминокислот. Каждый олигомер помещали в центр кубической ячейки моделирования. Ячейки моделирования задавали таким образом, чтобы минимальное расстояние между их гранями и атомами лизоцима составляло 1, 1.5, 2, 2.5 и 3 нм. Каждая ячейка была заполнена четырехточечной (состоящей из двух атомов водорода, одного атома кислорода и одного мнимого атома, имитирующего неподеленную электронную пару атома кислорода) моделью воды, разработанной для использования методов суммирования по Эвальду (TIP4P-Ew [16]). Поскольку для кристаллизации лизоцима в его раствор добавляют соль NaCl (так называемый осадитель), в ячейки моделирования вносили ионы Na+ и Cl– с той же концентрацией (0.4 М). Общий заряд каждой ячейки нейтрализовали путем добавления незначительного количества ионов для применения алгоритма PME при расчете дальнодействующих электростатических взаимодействий. Перед каждым запуском продуктивных МД-вычислений энергию систем минимизировали методом наискорейшего спуска (1000 шагов) и сопряженного градиента (2000). Затем каждую ячейку с димером термостатировали в течение 100 пс с помощью термостата Ланжевена [17] с частотой коллизий γ = 2 пс–1 в течение 100 пс в NVT-ансамбле. Для моделирования гексамера использовали термостат слабой связи [18] с постоянной времени τt = 1 пс в течение 500 пс в NVT-ансамбле. Затем димеры и гексамеры баростатировали с использованием баростата Монте-Карло с τp = = 1 пс [19] в NPT-ансамбле в течение 100 и 500 пс соответственно.
Продуктивное МД-моделирование олигомеров проводили в NPT-ансамбле с помощью баростата Монте-Карло с τp = 1 пс и термостата Ланжевена с γ = 3 пс–1 (для димеров) или алгоритма слабой связи с τt = 1 пс (для гексамеров). Интегрирование уравнений движения проводили с шагом 2 фс, моделирование – с использованием трехмерных периодических граничных условий. Нековалентные взаимодействия учитывали только для атомов, расположенных в радиусе 0.8 нм. Дальнодействующие электростатические взаимодействия обрабатывали методом суммирования гладкой сетки частиц по Эвальду (PME) [20]. Длительность каждой посчитанной траектории составила 1 мкс.
Для анализа результатов использовали команду cpptraj из пакета Ambertool [21]. Затем были рассчитаны RMSF (среднеквадратичные флуктуации), RMSD (среднеквадратичные отклонения) и Rg (радиус гирации) атомов Cα путем запуска команд rmsf, rmsd и radgyr соответственно.
РЕЗУЛЬТАТЫ И ИХ ОБСУЖДЕНИЕ
Из рис. 1 видно, что димеры и гексамеры в целом стремятся к стабилизации с ростом размеров ячейки. Как и следовало ожидать, абсолютные значения RMSF для гексамеров выше (на 2 порядка), чем для димеров.
Рис. 1.
Значения RMSF димеров (1) и гексамеров (2), усредненные по всем атомам Cα в зависимости от расстояния между гранью ячейки и атомами белка.
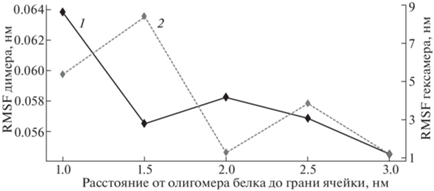
Отклонения атомов димера практически не зависят от размеров ячейки, так как усредненные значения RMSF его атомов варьируются в пределах 0.1 Å. Напротив, разница между максимальным и минимальным значениями RMSF гексамера приблизительно составляет 8 Å.
Рисунок 2 демонстрирует, что димер при увеличении ячейки стремится стать компактнее. Однако в целом расстояние между белком и гранью ячейки существенно не влияет на объем димера, поскольку величины Rg варьируются незначительно (в диапазоне 0.5% от абсолютного значения Rg). Учитывая, что радиус гирации гексамера, выделенного из кристаллической структуры лизоцима, равен 2.7 нм, его компактность наиболее близка к исходной при расстояниях (между белком и ячейкой) 2, 2.5 и 3 нм. Для наименьших (1 и 1.5 нм) ячеек отклонения объема гексамера от первоначального весьма существенны.
Рис. 2.
Радиус инерции димеров (1) и гексамеров (2), усредненный за все моделируемое время (1 мкс) в зависимости от расстояния между гранью ячейки и атомами белка.
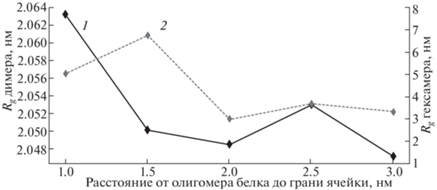
По данным МУРР [10] в кристаллизационном растворе лизоцима образуются димеры белка, а его гексамеры отсутствуют. Таким образом, результаты моделирования димеров и гексамеров согласуются с экспериментальными [10] независимо от размеров ячейки, так как димеры в целом стабильны (хотя и незначительно более гибкие в небольших ячейках), а гексамеры распадаются (как показал визуальный осмотр траекторий гексамеров) в ходе 1 мкс динамики во всех рассматриваемых ячейках. Однако МД показала, что наиболее заметные трансформации структуры гексамера происходят, когда расстояния между белком и гранью ячейки составляют 1 и 1.5 нм (рис. 1–2). Следовательно, моделирование олигомеров белков в относительно маленьких ячейках может привести к более очевидным результатам и более быстрому прогнозированию нестабильности олигомеров.
Данное явление можно объяснить тем, что небольшие ячейки моделирования могут лучше воспроизводить реальные кристаллизационные условия белковых растворов, поскольку реальные олигомеры находятся в окружении не только одного раствора и ионов осадителя, но и других белковых молекул. Несмотря на то что начальная концентрация лизоцима в капле с кристаллизационным раствором невысокая (40 мг/мл, [10]), она постепенно увеличивается из-за испарения воды. Кроме того, молекулы в растворе находятся в постоянном движении, что увеличивает вероятность столкновения и взаимодействия олигомеров с другими молекулами белка. Поскольку в работе применяли периодические граничные условия, в относительно маленьких ячейках олигомеры “чувствуют” свои виртуальные копии из соседних ячеек, что точнее моделирует реальное окружение олигомеров в кристаллизационном растворе. При этом чем меньше размер ячейки моделирования, тем меньше вычислительных ресурсов (включая время) требуется для проведения расчетов методом МД. Для лизоцима выявлено, что для адекватного моделирования его олигомеров в кристаллизационном растворе минимальное расстояние между атомами белка и гранью ячейки должно составлять 1 нм.
ЗАКЛЮЧЕНИЕ
С помощью метода молекулярной динамики определены траектории движения димера и гексамера лизоцима в кристаллизационных растворах (с осадителем NaCl) в ячейках моделирования разного размера, в результате чего была выявлена зависимость стабильности димера и гексамера лизоцима от размера ячейки. Таким образом, размеры ячейки на поведение димера лизоцима влияют несущественно. Показано, что гексамеры лизоцима распадаются на олигомеры меньшего порядка независимо от размеров ячейки. Установлено, что увеличение размеров ячейки при МД-моделировании белков олигомеров в кристаллизационных растворах не приводит к более точным результатам (а возможно, даже немного ухудшает их качество).
Исследование выполнено при финансовой поддержке Министерства науки и высшего образования (грант № 075-15-2021-1363, договор № 208 ЭП), а также в рамках выполнения государственного задания НИЦ “Курчатовский институт”.
Работа выполнена с использованием оборудования центра коллективного пользования “Комплекс моделирования и обработки данных исследовательских установок мега-класса” НИЦ “Курчатовский институт”, http://ckp.nrcki.ru/.
Список литературы
Meinhold L., Smith J.C. // Proteins: Structure, Function, and Bioinformatics. 2007. V. 66. № 4. P. 941. https://doi.org/10.1002/PROT.21246
Meinhold L., Merzel F., Smith J.C. // Phys. Rev. Lett. 2007. V. 99. № 13. P. 138101. https://doi.org/10.1103/PHYSREVLETT.99.138101/FIGURES/4/MEDIUM
Cerutti D.S., Freddolino P.L., Duke R.E., Case D.A. // J. Phys. Chem. B. 2010. V. 114. № 40. P. 12811. https://doi.org/10.1021/JP105813J
Cerutti D.S., Le Trong I., Stenkamp R.E., Lybrand T.P. // Biochem. 2008. V. 47. № 46. P. 12065. https://doi.org/10.1021/BI800894U/SUPPL_FILE/ BI800894U_SI_001.PDF
Schnieders M.J., Fenn T.D., Pande V.S., Brunger A.T. // Acta Cryst. D. 2009. V. 65. № 9. P. 952. https://doi.org/10.1107/S0907444909022707/DZ5164SUP2.PDF
Taudt A., Arnold A., Pleiss J. // Phys. Rev. E. 2015. V. 91. № 3. P. 033311. https://doi.org/10.1103/PHYSREVE.91.033311/FIGURES/16/MEDIUM
Kuzmanic A., Zagrovic B. // Biophys J. 2014. V. 106. № 3. P. 677. https://doi.org/10.1016/J.BPJ.2013.12.022
Kordonskaya Y.V., Marchenkova M.A., Timofeev V.I. et al. // J. Biomol. Struct. Dyn. 2021. V. 39. № 18. P. 7223. https://doi.org/10.1080/07391102.2020.1803138
Kordonskaya Y.V., Timofeev V.I., Dyakova Y.A. et al. // Crystallography Reports. 2018. V. 63. № 6. P. 947. https://doi.org/10.1134/S1063774518060196
Kovalchuk M.V., Blagov A.E., Dyakova Y.A. et al. // Cryst. Growth Des. 2016. V. 16. № 4. P. 1792. https://doi.org/10.1021/acs.cgd.5b01662
Marchenkova M.A., Volkov V.V., Blagov A.E. et al. // Crystallography Reports. 2016. V. 61. № 1. P. 5.https://doi.org/10.1134/S1063774516010144
Boikova A.S., D’yakova Y.A., Il’ina K.B. et al. // Crystallography Reports. 2017. V. 62. № 6. P. 876. https://doi.org/10.1134/S1063774517060074
El Hage K., Hédin F., Gupta P.K. et al. // Elife. 2018. V. 7. P. e35560. https://doi.org/10.7554/ELIFE.35560
Case D.A., Cheatham T.E., Darden T. et al. // J. Comput. Chem. 2005. V. 26. P. 1668. https://doi.org/10.1002/jcc.20290
Tian C., Kasavajhala K., Belfon K.A.A. et al. // J. Chem. Theory Comput. 2020. V. 16. № 1. P. 528. https://doi.org/10.1021/ACS.JCTC.9B00591/SUPPL_FILE/CT9B00591_SI_002.ZIP
Horn H.W., Swope W.C., Pitera J.W. et al. // J. Chem. Phys. 2004. V. 120. № 20. P. 9665. https://doi.org/10.1063/1.1683075
Pastor R.W., Brooks B.R., Szabo A. // Mol. Phys. 1988. V. 65. № 6. P. 1409. https://doi.org/10.1080/00268978800101881
Berendsen H.J.C., Postma J.P.M., Van Gunsteren W.F. et al. // J. Chem. Phys. 1984. V. 81. № 8. P. 3684. https://doi.org/10.1063/1.448118
Åqvist J., Wennerström P., Nervall M. et al. // Chem. Phys. Lett. 2004. V. 384. № 4. P. 288. https://doi.org/10.1016/J.CPLETT.2003.12.039
Essmann U., Perera L., Berkowitz M.L. et al. // J. Chem. Phys. 1995. V. 103. P. 8577. https://doi.org/10.1063/1.470117
Roe D.R., Cheatham T.E. // J. Chem. Theory Comput. 2013. V. 9. № 7. P. 3084. https://doi.org/10.1021/CT400341P/SUPPL_FILE/ CT400341P_SI_001.PDF
Дополнительные материалы отсутствуют.
Инструменты
Российские нанотехнологии


 Пн.-пт.: 10.00-19.00