

Российские нанотехнологии, 2024, T. 19, № 6, стр. 781-795
Анализ аллельной структуры генов фотопериодизма E1–E4 в коллекции сои и ее влияния на сроки и продолжительность цветения в условиях омской области
П. Ю. Крупин 1, *, Л. В. Омельянюк 2, М. А. Самарина 1, А. В. Архипов 1, А. М. Асанов 2, Д. С. Ульянов 1, С. А. Бурсаков 1, Н. В. Злобнова 1, Г. И. Карлов 1, М. Е. Мухордова 2, Ю. И. Ященко 2, М. Г. Дивашук 1, 3, 4, 5
1 Всероссийский научно-исследовательский институт сельскохозяйственной биотехнологии
Москва, Россия
2 Омский аграрный научный центр
Омск, Россия
3 Научно-исследовательский центр “Курчатовский институт”
Москва, Россия
4 Федеральный исследовательский центр “Немчиновка”
Москва, Россия
5 Национальный медицинский исследовательский центр терапии и профилактической медицины
Министерства здравоохранения Российской Федерации
Москва, Россия
* E-mail: pavelkroupin1985@gmail.com
Поступила в редакцию 30.08.2024
После доработки 12.09.2024
Принята к публикации 12.09.2024
Аннотация
Соя – стратегически важная сельскохозяйственная культура, источник растительного жира и белка, продукты переработки которой используются в продовольственной, животноводческой и других отраслях промышленности. Расширение производства сои в России требует создания сортов, адаптированных под агроклиматические условия северных широт, в том числе Западной Сибири, характеризующихся относительно коротким вегетационным периодом и длинным световым днем. Для эффективного создания адаптивных раннецветущих и скороспелых сортов необходимо оценить влияние генов E1, E2, E3 и E4, детерминирующих фотопериодическую реакцию сои, на сроки развития растений в местных условиях. Проанализированы 102 образца из коллекции Омского аграрного научного центра, включающей в себя оригинальные сорта самого научного центра, сорта других отечественных селекционных центров, а также иностранные сорта и селекционные образцы (Польша, Швеция, Беларусь, Украина, Канада и другие). Данные о сроках цветения получены в результате полевого опыта в условиях Омской области на протяжении 2021–2023 гг. Генотипирование осуществлялось как с помощью классических маркеров на основе ПЦР, так и маркеров нового поколения на основе конкурентной аллель-специфичной ПЦР. Установлено, что доминирующими в коллекции являются рецессивные аллели локусов E, формирующие фотопериодически нейтральный фенотип (e1–as, e1–fs, e2–ns, e3–tr, e3–fs, e4–kes, e4–kes+e4–SORE–1). Установлено, что наибольшее влияние на дату наступления полного цветения оказывают локусы E2 и E4, а на дату окончания цветения и продолжительность цветения – локус E3. Полученные данные могут быть использованы в маркер-опосредованной селекции при создании раннецветущих сортов сибирского экотипа.
ВВЕДЕНИЕ
Соя является важной белково-масличной культурой во всем мире и наиболее популярной культурой среди бобовых [1]. В состав зерна сои входят полноценный по аминокислотному составу белок, высококачественные растительные масла, лецитин, углеводы, минеральные соли и витамины. Соевый белок в основном водорастворим и усваивается в организме животных и человека лучше, чем белок зерновых [2]. Бобовые играют важнейшую роль в сельском хозяйстве, способствуя поддержанию азотного баланса агроценозов [3].
Спрос на сою в России, в том числе за счет развития животноводства, за последние несколько лет существенно вырос: посевные площади сои в хозяйствах всех категорий в 2024 г. выросли в 1.6 раза по сравнению с 2017 г. и достигли 4294 тыс. га, а валовый сбор за тот же период увеличился в 1.9 раза и составил 6.8 млн. т в чистом весе [4].
Длительное время лидирующим регионом по возделыванию сои в нашей стране оставался Дальний Восток. В настоящее время происходит расширение площадей, занятых под сою, за счет продвижения сои в более северные регионы, в том числе по логистическим соображениям. Одним из перспективных регионов для успешного выращивания сои является зона Западной Сибири, в частности лесостепная и степная зоны Омской области в силу высокого агроклиматического потенциала [5]. Так, доля Дальневосточного федерального округа (ДФО) в валовом производстве соевых бобов снизилась с 54% в 2017 г. до 28% в 2024 г., а доля Сибирского федерального округа (СФО) за этот же период возросла с 3 до 7%; доля валового производства соевых бобов ДФО уменьшилась с 51 до 30%, а СФО возросла с 3 до 5%. В Омской области в период с 2017 по 2024 г. посевные площади сои колебались от 3.7 до 11.2 тыс. га при максимальной урожайности 9.3 ц/га в 2023 г. при средней урожайности в СФО 16 ц/га [4].
Для Западно-Сибирской равнины характерен суровый, достаточно континентальный климат. Распределение осадков происходит неравномерно. Часты поздние весенние заморозки. Летом в ясные, солнечные дни температура поднимается до +30...+35°C. В первой половине лета нередким явлением бывают суховеи, опаляющие растения и вызывающие сильное иссушение почвы. Таким образом, расширение производства сои в Западной Сибири происходит благодаря разработке технологий и созданию сортов сибирского экотипа, адаптированных к местным условиям. Продолжительность вегетационного периода, сроки наступления цветения и созревания имеют решающее значение для формирования урожая в Западной Сибири [6]. Оптимальный вегетационный период сои в Западно-Сибирском регионе составляет 90–110 дней, при этом важно сохранить ее высокую урожайность [7]. Флагманом селекции сортов сои сибирского экотипа выступает Омский Аграрно-научный центр (АНЦ). За 60 лет его работы создан уникальный генофонд сибирской сои, ряд сортов включен в Государственный реестр селекционных достижений. Эти сорта отличаются скороспелостью, пригодностью для механизированной уборки, устойчивостью к низким температурам и высокой продуктивностью [8, 9].
Соя как растение короткого дня увеличивает свой вегетационный период при продвижении с юга на север. Цветение сои контролируется множеством генов, среди которых большинство исследователей выделяет 12 локусов – Е1–Е11 и J. Локусы E1–E4 имеют решающее значение для выращивания сои, влияя на продолжительность фаз от прорастания до цветения/зрелости, обеспечивая адаптацию к различным широтам и определяя чувствительность к фотопериоду. Низкая чувствительность к фотопериоду, приводящая к раннему цветению и зрелости, связана с рецессивными, обычно нефункциональными аллелями генов E1–E4 [10]. E1 является специфичным для бобовых фактором транскрипции с доменом B3, выявлено несколько аллельных вариантов E1, среди которых наиболее распространенными являются рецессивные нефункциональные аллели e1–nl и e1–fs, содержащие делеции, и полуфункциональный аллель e1–as, характеризующийся однонуклеотидной миссенс-заменой. Ген E2 является ортологом GIGANTEA из Arabidopsis, а рецессивный аллель e2–ns кодирует укороченный белок из-за нонсенс-мутации, приводящей к стоп-кодону. Гены E3 и E4 кодируют изоформы белков-фоторецепторов фитохрома А – GmPhyA3 и GmPhyA2. Рецессивные аллели e3–ns, e3–fs, e3–tr возникли в результате нонсенс-мутации, сдвига рамки считывания и крупной делеции соответственно [11, 12]. Рецессивные аллели e4–kes и e4–par образовались в результате сдвига рамки считывания из-за однонуклеотидной делеции, а e4–SORE – из-за крупной инсерции [11, 13].
Для повышения эффективности селекции широкое применение получил маркер-опосредованный отбор [14]. Определение генотипов образцов и понимание фенотипического проявления различных аллелей генов чувствительности к фотопериоду позволят определить наиболее подходящие к местным условиям комбинации аллелей, повышающие адаптивность растений сои и способствующие раннему цветению в условиях Сибири [15]. Цель исследования заключалась в анализе аллельной структуры коллекции образцов сои, собранной в Омском АНЦ, по генам E1–E4 и поиске ассоциаций их аллельного состояния с датой полного цветения, датой окончания цветения и продолжительностью цветения.
МЕТОДЫ
Растительный материал. Значительная часть изучаемой коллекции из 102 образцов представляет селекционные центры Российской Федерации, такие как ФГБНУ Омский АНЦ (12 образцов), ФГБНУ ФНЦ ВНИИ сои (7 образцов), ФГБНУ ФАНЦ Юго-Востока (7 образцов), компании СоКо и Русская генетика и другие селекционные центры (всего 46 образцов). Представлены образцы из Польши (12 образцов), Канады (11), Беларуси (8), Украины (7), Швеции (7) и других стран; большая часть коллекции представляет собой коммерческие сорта, имеются также селекционные номера (табл. 1).
Таблица 1.
Характеристика исследуемой коллекции сои
| № | Образец | Оригинатор | Страна, город | № | Образец | Оригинатор | Страна, город |
|---|---|---|---|---|---|---|---|
| 1 | 1321 | Швеция | 52 | Дина | ФГБНУ Омский АНЦ | Россия, Омск | |
| 2 | 1339 | Швеция | 53 | Диона | Украина | ||
| 3 | 1342 | Швеция | 54 | Дока | Компания СОКО | Россия, Краснодар | |
| 4 | 1218-4-4 | Швеция | 55 | Заряница | ФГБНУ Омский АНЦ | Россия, Омск | |
| 5 | 738-4 | Швеция | 56 | Золотистая | ФГБНУ Омский АНЦ | Россия, Омск | |
| 6 | 766-2 | Швеция | 57 | Зуша | ФГБНУ ФНЦ ЗБК | Россия, Орел | |
| 7 | Aldana | Польша | 58 | Иркутск 15 | ФГБНУ Омский АНЦ | Россия, Омск | |
| 8 | Arctic | Польша | 59 | Киото | Канада | ||
| 9 | Baron | Чехия | 60 | Кофу | Канада | ||
| 10 | Fiskeby V | Швеция | 61 | Лариса | Сербия | ||
| 11 | Gai | Польша | 62 | Лидер 1 | ООО АСТ | Россия, Курск | |
| 12 | Gokuwase Hayabusa Edamame | Япония | 63 | Лидия | ФГБНУ ФНЦ ВНИИ сои | Россия, Благовещенск | |
| 13 | Jutro | Польша | 64 | Максус | Канада | ||
| 14 | LMF | Польша | 65 | Мезенка | ФГБНУ ФНЦ ЗБК | Россия, Орел | |
| 15 | Maple Donovan | Канада | 66 | Милл Риф | Компания Русская генетика | Россия, Краснодар | |
| 16 | Maple Glen | Канада | 67 | Миляуша | ФГБНУ Омский АНЦ, ФИЦ КазНЦ РАН | Россия, Омск и Казань | |
| 17 | Maple Ridge | Канада | 68 | Надежда | ФГБНУ ФАНЦА | Россия, Барнаул | |
| 18 | Milvus | Польша | 69 | Нива 70 | ФГБНУ ФАНЦА | Россия, Барнаул | |
| 19 | MON 21 | США | 70 | Нордик 3 | Польша | ||
| 20 | Nawiko | Польша | 71 | Нордик 5 | Польша | ||
| 21 | Neidou 4 | Китай | 72 | Омская 4 | ФГБНУ Омский АНЦ | Россия, Омск | |
| 22 | OAC Vision | Канада | 73 | Оресса | Беларусь | ||
| 23 | Ogemaw | США | 74 | Осмонь | ФГБНУ ФНЦ ЗБК | Россия, Орел | |
| 24 | Optimus | Канада | 75 | Отбор ДТМ | ФГБНУ ФНЦ ВНИИ сои | Россия, Благовещенск | |
| 25 | Popiel | Польша | 76 | Персона | ФГБНУ ФНЦ ВНИИ сои | Россия, Благовещенск | |
| 26 | RAN 288 | Польша | 77 | Полесская 201 | Беларусь | ||
| 27 | Sche 01 | Чехия | 78 | Прикарпатьская 81 | Украина | ||
| 28 | Semu 8001 | Германия | 79 | Припять | Беларусь | ||
| 29 | Varsovie | Польша | 80 | Протина | Франция | ||
| 30 | Vilnensis | Франция | 81 | Пруденс | Канада | ||
| 31 | Аванта | Компания СОКО | Россия, Краснодар | 82 | ПЭП 22 | ВИР | Россия, Санкт-Петербург |
| 32 | Актай | ФГБНУ ФНЦ ВНИИ сои | Россия, Благовещенск | 83 | Рассвет | ФГБНУ ФНЦ ВНИИ сои | Россия, Благовещенск |
| 33 | Алиса | Украина | 84 | Рось | Беларусь | ||
| 34 | Алтом | ФГБНУ ФАНЦА | Россия, Барнаул | 85 | Самер 1 | ФГБНУ ФАНЦ Юго-Востока | Россия, Саратов |
| 35 | Аляска | Канада | 86 | Самер 2 | ФГБНУ ФАНЦ Юго-Востока | Россия, Саратов | |
| 36 | Амазонка | Беларусь | 87 | Самер 3 | ФГБНУ ФАНЦ Юго-Востока | Россия, Саратов | |
| 37 | Анастасия | Компания Русская генетика | Россия, Краснодар | 88 | Самер 4 | ФГБНУ ФАНЦ Юго-Востока | Россия, Саратов |
| 38 | Аннушка (Краснодар) | Компания Русская генетика | Россия, Краснодар | 89 | Самер 5 | ФГБНУ ФАНЦ Юго-Востока | Россия, Саратов |
| 39 | Аннушка (Украина) | Украина | 90 | Светлая | ФГБНУ ФНАЦ ВИМ | Россия, Рязань | |
| 40 | Антрацит | Украина | 91 | Сиберия | Канада | ||
| 41 | Бара | Компания СОКО | Россия, Краснодар | 92 | Сибириада | ФГБНУ Омский АНЦ | Россия, Омск |
| 42 | Белгородская 6 | Белгородский ГАУ | Россия, Белгород | 93 | Сибириада 20 | ФГБНУ Омский АНЦ | Россия, Омск |
| 43 | Верас | Беларусь | 94 | Сибириада 23 | ФГБНУ Омский АНЦ | Россия, Омск | |
| 44 | ВНИИОЗ 106 | ВНИИОЗ | Россия, Волгоград | 95 | Сибирячка | ФГБНУ Омский АНЦ | Россия, Омск |
| 45 | ВНИИОЗ 41 | ВНИИОЗ | Россия, Волгоград | 96 | СибНИИК 315 | СФНЦА РАН | Россия, Новосибирск |
| 46 | Волма | Беларусь | 97 | Снежок | Беларусь | ||
| 47 | Галi | Украина | 98 | Соер 7 | ФГБНУ ФАНЦ Юго-Востока | Россия, Саратов | |
| 48 | Гармония | ФГБНУ ФНЦ ВНИИ сои | Россия, Благовещенск | 99 | Султана | Франция | |
| 49 | Георгия | ФГБНУ ФНАЦ ВИМ | Россия, Рязань | 100 | Чера 1 | ФГБНУ ФАНЦ Юго-Востока, ФГБНУ ФАНЦ Северо-Востока | Россия, Саратов и Киров |
| 50 | Грация | ФГБНУ ФНЦ ВНИИ сои | Россия, Благовещенск | 101 | Черемшанка | ФГБНУ Омский АНЦ | Россия, Омск |
| 51 | Денi | Украина | 102 | Эльдорадо | ФГБНУ Омский АНЦ, ФИЦ КазНЦ РАН | Россия, Омск и Казань |
Фенотипирование коллекции сои. Полевые исследования проводились в 2021–2023 гг. в полевом севообороте лаборатории селекции зернобобовых культур ФГБНУ Омский АНЦ (г. Омск), расположенном в южной лесостепи Омской области на юге Западно-Сибирской низменности. Характерными особенностями климата являются резкая континентальность, недостаток осадков, сухость воздуха, холодная и продолжительная зима и жаркое, но короткое лето.
Посев вручную в конце второй–начале третьей декады мая, предшественник – озимые зерновые. Площадь питания растений 60 × 5 см, количество семян в рядке – 40 шт., ширина междурядий 60 см, двухкратный повтор опыта. Репродукция семян местная. В течение вегетации сои проводили несколько ручных прополок и рыхление междурядий. Фенологические наблюдения – не реже двух раз в неделю. Дату полных (массовых) всходов отмечали индивидуально у каждого номера при появлении над поверхностью почвы семядольных листьев у более половины растений. Дату полного (массового) цветения сои ставили, когда более 75% растений имели цветки на нижних ярусах. Окончание цветения фиксировали при полном отсутствии бутонов на верхушках главного стебля и веток у подавляющего большинства растений. После контрольной проверки при последующем прохождении фенологии дата окончания цветения в отдельных случаях корректировалась [16, 17]. Данные о дате наступления полного цветения и окончания цветения получены в результате выращивания в полевом опыте в течение трех лет (2021–2023) для 100 образцов и двух лет (2022–2023) для двух образцов (Maple Donovan и Самер 1). Продолжительность цветения определялась как разница между датой окончания цветения и датой полного цветения.
Генотипирование коллекции сои. Выделение ДНК осуществляли из трех–пятидневных проростков стандартным методом с использованием цетилтриметиламмония бромида [18]. С помощью классической ПЦР с детекцией результатов амплификации посредством электрофоретического разделения ампликонов определяли аллельное состояние следующих локусов: с помощью комбинации прямого праймера E1(e1–as/e1–fs) и обратного праймера TI [14, 19] отличали аллель e1–nl от других аллелей E1; с помощью маркера E3_Mix [11] выявляли аллели E3–Mi, E3–Ha и e3–tr; с помощью праймеров PhyA2-For, PhyA2-Rev/E4 и PhyA2-Rev/e4 [20] отличали аллель e4–SORE–1 от других аллелей E4. ПЦР проводили в 384-луночном планшете с использованием амплификатора Thermal Cycler PCR Bioevopeak (PCR-96A-384, Китай) в рабочей смеси объемом 10 мкл. ПЦР-смесь содержала: 2.5-кратную реакционную смесь М-428 (Синтол, Россия) объемом 4 мкл, смесь праймеров концентрацией 10 мМ каждый объемом 1 мкл (синтез Евроген, Россия), Colored Taq-полимеразу (Силекс, Россия) активностью 2.5 e.a. объемом 0.3 мкл и ДНК анализируемой пробы объемом 1 мкл. Протокол ПЦР для каждого маркера соответствовал рекомендациям авторов маркеров. Результат оценивали визуально методом электрофореза в 2%-ном агарозном геле, с добавлением бромистого этидия. Визуализацию осуществляли с помощью трансиллюминатора Molecular imager Gel Doc XR+ с программным обеспечением Image Lab version 6.0.1 build 34. (Bio-Rad, США).
Для определения аллелей e1–as, e1–fs, e1–ns, e3–fs, e3–ns и e4–kes использовали маркеры последнего поколения на основе конкурентной аллель-специфичной ПЦР по конечной точке с флуоресцентной детекцией (Kompetitive allele specific PCR, KASP) [21]. ПЦР проводили в 384-луночном планшете с использованием амплификаторов СFX-384 (Bio-Rad, США) в рабочей смеси объемом 5 мкл и 96-луночном планшете СFX‑96 (Bio-Rad, США) в рабочей смеси объемом 10 мкл. Смесь содержала Mastermix с карбоксифлуоресцеином и гексахлорфлуоресцеином в качестве красителей объемом 2.5 мкл, смесь двух прямых и общего обратного праймеров (синтез Евроген, Россия) концентрацией 50 мМ в соотношении 1 : 1 : 2.5 объемом 0.07 мкл и ДНК анализируемой пробы объемом 2.5 мкл. Для объема рабочей смеси 10 мкл объем реагентов увеличивался вдвое. Протокол ПЦР для каждого маркера соответствовал рекомендациям авторов маркеров. Результат оценивали визуально по программному пакету Bio-Rad CFX Manager v 3.1. При необходимости проводили дополнительную амплификацию образцов (рециклинг).
Статистическая обработка данных. Регрессионный анализ для поиска корреляции между датой наступления полного цветения, окончания цветения и продолжительностью цветения, отражающей зависимость между этими показателями, а также анализ методом главных компонент и построение соответствующих диаграмм осуществляли в программе Statistica 12 (StatSoft, США). Средние арифметические значения и доверительные интервалы для данных по датам наступления полного цветения, окончания цветения и продолжительности цветения в среднем для каждой группы генотипов (носителей определенных аллелей) по отдельным локусам и построение соответствующих столбчатых диаграмм, а также построение круговых диаграмм с аллельной структурой осуществляли в Excel 2021 (Microsoft Office, США). Расчет средних значений и поиск значимости различий между средними значениями для данных по датам наступления полного цветения, окончания цветения и продолжительности цветения после объединения генотипов в группы с функциональными доминантными аллелями E и дисфункциональными рецессивными аллелями e осуществляли с использованием метода автоматизированного выбора модели с помощью функции “glmulti” из соответствующего пакета R. Этот метод находит оптимальные комбинации объясняющих переменных на основе критерия информации Акаике. Выбор переменных осуществлялся среди предикторов E1, E2, E3 и E4, включая их парные взаимодействия, с ограничением до четырех факторов. Модели строили за каждый год и в объединенном наборе данных. Для анализа применяли линейную смешанную модель (linear mixed-effects model, LME) из пакета “lme4”, обученную методом ограниченного максимального правдоподобия (restricted maximum likelihood, REML). В модель включали фиксированные эффекты, определенные на предыдущем этапе, а также случайные эффекты для групп “origin” и “year”. Далее проводили дисперсионный анализ типа III (Type III Wald chi square) для оценки значимости влияния факторов на зависимую переменную с вычислением скорректированной предсказательной способности R2adj. Краевые эффекты модели оценивали с помощью функции emmeans из пакета “emmeans”, что позволило вычислить средние прогнозируемые значения с учетом веса пропорционально представленности ячеек, обеспечивая адекватную оценку эффектов факторов. Значимость различий между средними значениями оценивали с использованием критерия Тьюки (p < 0.05).
РЕЗУЛЬТАТЫ
Фенотипирование. В полевом опыте наблюдение за фенофазами (дата полного цветения, дата окончания цветения и продолжительность цветения) проводили у 102 образцов, при этом у 100 образцов получены данные за три года наблюдения (2021–2023), а у двух образцов – за два года (2022–2023, рис. 1а). Наблюдаемая средняя дата наступления цветения за три года варьировалась от 29.3 до 72.0 дней. Стабильным ранним наступлением полного цветения в течение всех трех лет наблюдений (коэффициент вариации не более 10%) отличались сорта Рассвет (30.0 дней), Миляуша (30.3), Сибирячка (31.3), Дина (31.7), Черемшанка (32.0), Эльдорадо (32.3), Золотистая (32.7), Сибириада 20 (33.3) и Сибириада (35.0). В среднем за три года стабильно позднее наступление полного цветения показал образец Отбор ДТМ (72 дня). В среднем по коллекции самыми ранними по дате наступления полного цветения оказались образцы из Китая (один образец, 29.3 дня), Новосибирска (один образец, 30 дней) и Омска (в среднем 33 дня). Самой поздней датой наступления цветения характеризовались образцы из Саратова (43.4), с Украины (44.0), из Благовещенска (44.1) и Санкт-Петербурга (один образец – ПЭП 22; 46.3 дня).
Рис. 1.
Сроки цветения у образцов изучаемой коллекции сои, выращенной в условиях Омской области в 2021–2023 гг.: а – диаграмма сроков цветения образцов сои по годам: темно-серым цветом показан период от всходов до полного цветения; светло-серым цветом – период от даты полного цветения до окончания цветения (продолжительность цветения); по горизонтали – количество дней, по вертикали – названия образцов; б – трехмерное облако, иллюстрирующее взаимосвязь между датой полного цветения (ДПЦв, ось абсцисс), датой окончания цветения (ДОЦв, ось ординат) и продолжительностью цветения (ПрЦв, ось аппликат) по усредненным данным наблюдений; треугольниками обозначены образцы из изучаемой коллекции сои.
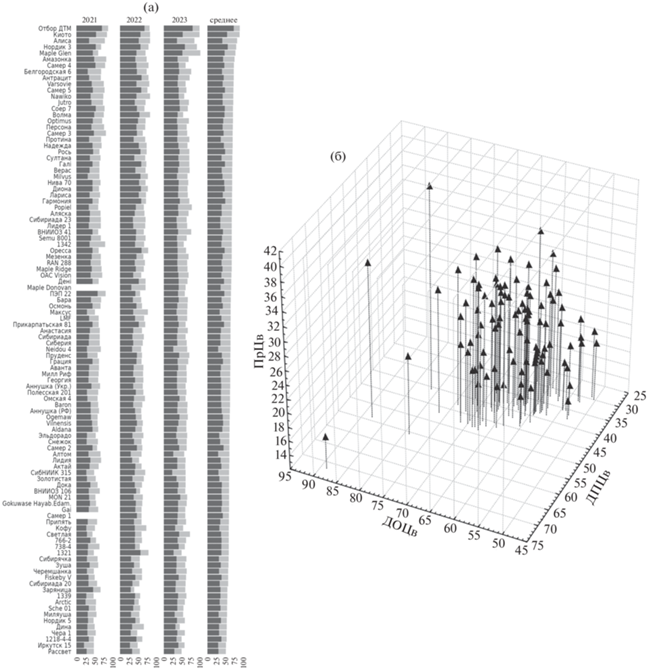
Наблюдаемая средняя дата окончания цветения за три года варьировалась от 50.3 до 88.7 дня. Наиболее раннюю дату стабильно по годам показали сорта Рассвет (50.3 дня), Иркутск 15 (51), Чера 1 (52.7), Миляуша (53.7), Sche 01 (54.0), Arctic (54.3) и Сибириада 20 (56.7). Наиболее поздняя дата окончания цветения наблюдалась у образцов Алиса (81.3), Киото (88.0) и Отбор ДТМ (88.7 дня). В среднем по коллекции самыми ранними по дате окончания цветения оказались образцы из Омского АНЦ (57.9 дня), Чехии (58.0 дней) и Швеции (58.0). Самой поздней датой наступления цветения в среднем за три года характеризовались образцы из Канады (67.9 дня), с Украины (68.6 дня) и из Белгорода (один образец, 72.0 дня).
Наблюдаемая средняя продолжительность цветения (от даты наступления полного цветения до окончания цветения) варьировалась в коллекции в течение трех лет от 14.7 до 40.7 дня. Наиболее стабильную короткую продолжительность цветения показали образцы 1218–4–4 (14.7 дня), Прикарпатьская 81 (18.0), Sche 01 (18.3), Fiskeby V (18.3) и Дока (20.0). Стабильно наиболее длинную продолжительность цветения продемонстрировали образцы Аляска (28.0 дней), Верас (29.0), Султана (29.7), Алтом (31.0), Лидер 1 (31.3), Амазонка (31.3) и Протина (32.7 дня). В среднем наиболее короткая продолжительность цветения была характерна для образцов из Санкт-Петербурга (один образец, 18 дней), США (19.7 дня), Японии (один образец, 19.7) и Швеции (20.1 дней); наиболее продолжительный период цветения был отмечен в среднем у образцов из Канады (27.9 дней), Новосибирска, Белгорода, Курска (по одному образцу – 29.3, 31.3 и 32.3 дней соответственно) и Китая (один образец, 33.7).
В среднем за три года наблюдений дата наступления полного цветения коррелировала с датой окончания цветения (r2 = 0.75, p < 0.05), а дата окончания цветения – с продолжительностью цветения (r2 = 0.49, p < 0.05); корреляции между датой наступления полного цветения и продолжительностью цветения не выявлено (рис. 1б). Среди всего разнообразия коллекции можно отметить группу сортов, которая характеризуется в целом стабильным ранним наступлением полного цветения и ранним окончанием цветения: Рассвет, Миляуша, Сибирячка, Золотистая и Сибириада 20. Выделяется группа образцов со стабильно ранним, но с более продолжительным, чем у первый группы, цветением: Лидер 1, Сибириада 23, Протина. В коллекции присутствуют образцы со стабильно поздним, но непродолжительным цветением: Отбор ДТМ, Соер 7, Прикарпатьская 81. Образец Киото (Канада) показал в среднем стабильно наиболее позднее и продолжительное цветение.
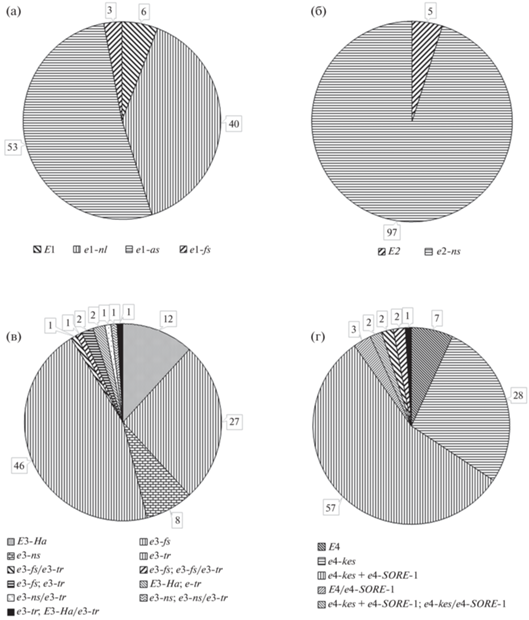
Генотипирование. В результате генотипирования коллекции из 102 образцов были получены следующие данные (рис. 2). Примерно равное количество образцов несут аллели нечувствительности к фотопериодизму e1–as (53 образца) и e1–nl (40 образцов); в меньшинстве оказались носители аллелей дикого типа E1 и e1–fs (шесть и три образца соответственно, рис. 2а). Генотипирование по локусу E2 показало, что подавляющая часть коллекции несет аллель нечувствительности к фотопериодизму e2–ns (97 образцов); небольшая часть несла аллели дикого типа E2 (пять образцов, рис. 2б). По локусу E3 в сумме большая часть коллекции несла аллели нечувствительности к фотопериодизму: e3–tr (46 образцов), e3–fs (27) и e3–ns (8); аллель дикого типа E3 был выявлен у 12 образцов. Девять образцов суммарно оказались гетерозиготными и/или гетерогенными по локусу E3 (рис. 2в). По локусу E4 28 образцов несли аллель e4–kes, семь образцов – аллель дикого типа E4. В результате анализа данных ПЦР установлено, что 57 образцов несут одновременно как инсерцию, характерную для e4–SORE–1, так и однонуклеотидный полиморфизм, характерный для e4–kes. Так как используемые ПЦР-маркеры являются кодоминантными, т.е. отличающими гомо- от гетерозигот, то в отношении данных образцов была исключена гипотеза об их гетерозиготности. В связи с этим они были условно обозначены “e4–kes+e4–SORE–1”. Десять образцов оказались гетерогенными и гетерозиготными по локусу E4 (рис. 2г).
Рис. 2.
Диаграммы аллельной структуры изучаемой коллекции сои по локусам E1 (а), E2 (б), E3 (в) и E4 (г). Знаком “/” показаны генотипы, гетерозиготные по аллельному состоянию; знаком “;” показаны образцы, гетерогенные по аллельному состоянию; e4–kes+e4–SORE–1 – генотипы, несущие сразу две мутации от e4–kes и e4-SORE-1.
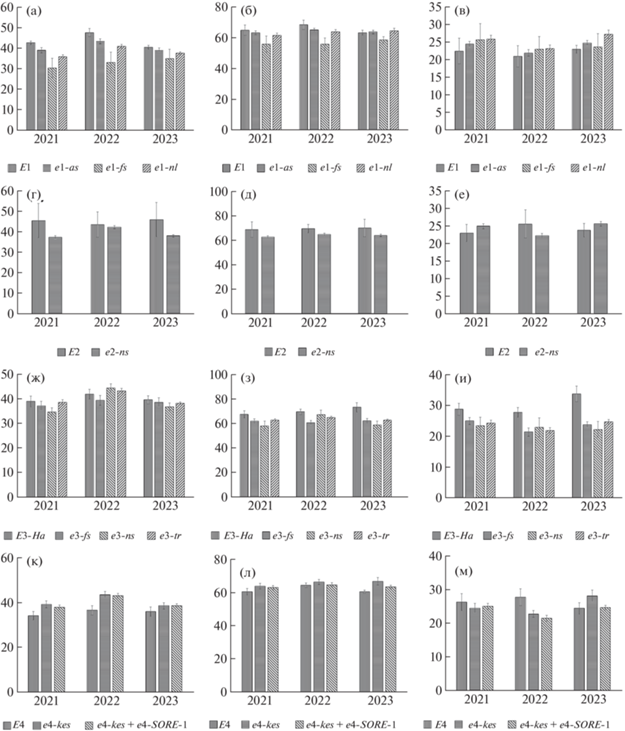
Влияние аллельного состояния локусов E на сроки цветения. Сравнение групп генотипов между собой показало, что генотипы, несущие аллели e1–fs, в среднем зацветали раньше таковых с e1–nl на 3‒8 дней, которые, в свою очередь, опережали e1–as на 2–3 дня; позже всех зацветали генотипы с аллелем E1. Генотипы с аллелем e2–ns по сравнению с образцами с аллелем E2 раньше приступали к полному цветению в среднем до восьми дней и завершали цветение с опережением на 4–6 дней. У образцов с аллелем e3–fs по сравнению с аллелем дикого типа E3–Ha в среднем цветение прекращалось раньше на 6–11 дней и была более короткая продолжительность цветения на 4–11 дней. Полное цветение и окончание цветения у генотипов с аллелем дикого типа E4 наступало соответственно на 3–7 и на 2–6 дней раньше по сравнению с e4–kes и соответственно на 3–7 и 2–3 дня по сравнению с e4–kes+e4–SORE–1 (рис. 3).
Рис. 3.
Диаграммы дат наступления полного цветения (а, г, ж, к), окончания цветения (б, д, з, л) и продолжительности цветения (в, е, и, м) в зависимости от аллельного состояния локусов E1 (а, б, в), E2 (г, д, е), E3 (ж, з, и) и E4 (к, л, м). Для каждого среднего значения указаны доверительные интервалы; данные построены только для гомозиготных и гомогенных образцов.
Для сравнения аллельных комбинаций между собой ввиду небольшого объема выборки и малого числа образцов в каждой группе аллельной комбинации генотипы объединили по признаку функциональности аллеля: “E” (аллель дикого типа или гетерозиготы по аллелю дикого типа) или “e” (аллели e1–as, e1–nl, e1–fs для локуса E1; e2-ns для локуса E2; аллели e3–tr, e3–fs и e3–ns; аллели e4–kes, e4–kes+ e4–SORE–1, а также гетерозиготные или гетерогенные образцы, несущие только дисфункциональные рецессивные аллели). Образцы Arctic, Neidou 4, Верас, Миляуша и Эльдорадо, гетерогенные по аллелям дикого типа и рецессивным аллелям, были исключены из анализа. Средние значения даты наступления цветения, даты окончания цветения и продолжительности цветения по годам наблюдений и по аллельным комбинациям в системе E/e представлены в табл. 2.
Таблица 2.
Средние значения даты наступления полного цветения, окончания цветения и продолжительности цветения в соответствии с группировкой аллелей на функциональные доминантные (E) и дисфункциональные рецессивные (e)
| Генотип по локусам E | Число образцов | Дата полного цветения | Дата окончания цветения | Продолжительность цветения | ||||||
|---|---|---|---|---|---|---|---|---|---|---|
| 2021 | 2022 | 2023 | 2021 | 2022 | 2023 | 2021 | 2022 | 2023 | ||
| e1/e2/e3/e4 | 64 | 37.9 | 43.4 | 38.3 | 61.9 | 64.1 | 62.9 | 24.0 | 20.7 | 24.6 |
| E1/e2/e3/e4 | 6 | 42.7 | 47.7 | 40.5 | 65.2 | 68.7 | 63.5 | 22.5 | 21.0 | 23.0 |
| e1/E2/e3/e4 | 4 | 49.7 | 44.3 | 48.5 | 71.3 | 70.5 | 71.5 | 21.7 | 26.3 | 23.0 |
| e1/e2/E3/e4 | 13 | 38.2 | 41.9 | 39.2 | 66.6 | 70.0 | 72.0 | 28.4 | 28.1 | 32.8 |
| e1/e2/e3/E4 | 9 | 33.3 | 35.6 | 36.9 | 60.6 | 60.3 | 59.8 | 27.2 | 24.8 | 22.9 |
| e1/E2/e3/E4 | 1 | 33.0 | 41.0 | 36.0 | 60.0 | 64.0 | 63.0 | 27.0 | 23.0 | 27.0 |
Анализ генотипов показал, что значительная часть коллекции (64 образца) несет по всем четырем локусам E дисфункциональные аллели, связанные с нечувствительностью к фотопериодизму. Большая часть остальных образцов в своем генотипе имеет функциональный аллель только по одному локусу: 13 образцов несли аллель дикого типа E3, 9 – E4, 6 – E1, 4 – E2. Только один образец (Георгия) имеет в генотипе одновременно два функциональных аллеля – E1 и E3. Функциональные аллели E1, E2 и E3 выявлены преимущественно в образцах из США, Канады, Центральной и Восточной Европы, в то время как аллель дикого типа E4 оказался характерен только для сортов российской селекции.
В 2021 г. на дату полного цветения среди всех генов E наибольшее влияние оказывали гены E1, E2 и E4, в 2022 – ген E4, в 2023 – гены E2 и E4, а также их взаимодействие (рис. 4, табл. 3). При сравнении предельных средних значений на основании построенных моделей статистически значимые различия выявлены в 2021 и 2023 г. между генотипами по локусу E2: носители рецессивного аллеля e2 зацветали раньше носителей доминантного аллеля E2 в среднем на 8.5 и 7.6 дня соответственно. Более детальный анализ показал, что в 2023 г. у генотипа E2/e4 дата полного цветения наступала в среднем на 48.5 дня, что статистически значимо дольше на 10–13 дней, чем у других комбинаций аллелей по локусам E2 и E4. Также в течение всех трех лет наблюдалась закономерность (хотя статистически незначимая) более ранней даты наступления полного цветения у растений с аллелями e1 по сравнению с E1 на 2–4 дня и у носителей E4 по сравнению с носителями e4 на 2–5 дней (табл. 4). Место происхождения сорта объясняло до 19% общей дисперсии даты полного цветения по всей выборке (табл. 5).
Рис. 4.
Диаграммы, построенные методом главных компонент. Горизонтальная и вертикальная оси показывают факторы, объясняющие наблюдаемые эффекты в 2021 (а), 2022 (б) и 2023 (в) годах. Векторами показаны наблюдаемые признаки (ДПЦв, дата полного цветения; ДОЦв, дата окончания цветения; ПрЦв, продолжительность цветения) и наличия доминантных аллелей генов E1, E2, E3 и E4. Сонаправленность векторов фактора и признака показывает положительное влияние фактора на признак (увеличение его значения), противонаправленность – отрицательное влияние фактора на признак (уменьшение его значения), перпендикулярное расположение – нейтральное влияние.
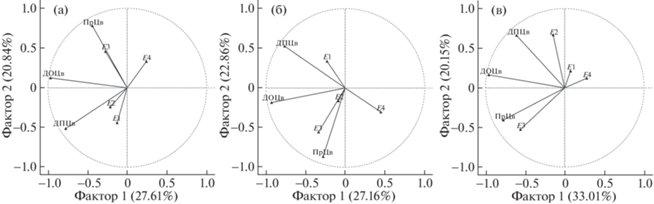
Таблица 3.
Математическая модель, построенная на основе дисперсионного анализа, объясняющая даты полного цветения, окончания цветения и продолжительности цветения на основе факторов – аллельного состояния локусов E1, E2, E3 и E4
| Фактор, входящий в модель дисперсион-ного анализа | 2021 | 2022 | 2023 | |||
|---|---|---|---|---|---|---|
| df | p value | df | p value | df | p value | |
| Дата полного цветения | ||||||
| E1 | 2 | 0.0000 | ||||
| E2 | 1 | 0.0115 | 2 | 0.0000 | ||
| E3 | ||||||
| E4 | 1 | 0.0503 | 2 | 0.0000 | 1 | 0.4213 |
| E2: E4 | 1 | 0.1171 | ||||
| R2adj | 0.963 | 0.969 | 0.977 | |||
| Дата окончания цветения | ||||||
| E1 | ||||||
| E2 | 2 | 0.0000 | 2 | 0.0000 | ||
| E3 | 2 | 0.0000 | 1 | 0.0396 | 1 | 0.0003 |
| E4 | 1 | 0.2975 | ||||
| R2adj | 0.979 | 0.984 | 0.983 | |||
| Продолжительность цветения | ||||||
| E1 | ||||||
| E2 | 2 | 0.0000 | ||||
| E3 | 2 | 0.0000 | 1 | 0.0004 | 2 | 0.0000 |
| E4 | 1 | 0.1123 | 1 | 0.1769 | ||
| R2adj | 0.937 | 0.928 | 0.953 | |||
Таблица 4.
Сопоставление предельных средних дат полного цветения, окончания цветения и продолжительности цветения у изучаемой коллекции сои в 2021–2023 гг. между генотипами с функциональными (E) и дисфункциональными (e) аллелями локусов E1, E2, E3 и E4
| Генотип | 2021 г. | 2022 г. | 2023 г. |
|---|---|---|---|
| Дата полного цветения | |||
| E1 | 42.2a (36.1–48.2) | 46.3a (40.2–52.5) | 40.5a (35.6–45.4) |
| e1 | 37.8a (35.5–40.0) | 42.4a (40.0–44.8) | 38.7a (37.2–40.1) |
| E2 | 46.2a (38.8–53.7) | 44.0a (37.2–50.7) | 46.0a (40.7–51.3) |
| e2 | 37.7b (35.4–39.9) | 42.6a (40.2–45.0) | 38.4b (37.0–39.8) |
| E3 | 38.0a (33.1–43.0) | 41.9a (36.8–46.9) | 39.2a (35.4–42.9) |
| e3 | 38.0a (35.8–40.3) | 42.8a (40.4–45.2) | 38.7a (37.3–40.2) |
| E4 | 33.9a (28.7–39.0) | 38.3a (33.0–43.5) | 36.8a (32.8–40.9) |
| e4 | 38.5a (36.3–40.8) | 43.2a (40.7–45.6) | 39.0a (37.6–40.5) |
| Дата окончания цветения | |||
| E1 | 64.8a (57.3–72.3) | 67.8a (61.0–74.6) | 63.4a (56.4–70.4) |
| e1 | 62.7a (60.0–65.3) | 64.7a (62.4–67.0) | 64.2a (62.2–66.3) |
| E2 | 69.3a (60.1–78.6) | 69.7a (62.3–77.2) | 69.8a (62.1–77.4) |
| e2 | 62.5a (59.8–65.2) | 64.6a (62.3–67.0) | 63.9a (61.8–66.0) |
| E3 | 66.7a (60.6–72.7) | 69.7a (64.3–75.1) | 72.0a (66.6–77.3) |
| e3 | 62.2a (59.4–64.9) | 64.2a (61.8–66.5) | 63.0b (60.9–65.1) |
| E4 | 61.3a (54.9–67.6) | 61.7a (56.0–67.4) | 60.2a (54.4–66.0) |
| e4 | 63.0a (60.3–65.7) | 65.3a (62.9–67.6) | 64.7a (62.5–66.8) |
| Продолжительность цветения | |||
| E1 | 22.5a (17.1–27.9) | 21.1a (15.9–26.2) | 23.0a (18.3–27.7) |
| e1 | 24.9a (23.3–26.5) | 22.3a (20.6–24.0) | 25.7a (24.2–27.2) |
| E2 | 23.0a (16.5–29.5) | 25.9a (20.3–31.5) | 23.7a (18.6–28.9) |
| e2 | 24.8a (23.2–26.4) | 22.0a (20.3–23.7) | 25.6a (24.1–27.1) |
| E3 | 28.4a (24.3–32.5) | 27.8a (23.8–31.9) | 32.8a (29.1–36.5) |
| e3 | 24.2a (22.5–25.8) | 21.3b (19.6–23.1) | 24.4b (22.8–25.9) |
| E4 | 27.2a (22.7–31.7) | 24.1a (19.8–28.5) | 23.4a (19.4–27.3) |
| e4 | 24.5a (22.9–26.1) | 22.0a (20.3–23.7) | 25.8a (24.2–27.3) |
Таблица 5.
Дисперсия происхождения образцов (случайный фактор) и остаточная дисперсия для даты наступления полного цветения, окончания цветения и продолжительности цветения
| Дисперсия | 2021 | 2022 | 2023 |
|---|---|---|---|
| Дата полного цветения | |||
| Происхождение | 8.5 | 11.3 | 0.0 |
| Остаточная | 48.1 | 47.5 | 34.8 |
| Дата окончания цветения | |||
| Происхождение | 7.9 | 6.8 | 1.3 |
| Остаточная | 77.2 | 62.5 | 70.1 |
| Продолжительность цветения | |||
| Происхождение | 0.0 | 3.0 | 1.6 |
| Остаточная | 41.4 | 36.1 | 30.6 |
В 2021 г. на дату окончания цветения среди всех генов E наибольшее влияние оказал ген E3, в 2022 – E2, E3 и E4, в 2023 – E2 и E3 (рис. 4, табл. 3). При сравнении предельных средних значений на основании построенных моделей статистически значимые различия выявлены в 2023 г. между генотипами по локусу E3: носители рецессивного аллеля e3 завершали цветение раньше, чем носители доминантного аллеля E3, в среднем на 9 дней. Также в каждом из трех лет опыта наблюдалась тенденция (без статистически значимых различий) более ранней даты окончания цветения у генотипов e2 по сравнению с E2 на 5–7 дней и у генотипов E4 по сравнению с e4 на 2–5 дней (табл. 4). Место происхождения сорта объясняло до 10% общей дисперсии даты полного цветения по всей выборке (табл. 5).
В 2021 г. на продолжительность цветения среди изучаемых генов E наибольшее влияние оказали гены E3 и E4, в 2022 – E2, E3 и E4, в 2023 – ген E3 (рис. 4, табл. 3). При сравнении предельных средних значений на основании построенных моделей статистически значимые различия выявлены в 2022 и 2023 г.: у группы растений с аллелем e3 продолжительность цветения была в среднем короче по сравнению с E3 на 6.5 и 8.4 дня соответственно; в 2021 г. разница составила 4.2 дня (табл. 4). Место происхождения сорта объясняло до 8% общей дисперсии даты полного цветения по всей выборке (табл. 5).
ОБСУЖДЕНИЕ
Структура коллекции. В изучаемой коллекции значительную часть представляли примерно в равных соотношениях генотипы e1–as и e1–nl, аллели E1 и e1–fs составили меньшинство. Полученная структура по распределению аллелей локуса E1 наиболее близка к данным [15] для части коллекции российского происхождения, не включающей в себя сорта из Западной Сибири (56.1% для e–1as и 39.0% для e1–nl). Примерно равная частота e1–as и e1–nl в коллекции объясняется тем, что она представлена в основном российскими сортами разнообразного географического происхождения от Центральной Европы до Дальнего Востока. Аллель e1–as доминирует в американских сортах [13, 22]. В коллекциях китайских сортов сои аллель e1-as в основном занимает второе место по распространенности после аллеля дикого типа E1 [13, 22, 23], однако в сортах северо-восточных Китая e1–as занимает доминирующее положение [21]. Аллель e1–nl более распространен в сортах северной и центральной Европы, Канады и Западной Сибири [13, 15]. В изученной коллекции высокая доля e1–nl обеспечивалась присутствием образцов из Канады, Польши, Швеции, Беларуси и Омска. Редкая встречаемость в коллекции аллеля дикого типа E1 объясняется тем, что он обеспечивает чувствительность к фотопериоду и таким образом характерен для сортов южных широт. Низкая частота аллеля e1–fs в целом характерна для большинства коллекций сои независимо от их происхождения.
По локусу E2 значительную часть коллекции составляли носители аллеля нечувствительности к фотопериоду e2–ns. Доминирование этого аллеля характерно для сортов российской и европейской селекции (особенно для Западно-Сибирского региона) [15, 24]; в то время как в американских сортах встречается преимущественно аллель дикого типа E2 [22]. В китайских коллекциях пропорции рецессивного аллеля e2-ns и вариантов доминантного аллеля E2 зависят от провинции и сроков высева сортов [21, 23].
По локусу E3 в изученной коллекции преобладали рецессивные аллели e3–tr и e3–fs, при этом e3–tr был выявлен преимущественно у сортов российской селекции, в частности у всех сортов селекции Омского АНЦ (25 образцов), а аллель e3–fs – преимущественно у сортов иностранной селекции (28 образцов); аллель e3-ns был выявлен только в сортах иностранной селекции. Полученная структура в целом согласуется с результатами [15] при группировке сортов по происхождению. Варианты восприимчивого к фотопериоду доминантных аллелей E3 характерны для китайских и американских сортов [22, 23], а также для сортов из Центральной и Южной Европы [24].
При анализе аллельного состояния локуса E4 выявлен потенциально новый аллель, который одновременно характеризуется наличием как инсерции, специфичной для аллеля e4–SORE–1, так и SNP-мутации, характерной для e4–kes. Возможно, о подобных результатах не было сообщений в связи с тем, что образцы сои, идентифицированные по результатам анализа с помощью классического ПЦР-маркера E4F/E4R1/e4R2 как e4–SORE–1, в дальнейшем не анализировались с помощью KASP-маркера на SNP-полиморфизм, характерный для e4–kes. В настоящей работе использовали оба маркера для тотального анализа всей коллекции. Дальнейшие исследования по секвенированию генов у образцов, несущих обе мутации, позволят понять структурно-функциональные особенности данного аллеля. Интересно, что аллельный вариант e4–kes+e4–SORE–1 составил значительную часть коллекции, в то время как e4–SORE–1 встречался только у гетерозиготных или гетерогенных образцов. Заслуживает внимания и тот факт, что аллели дикого типа по локусам E1, E2 и E3 в основном встречались в образцах иностранной селекции, в то время как аллель дикого типа E4 – только в образцах российской селекции. Это согласуется с данными [15], в которых аллель дикого типа E4 занимает почти половину в структуре российских сортов. В сортах из Китая, Японии, США, центральной и Южной Европы также преобладают аллели дикого типа [13, 21, 23, 24].
Влияние аллельного состояния локусов E на сроки и продолжительность цветения. Отметим, что у генотипов с дисфункциональными рецессивными аллелями e1 в среднем дата полного цветения наступала раньше, чем у аллелей дикого типа (хотя и статистически незначимо). В [15, 24] показано, что в условиях длинного светового дня у генотипов с дисфункциональным аллелем e1–nl цветение наступает в среднем раньше, чем у генотипов с частично функциональным аллелем e1–as. В настоящей работе также наблюдалась аналогичная тенденция: в среднем в течение трех лет носители аллелей e1–nl достигали полного цветения на 2–3 дня раньше, чем носители e1–as.
В проведенном исследовании локус E2 оказывал статистически значимое влияние на дату полного цветения и дату окончания цветения в двух из трех лет эксперимента. У образцов с рецессивным аллелем e2–ns по сравнению с аллелем дикого типа E2 раньше наступало полное цветение (в 2021 и 2023 г. с разницей в семь дней) и окончание цветения (статистически незначимо на 5‒6 дней). В различных работах разница между аллелями дикого типа E2 и рецессивными вариантами может составлять от нескольких дней до недели [15, 24, 25], что, вероятно, связано как с местом проведения эксперимента (включая широту и климатические особенности), так и с генетическим окружением целевых аллелей.
Локус E3 оказал статистически значимое влияние на окончание цветения и продолжительность цветения: разница между группой доминантных и рецессивных генотипов достигала 8–9 дней по обоим показателям. В [15] при выращивании образцов в Новосибирске разница между этими аллелями в дате наступления цветения составила несколько дней; таким образом, можно говорить о значительной роли локуса E3 именно для условий Омской области.
По результатам исследований растения сои, несущие доминантный аллель E4, в целом показали более ранее наступление полного цветения и окончание цветения, чем носители рецессивных аллелей e4–kes и e4–kes+e4–SORE–1. Это не согласуется с опубликованными наблюдениями, в которых рецессивные аллели ассоциированы с ранними сроками цветения и созревания [11, 15, 21]. Данное различие может быть обусловлено особенностями Омской области и может быть критично при выборе наиболее адаптированного к местным условиям генотипа.
Анализ генотипов показал, что сорта, созданные Омским АНЦ для возделывания в Омской области, несут следующие комбинации аллелей: e1–as/e2–ns/e3–fs/E4, e1–as/e2–ns/e3–fs/e4–kes, e1–as/e2–ns/e3–fs/e4–kes+e4–SORE-1 и e1‒nl/e2–ns/e3–fs/e4–kes+e4–SORE-1. Интересно, что 4 из 10 образцов несли аллель дикого типа E4, еще один был гетерозиготен по нему. Не исключаем, что идентифицированные аллели дикого типа E4 в действительности могут нести мутации по этому локусу, не выявляемые существующими маркерами. Например, в [13] выявлен новый аллель e4–par, характерный для сортов Северной Европы и Канады, однако в открытом доступе нет молекулярных маркеров, пригодных для его идентификации.
Использование маркер-опосредованной селекции позволит более эффективно вести отбор образцов сои, несущих комбинации аллелей, обеспечивающие адаптивность сортов сои при создании сибирского экотипа для Омской области за счет более раннего цветения при оптимальной его продолжительности. Скрещивание между собой контрастных по срокам цветения, но одинаковых по аллельному состоянию локусов E образцов и анализ полученного потомства позволят выявить новые гены, влияющие на сроки развития сои. Так, например, сорта Самер 2 и Сибириада 23 имеют одинаковые генотипы e1–as/e2–ns/e3–fs/E4, но у Сибириады 23 полное цветение наступает на 7–11 дней раньше, а цветение в целом более растянутое. Получение полноразмерных нуклеотидных последовательностей аллелей локусов E у выдающихся по срокам цветения образцов и разработка на них молекулярных маркеров позволят расширить арсенал используемых аллелей в маркер-опосредованной селекции сои на адаптивность в условиях Западной Сибири.
ЗАКЛЮЧЕНИЕ
В результате проведенного анализа коллекции образцов сои российской и иностранной селекции выявлены образцы, характеризующиеся стабильным ранним наступлением полного цветения. Установлено, что доминирующими в коллекции являются рецессивные аллели локусов E, формирующие фотопериодически нейтральный фенотип (e1–as, e1–fs, e2–ns, e3–tr, e3–fs, e4–kes, e4–kes+e4–SORE–1). Выявлено фенотипическое проявление аллельного состояния локусов E1, E2, E3 и E4. Продемонстрировано, что при выращивании сои в Омской области на дату наступления полного цветения значительное воздействие оказывают локусы E2 и E4 и (в меньшей степени) E1, а на дату окончания цветения и продолжительность цветения – локус E3. Показано, что наиболее предпочтительными аллелями в маркер-опосредованной селекции сои для условий Омской области являются аллели e1–as, e1–nl, e2–ns, e3‒fs и E4.
Работа выполнена при финансовой поддержке Министерства науки и высшего образования РФ в рамках Государственного задания FGUM-2022-0007.
Список литературы
Food and agriculture data // FAOSTAT. Food and Agriculture Organization of the United Nations. https://www.fao.org/faostat/en/#data
Singh P., Kumar R., Sabapathy S.N. et al. // Compr. Rev. Food Sci. Food Saf. 2008. V. 7 (1). P. 14. https://doi.org/10.1111/j.1541-4337.2007.00025.x
Nakei M.D., Venkataramana P.B., Ndakidemi P.A. // Front. Sustain. Food Syst. 2022. V. 6. P. 824444. https://doi.org/10.3389/fsufs.2022.824444
Бюллетени о состоянии сельского хозяйства (электронные версии) // Федеральная служба государственной статистики. https://rosstat.gov.ru/compendium/document/13277
Суворова Ю.Н., Омельянюк Л.В., Асанов А.М. // Вестник Омского ГАУ. 2021. № 4 (44). С. 64. https://doi.org/10.48136/2222-0364_2021_4_64
Омельянюк Л.В., Асанов А.М., Танакулов А.Х. // Масличные культуры. Научно-технический бюллетень Всероссийского научно-исследовательского института масличных культур 2012. Вып. 1 (150). С. 80.
Юсова О.А., Омельянюк Л.В., Асанов А.М. // Агрофизика. 2024. № 1. С. 26. https://doi.org/10.25695/AGRPH.2024.01.04
Асанов А.М., Омельянюк Л.В., Халипский А.Н. // Вестник КрасГАУ. 2023. № 8. С. 54. https://doi.org/10.36718/1819-4036-2023-8-54-63
Юсова О.А., Асанов А.М., Омельянюк Л.В. // Масличные культуры. 2023. Вып. 4 (196). С. 3.
Федорина Я.В., Хлесткина Е.К., Сеферова И.В. и др. // Экологическая генетика. 2022. Т. 20. № 1. С. 13. https://doi.org/10.17816/ecogen83879
Tsubokura Y., Watanabe S., Xia Z. et al. // Ann. Bot. 2014. V. 113 (3). P. 429. https://doi.org/10.1093/aob/mct269
Hou Z., Fang C., Liu B. et al. // Mol. Breed. 2023. V. 43. P. 36. https://doi.org/10.1007/s11032-023-01382-4
Zhu X., Leiser W., Hahn V. et al. // J. Exp. Bot. 2023. V. 74 (10). P. 2987. https://doi.org/10.1093/jxb/erad064
Perfil’ev R.N., Shcherban A.B., Salina E.A. // Vavilov J. Genetics Breeding. 2021. V. 25 (7). P. 761. https://doi.org/10.18699/VJ21.087
Perfil’ev R., Shcherban A., Potapov D. et al. // Agriculture. 2023. V. 13(6). P. 1251. https://doi.org/10.3390/agriculture13061251
Корсаков Н.И. Методические указания по изучению коллекции зерновых и бобовых культур. Л.: ВИР, 1975. 59 с.
Вишнякова М.А., Сеферова И.В., Буравцева Т.В. и др. Коллекция мировых генетических ресурсов зерновых бобовых ВИР: пополнение, сохранение и изучение. Санкт-Петербург: ВИР, 2018. 143 с.
Murray M.G., Thompson W.F. // Nucl. Acids Res. 1980. V. 8 (19). https://doi.org/10.1093/nar/8.19.4321
Xia Z., Watanabe S., Yamada T. et al. // Proc. Natl. Acad. Sci. 2012. V. 109 (32). P. E2155. https://doi.org/10.1073/pnas.1117982109
Liu B., Kanazawa A., Matsumura H. et al. // Genetics. 2008. V. 180 (2). P. 995. https://doi.org/10.1534/genetics.108.092742
Liu L., Song W., Wang L. et al. // PLoS One. 2020. V. 15(7). P. e0235397. https://doi.org/10.1371/journal.pone.0235397
Langewisch T., Lenis J., Jiang G.-L. et al. // BMC Plant Biol. 2017. V. 17. P. 91. https://doi.org/10.1186/s12870-017-1040-4
Zhang X., Wu T., Wen H. et al. // Agriculture. 2021. V. 11 (6). 478. https://doi.org/10.3390/agriculture11060478
Kurasch A.K., Hahn V., Leiser W.L. et al. // Plant Cell Environ. 2017. V. 40 (5). P. 765. https://doi.org/10.1111/pce.12896
Watanabe S., Xia Z., Hideshima R. et al. // Genetics. V. 188 (2). P. 395. https://doi.org/10.1534/genetics.110.125062
Дополнительные материалы отсутствуют.
Инструменты
Российские нанотехнологии


 Пн.-пт.: 10.00-19.00