

Доклады Российской академии наук. Науки о жизни, 2023, T. 512, № 1, стр. 428-432
Моделируемая микрогравитация меняет количество транскриптов генов механоуправляемых и механосенситивных ионных каналов кардиомиоцитов желудочков крыс
А. Г. Камкин 1, *, В. М. Митрохин 1, О. В. Камкина 1, В. Е. Казанский 1, А. С. Родина 1, А. Д. Золотарева 1, В. И. Золотарев 1, П. В. Сутягин 1, М. И. Младенов 1, Б. С. Шенкман 2, В. Е. Калашников 2, академик РАН О. И. Орлов 2
1 ФГАОУ ВО Российский национальный исследовательский медицинский университет
им Н.И. Пирогова МЗ РФ
Москва, Россия
2 ФГБУН ГНЦ РФ Институт медико-биологических проблем РАН
Москва, Россия
* E-mail: andre.gleb.kamkin@gmail.com
Поступила в редакцию 25.05.2023
После доработки 03.06.2023
Принята к публикации 05.06.2023
- EDN: PABJTC
- DOI: 10.31857/S2686738923600383
Аннотация
В основе механоэлектрической обратной связи в сердце лежит работа механоуправляемых (MGCs) и механосенситивных (MSCs) каналов. Поскольку микрогравитация меняет морфологические и физиологические свойства сердца, предполагали, что будет затронута экспрессия как MGCs, так и MSCs. При помощи секвенирования РНК-транскриптома изучали изменение количества транскриптов генов MGCs и MSCs у изолированных кардиомиоцитов желудочков крыс в контрольных условиях и на модели микрогравитации. Впервые показано, что моделируемая микрогравитация вызывает изменения количества транскриптов генов для части MGCs, например, TRPM7, TRPV2, TRPP1, TRPP2, Piezo1, TMEM63A, TMEM36B и известных MSCs, например, K2P2.1, K2P3.1, Kir6.1, Kir6.2, NaV1.5, CaV1.2, KV7.1, но не затрагивает иные потенциалуправляемые каналы или каналы без сенсора напряжения. Это потенциально приводит к изменению экспрессии MGCs и MSCs, что вызывает изменения суммарных токов через мембрану и, в итоге, изменения в работе сердца.
Кардиомиоциты, как и клетки многих органов, чувствительны к механическому стрессу любой природы и это проявляется в виде выраженного изменения их электрофизиологических свойств. Это явление, противоположное электромеханическому сопряжению, получило название механоэлектрическая обратная связь, которая играет важнейшую роль не только в нормальных условиях, но и при патологиях сердца, например, как основа механизма ряда сердечных аритмий [1]. Механоэлектрическая обратная связь реализуется благодаря потокам катионов через ионные каналы, активируемые растяжением (Mechanically Gated Channels: MGCs или Stretch Activated Channels: SACs) [2], что вызывает изменение потенциала покоя и потенциалов действия кардиомиоцитов [3, 4]. Было показано, что растяжение изолированных кардиомиоцитов желудочков [5, 6] или предсердий [7] запускает поток катионов через MGCs, который модулирует мембранный потенциал сердечных миоцитов. Чувствительность к растяжению клеток сердца определяется его состоянием относительно нормы. Она особенно высока у кардиомиоцитов гипертрофированных желудочков крыс любой этиологии [3–5], что авторы связывают с гипер-экспрессией MGCs. Подобно кардиомиоцитам желудочков, чувствительность MGCs к растяжению особенно высока у изолированных кардиомиоцитов предсердий людей с различными патологиями сердца [8]. В целом MGCs кардиомиоцитов играют важную роль не только в работе сердца в норме, но, прежде всего, при патологических состояниях.
Вместе с тем хорошо известно, что изменения силы тяжести меняют морфологические и физиологические свойства сердца. Так, воздействие микрогравитации в космической среде приводит к атрофии сердца и снижению сердечной функции [9]. Исследования, проведенные в этом направлении во время космических полетов, показали перераспределение жидкости организма в сторону головы и, как следствие, продемонстрировали значительную нагрузку на сердечно-сосудистую систему [10]. Длительное действие микрогравитации приводит к уменьшению конечного диастолического объема левого желудочка и ударного объема желудочка [11]. Более того, у крыс, находящихся в космосе 14 дней, было показано уменьшение средней площади поперечного сечения миоцитов в мышце левого желудочка, что указывало на атрофию миокарда [12]. Эти данные показывают, что длительное действие микрогравитации оказывают существенное негативное влияние на сердечно-сосудистую систему. Важно отметить, что сходные изменения были обнаружены в сердцах пациентов, прикованных к постели, и пациентов с параличом нижних конечностей [13].
Мы предположили, что микрогравитация может оказывать влияние как на MGCs, так и на механосенситивные ионные каналы (Mechanosensitive Ion Channels: MSCs) плазматической мембраны клеток и, прежде всего, на уровень их экспрессии. Между принципами работы этих типов каналов имеются принципиальные отличия. Как известно, MGCs, по существу, выполняют роль механоэлектрических преобразователей, преобразовывающих механическую энергию в электрическую при помощи воротного механизма каналов. Для них механический стресс, реализуемый через изменение механического напряжения (tension) мембраны (прямого или через цитоскелет) служит полноценным физиологическим раздражителем, открывающим каналы. Открытие (активация) MGCs лежит в микросекундном диапазоне и сохраняется все время действия механического фактора [5, 6]. При этом большинство MGCs являются катион неселективными, а часть имеют калиевую проводимость. В отличие от MGCs, MSCs могут быть потенциал- или лигандуправляемыми, т.е. для них полноценным физиологическим раздражителем, активирующим каналы, служит изменение потенциала (при наличии в структуре доменов сенсора напряжения – сегмента S4, например, NaV, CaV, KV каналы) или связывание с лигандом (при наличии рецептора). Однако при механическом стрессе эти каналы меняют проводимость своих ионов. Например, растяжение кардиомиоцита приводит к уменьшению Ca2+-тока через L-тип Ca2+-каналов CaV1.2, которые являются MSCs.
Показано, что растяжение кардиомиоцитов желудочков молодых здоровых крыс на 8– 10 мкм, увеличивающее длину саркомеров от 1.8 до 2.2 мкм, приводит к появлению максимального тока через MGCs величиной –2.69 ± ± 0.17 нА при –80 мВ [5, 6]. Увеличение тока можно объяснить изменением времени и вероятности открытого состояния канала и, следовательно, количеством проходящих ионов. Однако дальнейшее растяжение клеток не ведет к увеличению тока. Это может быть связано с тем, что согласно теории скорости реакции для ионных каналов (rate theory) через каждый канал не может течь больше определенного количества ионов, поскольку каналы моделируются как последовательность энергетических барьеров, через которые ион должен “перепрыгнуть”, что определяет явление насыщения скорости транспорта. Вместе с тем при растяжении клеток сердец в патологических состояниях (например, клеток гипертрофированного сердца) только на 2–4 мкм возникает такой же ток, как и при растяжении кардиомиоцитов сердец здоровых животных на 10 мкм [5, 6], и дальнейшее растяжение приводит к его увеличению. С одной стороны, это также можно было бы объяснить изменением функционирования MGCs в патологических условиях, однако, с другой стороны, с учетом ограничения потока ионов через канал в рамках теории скорости реакции, можно этот вопрос рассматривать с позиций увеличения экспрессии каналов [5], что увеличивает ток. В этой связи микрогравитация, прежде всего, должна оказывать влияние на уровень экспрессии MGCs и MSCs.
В данной работе при помощи технологии секвенирования РНК-транскриптома (RNA-seq technique) мы изучали изменение количества мРНК генов MGCs и MSCs у изолированных кардиомиоцитов желудочков крыс в контрольных условиях и на модели микрогравитации. С точки зрения сердечно-сосудистой системы подходящей моделью, применяемой значительным количеством авторов, является разгрузка задних конечностей грызунов [14]. Животное подвешивали к потолку клетки за хвост так, чтобы передние конечности опирались на пол, а задние не касались его, находясь под углом 30–40 градусов от пола. Животное могло свободно передвигаться по клетке [14]. В этом случае уровень кортикостерона, указывающего на степень стрессированности животного, не превышал уровня, регистрируемого у контрольных животных. Изолированные кардиомиоциты желудочков крыс получали по известному методу [15].
Самцы крыс линии Wistar массой 200 г, возрастом 2 мес в количестве 6 животных подвергались действию моделируемой микрогравитации в течение 7 дней. Контрольная группа из 6 животных размещалась в том же помещении. Все животные имели постоянный доступ к пище и воде. Температура в помещении была 24°C при 12-часовом световом и темновом цикле.
Исследования одобрены этическим комитетом ФГАОУ ВО Российского национального исследовательского медицинского университета им. Н.И. Пирогова МЗ РФ. Протокол № 14/2023, выписка от 24.05.2023.
Использовали технологию секвенирования РНК-транскриптома (RNA-seq technique). Из изолированных кардиомиоцитов РНК экстрагировали с применением TRIzol, хлороформа и набора RNeasy mini kit согласно протоколам производителей. Концентрация, чистота, количество и качество РНК определены с использованием Nanodrop, Qi RNA kit, флуориметра Qubit 4, dsDNA high sensitivity kit и High Sensitivity D5000 kit. Образцы подготовлены с NEB Ultra II RNA kit и NEBNext Poly(A) mRNA Magnetic Isolation. Полученные библиотеки нормализовали, количественно оценивали и наносили на S2 FlowCell с последующей загрузкой в NovaSeq 6000. Проведено RNA-seq в трех повторах. Сырые данные FASTQ оценивали качественно, обрезали адаптеры и выравнивали на референсный геном mRatBN7.2.108 с помощью FastQC, Trimmomatic, HISAT2 и SAMtools. Выравнивания передавались в HTSeq-count для подсчета транскриптов гена каналов.
Дифференциальную экспрессию анализировали с помощью DESeq2, где гены с вероятностью различия p < 0.05 признавались дифференциально экспрессированными. Эксперименты проводились в трех повторениях (как это общепринято), данные представлены как среднее значение ± стандартная ошибка среднего (SE).
Из общего числа транскриптов генов катион неселективных TRP каналов в кардиомиоцитах желудочков крыс в количествах, превышающих 10 транскриптов, присутствуют следующие MGCs: TRPM7, PKD1 (TRPP1) и PKD2 (TRPP2), TRPC1, TRPM4, TRPV2. Транскрипты других MGCs, в том числе TRPM3, TRPV4, TRPV1, TRPM3, TRPC5, TRPA1, TRPC6 присутствуют в крайне малых количествах и их изменения при моделировании микрогравитации также весьма небольшие, и нами не обсуждаются. После 7 дней моделируемой микрогравитации количество транскриптов генов для большинства MGCs TRP каналов меняется (рис. 1а). Наблюдается уменьшение транскриптов гена каналов TRPM7 (от 333 ± 31 до 234 ± 35, p < 0.05), которые функционируют как катионные каналы, проницаемые для Ca2+ при более отрицательных потенциалах. Также уменьшается количество транскриптов гена каналов TRPV2 (от 21 ± 2 до 4 ± 3, p < 0.001), функционирующих как проницаемые для Ca2+ и Na+ катионные каналы с отношением относительной проницаемости PCa/PNa, равной 2.94. Уменьшается и количество транскриптов гена каналов PKD2 (Polycystin-2), названных в классификации TRP как TRPP2 каналы (от 191 ± 35 до 86 ± 4, p < 0.0001). Однако увеличивается количество транскриптов гена каналов PKD1 или Polycystin-1 (TRPP1) (от 267 ± 17 до 508 ± 22, p < < 0.005). По мнению ряда авторов [16], которое впоследствии подтвердилось [17], TRPP2 сами по себе не образовывали функциональных каналов, но коэкспрессия Polycystin-1 и TRPP2 способствовала транслокации TRPP2 в плазматическую мембрану и комплекс TRPP1/TRPP2 продуцировал неселективные катионные токи с приоритетом для ионов Са2+. В этом случае можно допустить, что увеличение на 78% количества транскриптов гена каналов PKD1 нивелируется уменьшением на 55% количества транскриптов гена PKD2, и это не дает возможности формировать комплексы polycystin-1/TRPP2. В целом уменьшение экспрессии катион неселективных MGCs семейства TRP приводит к уменьшенному притоку в клетки Ca2+ и Na+. При этом не меняется число транскриптов генов каналов TRPC1 (от 147 ± 11 до 141 ± 11, P = NS) и TRPM4 (от 179 ± 6 до 200 ± 29, P = NS), но возможно изменение их экспрессии происходит в более поздние сроки.
Рис. 1.
Изменение количества транскриптов генов механоуправляемых (а) и механосенситивных (б) ионных каналов у кардиомиоцитов желудочков крыс в контроле (белые столбики) и при действии микрогравитации в модели в течение 7 дней (черные столбики).
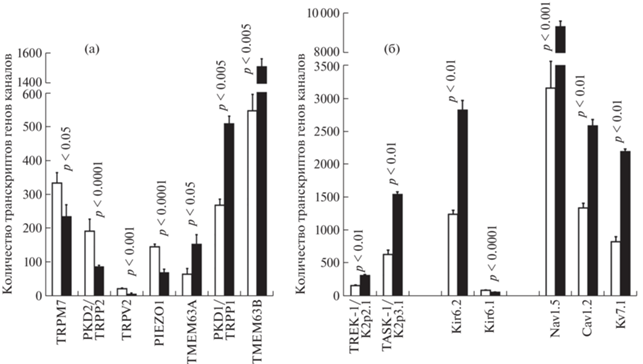
Кроме того, обнаружены транскрипты гена катион неселективных MGCs Piezo1 (рис. 1а). Их количество также как TRP при моделируемой микрогравитации уменьшается (от 145 ± 8 до 68 ± ± 10, p < 0.0001). Piezo1 открывается при различных механических раздражителях и опосредует приток Na+, Ca2+ и Mg2+ с небольшим предпочтением Ca2+. Уменьшение экспрессии Piezo1 каналов уменьшает, соответственно, потоки этих ионов и, прежде всего, Ca2+. Что касается Piezo2 каналов, то количество транскриптов их гена в контрольных условиях было незначительным, хотя эта величина, как и для Piezo1, уменьшалась (от 6 ± 1 до 2 ± 0.5, p < 0.05).
Среди других MGCs в значительном количестве присутствуют транскрипты генов каналов TMEM63A [18] и TMEM63B [19], катионных каналов с Cа2+ проницаемостью [20]. Моделируемая микрогравитация приводит к увеличению количества транскриптов генов каналов TMEM63B (от 564 ± 48 до 1509 ± 51, p < 0.005) и TMEM63A (от 63 ± 17 до 152 ± 27, p < 0.05) (рис. 1а). Это катионные каналы с Cа2+ проницаемостью, активируемые механической стимуляцией [19]. Столь выраженное увеличение количества транскриптов их генов на модели микрогравитации возможно является компенсаторным механизмом, включающимся при уменьшенной экспрессии TRP каналов.
Среди MSCs выделяют каналы с K+ проводимостью, к которым относятся TREK-1 (K2p2.1). Моделируемая микрогравитация приводит к увеличению количества транскриптов их генов (от 153 ± 11 до 311 ± 13, p < 0.01) (рис. 1б). Поскольку каналы TASK-1 (K2P3.1) преимущественно экспрессируются в предсердиях и представляют собой мишени для лечения фибрилляции предсердий, можно предположить их механосенситивность, которая еще не показана. Во всяком случае, при моделируемой микрогравитации количество транскриптов их генов значительно увеличивается (от 629 ± 64 до 1542 ± 34, p < 0.01) (рис. 1б). Увеличение количества транскриптов генов этих каналов с K+ проводимостью, принимающих участие в формировании потенциала покоя клеток, вероятно направлено на поддержание и стабилизацию выхода K+, что обеспечивает потенциал покоя в условиях измененного поступления Na+ и Ca2+.
Кроме того, к MSCs с K+ проводимостью относятся Kir6.2 и Kir6.1. Микрогравитация в модели приводит к существенному увеличению транскриптов гена каналов Kir6.2 (от 1240 ± 57 до 2825 ± 142, p < 0.01), однако количество транскриптов гена каналов Kir6.1 (рис. 1б) несколько уменьшается (от 82 ± 6 до 56 ± 3, p < 0.0001).
Среди потенциалуправляемых каналов (voltage gated channels) также присутствуют MSCs и количество транскриптов их генов меняется (рис. 1б). Так, количество транскриптов гена для потенциалуправляемых MSCs NaV1.5 выраженно увеличивается в результате микрогравитации в модели (от 3158 ± 405 до 9257 ± 167, p < 0.005). L-тип Ca2+ канала – CaV1.2 демонстрирует выраженную механосенситивность и количество транскриптов его гена существенно увеличивается (от 1336 ± 71 до 2582 ± 98, p < 0.01). Также к MSCs относится KV7.1, количество транскриптов гена которых также возрастает (от 821 ± 77 до 2195 ± 37, p < < 0.01).
На подавляющее большинство потенциалуправляемых каналов, не проявляющих чувствительности к механическому стрессу клеток, моделируемая микрогравитация не оказывает существенного влияния. Исключение составляют каналы KV7.2, количество транскриптов гена которых в контроле весьма высоко, но моделируемая микрогравитация вызывает их огромный прирост (от 11 272 ± ± 671 до 27 551 ± 1797, p < 0.01).
Что касается BK каналов (KCa1.1, ген KCNMA1), то наличие транскриптов их генов у изолированных кардиомиоцитов было весьма мало: 1.3 ± 0.8 в контроле и 1.0 ± 0.5 в результате моделируемой микрогравитации (p = NS).
Таким образом, было впервые показано, что микрогравитация в модели вызывает изменения в количестве транскриптов генов части MGCs и известных MSCs, но, за одним исключением, не затрагивает потенциалуправляемые и иные каналы без сенсора напряжения. Это потенциально приводит к изменению экспрессии белков MGCs и MSCs, что вызывает изменения суммарных токов через мембрану, а это приводит к изменению в работе сердца.
Список литературы
Ravens U. // Prog. Biophys. Mol. Biol. 2003. V. 82 (1–3). P. 255–266.
Craelius W., Chen V., El-Sherif N. // Biosci. Reports. 1988. V. 8 (5). P. 407–414.
Kamkin A., Kiseleva I., Wagner K.D., et al. // J. Mol. Cell. Cardiol. 2000. V. 32 (3). P. 465–477.
Kiseleva I., Kamkin A., Wagner K.D., et al. // Cardiovasc. Res. 2000. V. 45 (2). P. 370–378.
Kamkin A., Kiseleva I., Isenberg G. // Cardiovasc. Res. 2000. V. 48 (3). P. 409–420.
Kamkin A., Kiseleva I., Isenberg G. // Pflugers Archiv. 2003. V. 446 (2). P. 220–231.
Zhang Y.H., Youm J.B., Sung H.K., et al. // J. Physiol. 2000. V. 523 (3). P. 607–619.
Kamkin A., Kiseleva I., Wagner K.D., et al. // Pflugers Arch. 2003. V. 446 (3). P. 339–346.
Liu C., Zhong G., Zhou Y., et al. // Cell Prolif. 2020. V. 53 (3). P. e12783.
White R.J., Blomqvist C.G. // J. Appl. Physiol. 1998. V. 85 (2). P. 738–746.
Herault S., Fomina G., Alferova I., et al. // Eur. J. Appl. Physiol. 2000. V. 81 (5). P. 384–390.
Goldstein M.A., Edwards R.J., Schroeter J.P. // J. Appl. Physiol. (1985). 1992. V. 73 (2 Suppl). P. 94S–100S.
Kashihara H., Haruna Y., Suzuki Y., Kawakubo K., et al. // Acta Physiol. Scand. (Suppl.) 1994. V. 616. P. 19–26.
Zhong G., Li Y., Li H., et al. // Front. Physiol. 2016. V. 7: Art. 274.
Kamkin A.G., Kamkina O.V., Shim A.L., et al. // Physiol. Rep. 2022. V. 10 (7): Art. e15246.
Hanaoka K., Qian F., Boletta A., et al. // Nature 2000. V. 408 (6815). P. 990–994.
Delmas P., Nauli S.M., Li X., et al. // FASEB J. 2004. V. 18 (6). P. 740–742.
Yan H., Helman G., Murthy S.E., et al. // Am. J. Hum. Genet. 2019. V. 105 (5). P. 996–1004.
Wu D., Xu L., Cai W.M., et al. // J. Biol. Chem. 2023. V. 299 (1). P. 102781.
Marques M.C., Albuquerque I.S., Vaz S.H., et al. // Biochemistry. 2019. V. 58 (26). P. 2861–2866.
Дополнительные материалы отсутствуют.
Инструменты
Доклады Российской академии наук. Науки о жизни


 Пн.-пт.: 10.00-19.00