

Доклады Российской академии наук. Науки о жизни, 2023, T. 512, № 1, стр. 422-427
Некаталитические домены ДНК-полимеразы λ: влияние на активность фермента и ее регуляцию
Е. А. Мальцева 1, Н. И. Речкунова 1, академик РАН О. И. Лаврик 1, *
1 Институт химической биологии и фундаментальной медицины Сибирского отделения Российской академии наук
Новосибирск, Россия
* E-mail: lavrik@niboch.nsc.ru
Поступила в редакцию 25.04.2023
После доработки 10.05.2023
Принята к публикации 11.05.2023
- EDN: OZLFUZ
- DOI: 10.31857/S2686738923600358
Аннотация
ДНК-полимераза λ (Polλ) относится к тому же структурному Х-семейству, что и ДНК-полимераза β – основная полимераза процесса эксцизионной репарации оснований. Роль Polλ в этом процессе так и остается не до конца выясненной. Существенное отличие двух ДНК-полимераз заключается в наличии в структуре Polλ протяженного некаталитического N-концевого участка. Впервые детально исследовано влияние этого участка на взаимодействие Polλ с ДНК и многофункцинальными белками – поли(ADP-рибоза)полимеразой 1 (PARP1) и репликативным белком А (RPA). Полученные данные позволяют предположить, что некаталитические домены Polλ играют супрессорную роль как по отношению к полимеразной активности фермента, так и во взаимодействии с ДНК и PARP1.
ДНК-полимераза λ (Polλ) относится к структурному Х-семейству, как и ДНК-полимераза β (Polβ) – основная полимераза в системе эксцизионной репарации оснований (BER). Оба фермента обладают активностями, необходимыми для репаративного синтеза: катализируют синтез ДНК в бреши, в том числе на поврежденных матрицах, обладают 5'-dRP-лиазной активностью, а также способны вести синтез с вытеснением цепи [1, 2]. Polβ признана центральной в процессе заполнения однонуклеотидной бреши, возникающей в процессе BER, тогда как роль Polλ в этом процессе остается не до конца выясненной.
Исправление повреждений ДНК в процессе BER происходит в несколько стадий, на каждой из которых под действием определенных ферментов формируются специфические ДНК-интермедиаты. Важную роль в процессе играет координация действия ферментов на каждой стадии за счет взаимодействий с белками-партнерами, регулирующими их активность [3]. Один из ключевых белков-регуляторов репарации ДНК – поли(ADP-рибоза)полимераза 1 (PARP1) – при взаимодействии с поврежденной ДНК катализирует синтез полимера ADP-рибозы, используя в качестве субстрата NAD+. Ранее мы показали, что PARP1 модулирует активность Polβ на ДНК-интермедиатах коротко- и длиннозаплаточного путей BER [4]. С другой стороны, в присутствии ДНК-структур, содержащих однонуклеотидную брешь или ник, моделирующих интермедиаты BER на стадии ресинтеза ДНК, наблюдается стимуляция активности PARP1 репликативным белком A (RPA) [5]. Показано также, что RPA стимулирует активность Polλ, в том числе в процессе синтеза на поврежденной матрице [6]. Оба белка, PARP1 и RPA, присутствуют в клетке в значительных количествах и участвуют во многих процессах, поэтому мы исследовали их влияние на активность Polβ и Polλ, чтобы определить, может ли обнаруженный эффект стимуляции активности PARP1 в присутствии RPA проявляться в процессе репарационного синтеза.
Мы провели сравнительный анализ влияния PARP1 и реакции поли(ADP-рибозил)илирования на активность Polβ и Polλ в коротко- и длиннозаплаточных путях BER. Радиоактивно меченный ДНК-дуплекс, содержащий однонуклеотидную брешь с 5′-фосфатом (gap1-p-ДНК) инкубировали с ДНК-полимеразой и dNTP в различных концентрациях, при которых происходило встраивание одного нуклеотида либо наблюдался синтез ДНК с вытеснением цепи (рис. 1). Аналогичным образом проводили реакции в присутствии PARP1 и/или RPA, в отсутствие или в присутствии NAD+. Проведенный анализ показал, что PARP1 ингибирует активность обеих ДНК-полимераз, однако ингибирующий эффект зависит как от ДНК-полимеразы, так и от ее концентрации.
Рис. 1.
Влияние PARP1, синтеза поли(ADP-рибозы), RPA и совместного присутствия PARP1 и RPA на активность ДНК-полимераз β и λ в реакции застраивания однонуклеотидной бреши и синтеза с вытеснением цепи. Анализ продуктов реакции в денатурирующем 10%‑м ПААГ. Радиоактивно меченный (по 5’-концу праймера) ДНК-дуплекс (20 нМ), содержащий однонуклеотидную брешь с 5'-фосфатом (gap1-p-ДНК), инкубировали с ДНК-полимеразой и dNTP в указанных концентрациях при 25°С в течение 30 мин в присутствии PARP1 и/или RPA, в отсутствие или в присутствии NAD+ (как обозначено на рисунке). Все реакционные смеси содержали 50 мМ Трис-HCl, pH 7.5 (25°C), 50 мМ NaCl, 5 мМ MgCl2 и 50 мкг/мл БСА.
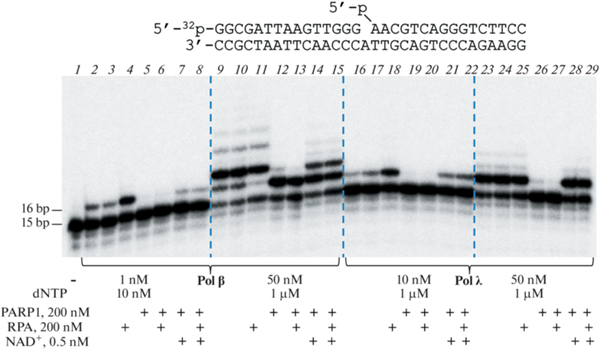
Для Polβ в условиях встраивания одного нуклеотида наблюдалось практически полное ингибирование реакции (рис. 1, дор. 5), тогда как при более высокой концентрации ДНК-полимеразы белок PARP1 подавлял только синтез с вытеснением цепи и практически не влиял на встраивание первого нуклеотида (рис. 1, дор. 12). В случае Polλ наблюдалось практически полное ингибирование не только синтеза с вытеснением цепи, но и включения нуклеотида в брешь (рис. 1, дор. 19 и 26). Следует отметить, что Polλ существенно менее эффективна в реакции синтеза с вытеснением цепи, чем Polβ (рис. 1, сравнить дор. 9, 10 и 23, 24), как было показано ранее [7, 8]. В присутствии NAD+ ингибирующий эффект PARP1 значительно снижался, особенно в случае реакции заполнения бреши, катализируемой Polλ (дор. 21). Добавление в реакционные смеси RPA также приводило к разным эффектам – при низкой концентрации ДНК-полимераз RPA стимулировал их активность (рис. 1, дор. 4 и 18), а при высокой – ингибировал, в большей степени через влияние на встраивание первого нуклеотида, чем на синтез с вытеснением цепи (рис. 1, дор. 11 и 25). При совместном добавлении PARP1 и RPA, даже в условиях встраивания одного нуклеотида RPA не только не снимал ингибирующий эффект PARP1, но даже умеренно его усиливал, как в отсутствие (рис. 1, дор. 6, 13, 20, 27), так и в присутствии NAD+ (рис. 1, дор. 8, 15, 22, 29). Таким образом, активность Polβ и Polλ может модулироваться белками PARP1 и RPA в зависимости от соотношения концентраций этих белков. Однако влияние стимуляции PARP1 в присутствии RPA на активность ДНК-полимераз в явном виде в наших экспериментах не проявилось.
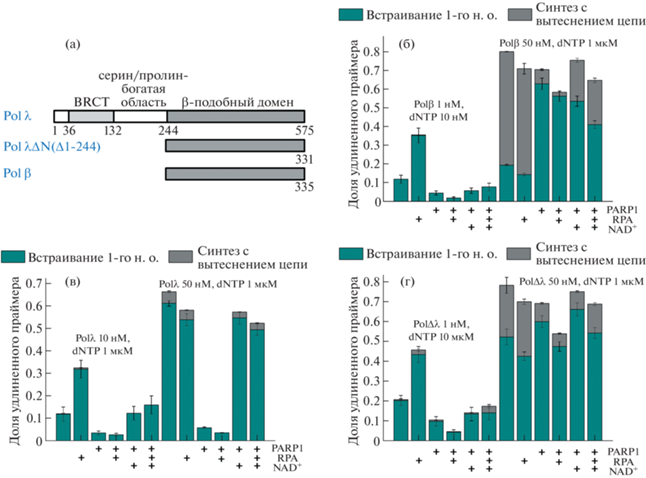
Основное отличие исследуемых ДНК-полимераз заключается в наличии в структуре Polλ протяженного некаталитического N-концевого участка, включающего BRCT-домен и серин/пролин-богатую область (рис. 2a). С одной стороны, эти домены влияют на каталитическую активность фермента, а с другой – могут участвовать в белок-белковых взаимодействиях с другими факторами репарации и подвергаться посттрансляционным модификациям [9–11]. Возможно, разница во влиянии PARP1 на активности Polβ и Polλ вызвана в том числе взаимодействием этого белка с некаталитическим участком Polλ. В связи с этим была получена мутантная форма Polλ∆N, содержащая только каталитический β-подобный домен (удалены 244 аминокислоты с N-конца) [12, 13]. Следует отметить, что удаление некаталитического участка привело к увеличению активности фермента в реакции заполнения бреши в gap1-p-ДНК практически до уровня Polβ (рис. 2, сравнить панели б и г). Эффективность синтеза с вытеснением цепи, катализируемого Polλ∆N, также значительно увеличилась по сравнению с полноразмерной Polλ. Как видно из диаграмм, представленных на рис. 2, влияние PARP1 и RPA на активность Polλ∆N в большей степени совпадает с характером влияния этих белков на Polβ, чем на Polλ. Таким образом, некаталитические домены Polλ влияют не только на активность фермента, но и на регуляцию этой активности.
Рис. 2.
Влияние PARP1, синтеза поли(ADP-рибозы), RPA и совместного присутствия PARP1 и RPA на активность ДНК-полимераз β, λ и λΔN в реакции застраивания однонуклеотидной бреши и синтеза с вытеснением цепи. (а) Схематическое изображение доменной структуры Polβ, Polλ и Polλ∆N. BRCT-домен – С-концевой домен BRCA1. (б, в и г) Доля удлиненного праймера, определенная как отношение интенсивности продуктов реакции к интенсивности исходного праймера, для реакции, катализируемой Polβ, Polλ и PolλΔN соответственно. Радиоактивно меченный (по 5’-концу праймера) ДНК-дуплекс (20 нМ), содержащий однонуклеотидную брешь с 5′-фосфатом (gap1-p-ДНК), инкубировали с ДНК-полимеразой и dNTP в указанных концентрациях при 25°С в течение 30 мин в присутствии 200 нМ PARP1 и/или 200 нМ RPA, в отсутствие или в присутствии 0.5 мМ NAD+ (как обозначено на рисунке). Все реакционные смеси содержали 50 мМ Трис-HCl, pH 7.5 (25°C), 50 мМ NaCl, 5 мМ MgCl2 и 50 мкг/мл БСА.
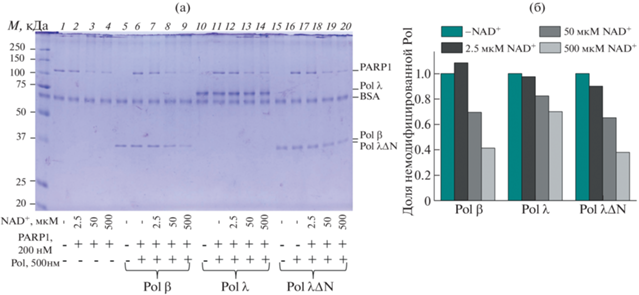
Далее было проведено сравнение эффективности поли(ADP-рибозил)ирования исследуемых ДНК-полимераз в присутствии gap1-p-ДНК. Выявлено, что Polλ в сравнении с Polβ является менее эффективной мишенью для модификации (следили за уменьшением количества немодифицированной ДНК-полимеразы при увеличении концентрации NAD+). Удаление некаталитического участка приводит к увеличению эффективности модификации – уровень модификации Polλ∆N практически не отличается от уровня модификации Polβ (рис. 3). Присоединение отрицательно заряженной поли(ADP-рибозы) значительно ослабляет связывание белков с ДНК, уменьшая эффективную концентрацию ДНК-полимераз. Можно предположить, что именно этот эффект приводит к существенному ослаблению эффективности синтеза с вытеснением цепи для всех ДНК-полимераз в условиях синтеза поли(ADP-рибозы).
Рис. 3.
Сравнение эффективности поли(ADP-рибозил)ирования ДНК-полимераз β, λ и λ∆N. Анализ продуктов поли(ADP-рибозил)ирования Polβ, Polλ и Polλ∆N в денатурирующем 12.5%-м SDS-ПААГ после окрашивания Кумасси R250 (а) и зависимость доли немодифицированных ДНК-полимераз (отношение интенсивности полос в геле (а), соответствующих немодифицированной ДНК-полимеразе в присутствии и в отсутствие NAD+) от концентрации NAD+ (б). 200 нМ PARP1 инкубировали с 500 нМ ДНК-полимеразой в присутствии 20 нМ ДНК-дуплекса, содержащего однонуклеотидную брешь с 5'-фосфатом (gap1-p-ДНК), и 1 мкМ dNTP при 25°С в течение 30 мин в отсутствие или в присутствии NAD+ в указанных концентрациях (как обозначено на рисунке). Все реакционные смеси содержали 50 мМ Трис-HCl, pH 7.5 (25°C), 50 мМ NaCl, 50 мкг/мл БСА и 5 мМ MgCl2.
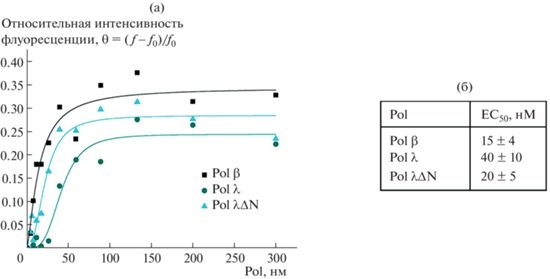
Отличия во влиянии PARP1 на ДНК-полимеразы могут быть также обусловлены белок-белковыми взаимодействиями. Взаимодействие Polβ и PARP1 показано ранее [4, 14, 15], тогда как для Polλ такие исследования не проводились. Предполагалось, что наличие BRCT-доменов в структурах Polλ и PARP1 может внести значительный вклад во взаимодействие между этими белками. Был получен препарат флуоресцентно меченной по N-концевой аминогруппе PARP1 (Cy3-PARP1) и оценено взаимодействие этого белка с ДНК-полимеразами методом флуоресцентного титрования. Результаты измерений показали, что эффективности взаимодействия Polβ и Polλ∆N с PARP1 сопоставимы и практически в два раза выше по сравнению с полноразмерной Polλ (рис. 4), что, с одной стороны, согласуется с эффективностью поли(ADP-рибозил)ирования ДНК-полимераз, а с другой – указывает на возможные взаимодействия PARP1 и ДНК-полимераз на ДНК. Однако обнаруженная разница все же недостаточна, чтобы однозначно сделать вывод о том, участвует ли некаталитический участок Polλ в связывании с PARP1, или связывание осуществляется преимущественно за счет β-подобного домена. Кроме того, следует иметь в виду, что Polβ и Polλ∆N не являются полностью идентичными, и их каталитические домены могут по-разному взаимодействовать с PARP1 и другими факторами репарации.
Рис. 4.
Сравнение эффективности связывания PARP1 c ДНК-полимеразами β, λ и λ∆N. Кривые титрования флуоресцентно меченной Cy3-PARP1 (10 нМ) Polβ, Polλ и Polλ∆N в возрастающих концентрациях (а) и значения EC50 для комплексов PARP1 с ДНК-полимеразами, рассчитанные с помощью уравнения Хилла (б). Уравнение Хилла: $\theta = {{\theta }_{\infty }}\left[ {1 + {{{({\text{E}}{{{\text{C}}}_{{50}}}{\text{/C)}}}}^{{\text{n}}}}} \right]$ , где θ – относительная интенсивность флуоресценции PARP1 в комплексе с ДНК-полимеразой в концентрации C; θ∞ – максимальное значение относительной интенсивности флуоресценции PARP1 в комплексе с ДНК-полимеразой (в насыщающих концентрациях), EC50 – концентрация ДНК-полимеразы, при которой θ = θ∞/2; n – коэффициент Хилла (угол наклона кривой). Относительная интенсивность флуоресценции θ = (f–f0)/f0, f и f0 – интенсивности флуоресценции PARP1 в присутствии и в отсутствие ДНК-полимеразы соответственно. Все реакционные смеси содержали 25 мМ Трис-HCl, pH = 7.5 (25°C), 50 мМ NaCl, 0.5 мМ DTT.
Суммируя полученные данные, мы предполагаем, что в отсутствие NAD+ ингибирующий эффект PARP1 на активность Polβ и Polλ вызван преимущественно конкуренцией за ДНК, но при этом за счет белок-белковых взаимодействий с PARP1 ДНК-полимеразы могут удерживаться на ДНК-субстрате, что снижает эффективность ингибирования. При добавлении NAD+ PARP1 автополи(ADP-рибозил)ируется и высвобождает ДНК, что приводит к практически полному восстановлению активности ДНК-полимераз, а остаточный ингибирующий эффект объясняется поли(ADP-рибозил)ированием ДНК-полимераз, ослабляющим связывание ДНК-полимераз с ДНК. Влияние PARP1 на активность Polβ и Polλ принципиально схоже, но отличается по силе воздействия. Эта разница обусловлена, по-видимому, наличием в структуре Polλ протяженного некаталитического N-концевого участка. Согласно литературным данным, этот участок не участвует в связывании ДНК напрямую [12], но при этом влияет на сродство полноразмерной ДНК-полимеразы к ДНК. Так, ранее было показано, что сродство Polλ к однонуклеотидной бреши в 3 раза ниже, чем Polβ, 90 нМ и 30 нМ соответственно [16]. Кроме того, наличие этого участка ингибирует белок-белковые взаимодействия между Polλ и PARP1. Как результат, Polλ более “чувствительна” к влиянию PARP1, чем Polβ, поскольку менее эффективно конкурирует с PARP1 за ДНК-субстрат и менее эффективно удерживается на ДНК за счет взаимодействия с PARP1.
Таким образом, некаталитические домены Polλ играют супрессорную роль как по отношению к полимеразной активности фермента, так и во взаимодействии с ДНК и PARP1. Это может быть одной из причин ключевой роли Polβ в BER в сравнении с Polλ [17].
Список литературы
Belousova E.A., Lavrik OI. DNA polymerases β and λ and their roles in cell. // DNA Repair (Amst). 2015. V. 29. P. 112–126.
Beard W.A., Wilson S.H. DNA polymerase beta and other gap-filling enzymes in mammalian base excision repair. // Enzymes. 2019. V. 45. P. 1–26.
Carter R.J., Parsons J.L. Base Excision Repair, a Pathway Regulated by Posttranslational Modifications. // Mol Cell Biol. 2016. V. 36. № 10. P. 1426–37.
Sukhanova M., Khodyreva S., Lavrik O. Poly(ADP-ribose) polymerase 1 regulates activity of DNA polymerase beta in long patch base excision repair. // Mutat Res. 2010. V. 685. № 1–2. P. 80–9.
Maltseva E.A., Krasikova Y.S., Sukhanova M.V., et al. Replication protein A as a modulator of the poly(ADP-ribose)polymerase 1 activity. // DNA Repair (Amst). 2018. V. 72. P. 28–38.
Maga G., Crespan E., Wimmer U., et al. Replication protein A and proliferating cell nuclear antigen coordinate DNA polymerase selection in 8-oxo-guanine repair. // Proc Natl Acad Sci U S A. 2008. V. 105. № 52. P. 20689–94.
Lebedeva N.A., Rechkunova N.I., Dezhurov S.V., et al. Comparison of functional properties of mammalian DNA polymerase lambda and DNA polymerase beta in reactions of DNA synthesis related to DNA repair. // Biochim Biophys Acta. 2005. V. 1751. № 2. P. 150–8.
Thapar U., Demple B. Deployment of DNA polymerases beta and lambda in single-nucleotide and multinucleotide pathways of mammalian base excision DNA repair. // DNA Repair (Amst). 2019. V. 76. P. 11–19.
Fiala K.A., Duym W.W., Zhang J., et al. Up-regulation of the fidelity of human DNA polymerase lambda by its non-enzymatic proline-rich domain. // J Biol Chem. 2006. V. 281. № 28. P. 19038–44.
Taggart D.J., Dayeh D.M., Fredrickson S.W., et al. N-terminal domains of human DNA polymerase lambda promote primer realignment during translesion DNA synthesis. // DNA Repair (Amst). 2014. V. 22. P. 41–52.
Braithwaite E.K., Kedar P.S., Lan L., et al. DNA polymerase lambda protects mouse fibroblasts against oxidative DNA damage and is recruited to sites of DNA damage/repair. // J Biol Chem. 2005. V. 280. № 36. P. 31641–7.
Shimazaki N., Yoshida K., Kobayashi T., et al. Over-expression of human DNA polymerase lambda in E. coli and characterization of the recombinant enzyme. // Genes Cells. 2002. V. 7. № 7. P. 639–51.
Blanca G., Shelev I., Ramadan K., et al. Human DNA polymerase λ diverged in evolution from DNA polymerase β toward specific Mn++ dependence: a kinetic and thermodynamic study. // Biochemistry 42 (2003) 7467–7476.
Prasad R., Williams J.G., Hou E.W., et al. Pol β associated complex and base excision repair factors in mouse fibroblasts. // Nucleic Acids Res. 2012. V. 40. № 22. P. 11571–82.
Moor N.A., Vasil’eva I.A., Anarbaev R.O., et al. Quantitative characterization of protein-protein complexes involved in base excision DNA repair. // Nucleic Acids Res. 2015. V. 43. № 12. P. 6009–22.
Howard M.J., Horton J.K., Zhao M.L., et al. Lysines in the lyase active site of DNA polymerase β destabilize nonspecific DNA binding, facilitating searching and DNA gap recognition. // J Biol Chem. 2020. V. 295. № 34. P. 12181–12187.
Jelezcova E., Trivedi R.N., Wang X.H., Tang J.B., et al. Parp1 activation in mouse embryonic fibroblasts promotes Pol beta-dependent cellular hypersensitivity to alkylation damage. // Mutat Res. 2010. V. 686. № 1–2. P. 57–67.
Дополнительные материалы отсутствуют.
Инструменты
Доклады Российской академии наук. Науки о жизни


 Пн.-пт.: 10.00-19.00