

Доклады Российской академии наук. Науки о жизни, 2023, T. 512, № 1, стр. 474-479
Зубная аномалия у Hapalodectes dux (Hapalodectidae, mesonychia) из позднего палеоцена Монголии
Академик РАН А. В. Лопатин 1, *
1 Палеонтологический институт им. А.А. Борисяка Российской академии наук
Москва, Россия
* E-mail: alopat@paleo.ru
Поступила в редакцию 30.06.2023
После доработки 09.07.2023
Принята к публикации 09.07.2023
- EDN: SRNBWU
- DOI: 10.31857/S2686738923700361
Аннотация
Голотип Hapalodectes dux Lopatin, 2001 из верхнего палеоцена Монголии (местонахождение Цаган-Хушу, свита наран-булак, пачка жигден) – нижняя челюсть с полными зубными рядами, демонстрирующая заросшие альвеолы на месте правого P3. Исследование голотипа на рентгеновском микротомографе показало редкую зубную аномалию, ранее неизвестную у ископаемых млекопитающих – наличие инвертированного (перевернутого корнями вверх и лингвальной стороной лабиально) импактного премоляра внутри нижнечелюстной кости. Причиной этой аномалии могли быть аберрация положения зубной закладки или травмирующее воздействие.
В 2001 г. из палеоцена Монголии мной был описан новый вид мезонихий из семейства гапалодектид – Hapalodectes dux Lopatin, 2001 [1]. Этот вид представлен только голотипом – хорошо сохранившейся нижней челюстью с полными зубными рядами из пачки жигден свиты наран-булак местонахождения Цаган-Хушу в Южной Гоби.
В нижней челюсти H. dux правый зубной ряд демонстрирует отсутствие предпоследнего премоляра P3 и наружную облитерацию обеих его альвеол (тогда как левый P3 нормально развит). Альвеолярная сторона кости на месте правого P3 имеет хорошо заметные неровности и мелкие поверхностные углубления, которые интерпретируются как следы зарастания зубных лунок [1]. Проведенная при первичном исследовании рентгенография образца подтвердила реоссификацию альвеол после прижизненной утраты находившегося в них зуба [1]. Однако на использованном тогда радиовидеографическом устройстве (Trophy Radiologie Irix 70) не удалось полноценно зафиксировать детали внутреннего строения нижнечелюстной кости. Предпринятое в 2023 г. переизучение голотипа H. dux с помощью рентгеновского микротомографа позволило установить наличие у него уникальной зубной аномалии, ранее неизвестной у ископаемых млекопитающих – внутри зубной кости находится непрорезавшийся P3, перевернутый корнями вверх. Ниже приведено подробное описание выявленной аномалии.
Фаунистический комплекс пачки жигден датируется поздним палеоценом (гашатием) [2, 3]. H. dux был описан как древнейший представитель рода [1]; позже из Китая стали известны еще два палеоценовых вида Hapalodectes – H. lopatini Solé et al., 2017 (средний палеоцен, ноншаний) и H. paleocenus Beard et al., 2010 (поздний палеоцен, гашатий) [4, 5]. Гапалодектиды (Hapalodectidae) рассматриваются как группа специализированных мелких мезонихий (Mesonychia) с ярко выраженными плотоядными адаптациями в строении зубной системы [1, 5].
Голотип Hapalodectes dux хранится в Палеонтологическом институте им. А.А. Борисяка РАН (ПИН, № 3104/371) в Москве. Его детальное морфологическое описание приведено ранее [1]. Иллюстрации подготовлены при помощи цифрового фотоаппарата Nikon D800 с объективом AF-S Micro NIKKOR 60mm f/2.8G ED и рентгеновского микротомографа Neoscan N80 в ПИН. Параметры сканирования: 101 кВ, 159 мкА, размер пикселя 20 мкм, поворот на 180° с шагом 0.2°, фильтр Cu 0.5 мм. Рентгенографические изображения (2800 × 2400 пикселей) обработаны с использованием программного обеспечения Neoscan; 3D модель визуализирована с помощью CTvox (Bruker microCT).
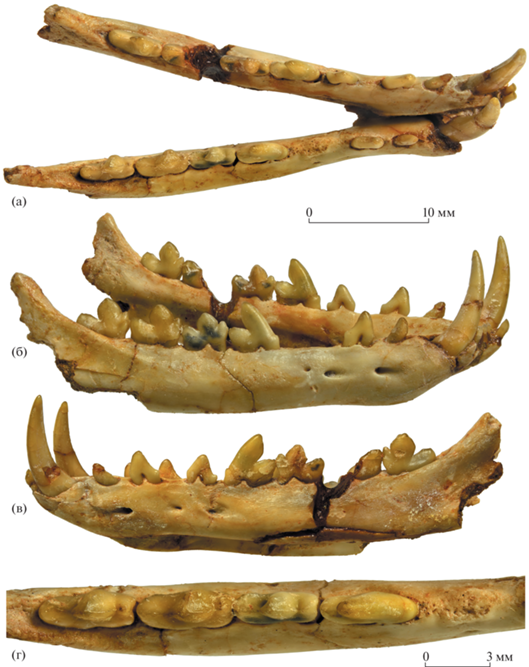
Нижняя челюсть немного деформирована, ее половины разобщены в симфизе и несколько смещены друг относительно друга (рис. 1). Левая горизонтальная ветвь сильно разрушена в области передней части M2. Большая часть восходящей ветви отломана. Зубные ряды I1–I3C1P1–P4M1–M3 хорошо сохранились; в левом зубном ряду обломаны коронка I3 и тригонид М2, в правом – отсутствует P3 с его зубными лунками (рис. 1а, 1б, 1г).
Рис. 1.
Hapalodectes dux Lopatin, 2001, голотип ПИН, № 3104/371, нижняя челюсть: а – с окклюзиальной стороны; б – с правой латеральной стороны; в – с левой латеральной стороны; г – правые P4–M3 и заросшие альвеолы DP3 с окклюзиальной стороны; Монголия, Цаган-Хушу; верхний палеоцен, свита наран-булак, пачка жигден.
На рентгенографических изображениях (рис. 2) и компьютерных томографических срезах (рис. 3, 4) видны крупные нижнечелюстные каналы и нормально развитые корни всех зубов, находящихся в зубных рядах. Внутри нижнечелюстной кости непосредственно спереди от переднего корня правого P4 идентифицируется непрорезавшийся двухкорневой предкоренной зуб P3 (рис. 2–4), не проявляющийся снаружи. Этот зуб полностью соответствует нормально развитому левому P3 по размерам11, форме и строению коронки и корней (см. рис. 1в, 2а), но при этом он перевернут коронкой вниз и корнями вверх. Лингвальная сторона аномального премоляра в его перевернутом положении обращена к лабиальной стороне правой нижнечелюстной кости (лабиальная сторона зуба, соответственно, обращена лингвально), вершина главного бугорка направлена постеровентрально, а передняя сторона коронки развернута вентрально. Таким образом, от нормального положения зуб повернут лабиовентрально почти на 180° и при этом сдвинут вентрально и дистально.
Рис. 2.
Hapalodectes dux Lopatin, 2001, голотип ПИН, № 3104/371, нижняя челюсть с правой латеральной стороны, рентгенография: а – часть нижней челюсти от I1 до M1; б – область правых P3–M1 (инвертированный P3 внутри нижнечелюстной кости); Монголия, Цаган-Хушу; верхний палеоцен, свита наран-булак, пачка жигден.
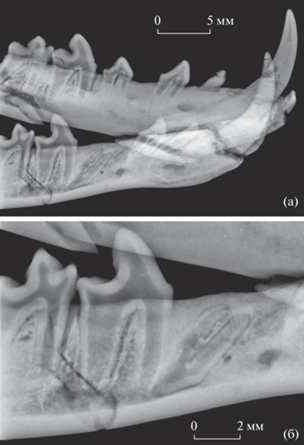
Рис. 3.
Hapalodectes dux Lopatin, 2001, голотип ПИН, № 3104/371, нижняя челюсть, компьютерная трехмерная модель с дорсальной стороны: а – общий вид; б – фронтальный срез немного вентральнее альвеолярного края (в области правого P3 видны сечение замурованного в костной ткани переднего корня выпавшего DP3 и конец заднего корня инвертированного P3); в – фронтальный срез немного дорсальнее нижнечелюстного канала правой нижнечелюстной кости (антеролабиальнее сечения переднего корня P4 находится сечение главного бугорка инвертированного P3); Монголия, Цаган-Хушу; верхний палеоцен, свита наран-булак, пачка жигден.
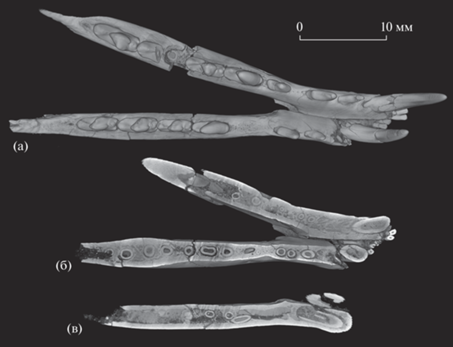
Рис. 4.
Hapalodectes dux Lopatin, 2001, голотип ПИН, № 3104/371, нижняя челюсть, компьютерная трехмерная модель c правой латеральной стороны: а – общий вид; б – сагиттальный срез правой нижнечелюстной кости; Монголия, Цаган-Хушу; верхний палеоцен, свита наран-булак, пачка жигден.
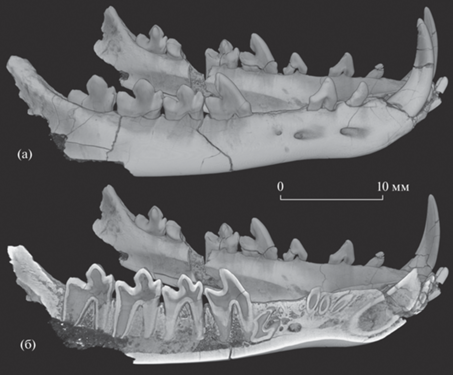
Концы корней перевернутого P3 направлены антеродорсально. Передний корень прямой, а конец заднего корня немного загнут вперед (рис. 2б), что указывает на его формирование после зарастания отверстий альвеол. Почти на всем протяжении каждый корень заключен в костную ткань (рис. 2, 3б, 4б), лишь вблизи основания коронки между корнями наблюдается небольшая полость. Наиболее вентральное положение внутри кости занимают вершина и передний (для нормального P3) склон главного бугорка аномального зуба. Эта часть коронки аномального P3 погружена в нижнечелюстной канал (но немного не достигает его дна), а вершина главного бугорка примыкает к антеролабиальной стороне верхушки переднего корня P4 (рис. 2б, 3в, 4б). При этом относительно продольной оси зубного ряда непрорезавшийся P3 смещен лабиально (вплотную к лабиальной стенке нижнечелюстной кости) и немного развернут лингвально (рис. 3в).
Пульпарная полость и корневые каналы непрорезавшегося P3 нормально развиты, признаков морфологических отклонений или повреждений у его коронки и корней не отмечено.
Альвеолярный край нижнечелюстной кости спереди от правого P4 (над перевернутым непрорезавшимся P3) несет продольно вытянутую овальную площадку с неровной поверхностью, на которой фиксируются следы регенерации костной ткани в виде многочисленных мелких ямок и пор (рис. 1а, 1г, 3а). На компьютерных томографических срезах видно, что вблизи альвеолярной стороны нижнечелюстной кости в регенерированной пористой костной ткани замурован небольшой обломок тонкого зубного корня (рис. 3б, 4б). Он находится под передней частью упомянутой выше площадки альвеолярного края, ориентирован субвертикально и своим концом почти достигает верхушки переднего корня перевернутого P3 (рис. 4б). Присутствие непрорезавшегося P3 внутри нижнечелюстной кости свидетельствует, что заросшие зубные лунки и инкапсулированный костной тканью корневой фрагмент принадлежали зубу молочной смены – DP3. Таким образом, после зарастания альвеол DP3 в реоссифицированной области остался терминальный фрагмент переднего корня этого зуба, что может указывать на травматический характер его утраты. Сохранение в челюстях обломков корней утраченных премоляров (в том числе молочных) нередко отмечается у современных хищных ([6], рис. 9). Нарушения в процессе смены молочных предшественников могут вызывать ретенцию (задержку прорезывания) и эктопию (смещение пути прорезывания) замещающих постоянных зубов [7].
По классификации нарушений развития зубов млекопитающих [7] отмеченная зубная аномалия Hapalodectes dux является импакцией – патологическим нарушением (задержкой и остановкой) процесса прорезывания зуба из-за наличия препятствия. Описанная аномалия уникальна положением импактного зуба, перевернутого корнями вверх и полностью скрытого внутри нижнечелюстной кости.
Поскольку данные о зубных патологиях у вымерших групп млекопитающих довольно ограничены [1, 8–12], для анализа природы изученной аномалии были привлечены также сведения по современным млекопитающим [7, 13–17].
Внешне аналогичное состояние – аномальное отсутствие двухорневого премоляра (P2) в одной из половин нижней челюсти при наличии нормально развитого контралатерального зуба, установлено у палеоценового Deltatherium fundaminus Cope, 1881 из торрехона юго-запада США ([8], рис. 3, 4). На основании сильного углубления (патологической деградации) альвеолярного края в области отсутствующего P2 и наличия вздутия на лабиальной стороне кости предполагается болезненное состояние нижнечелюстной ветви указанного экземпляра [8, 11], однако рентгенографические данные по нему отсутствуют.
У современных млекопитающих (в частности, приматов, хищных и сумчатых) импактные последние (реже предпоследние) нижние моляры бывают сильно повернуты антеровентрально относительно нормального положения – при этом они, как правило, наклонены мезиально лишь на 45–90° ([7], рис. 10.34, 10.70, 10.73, 10.75, 10.91, 10.103, 10.113, 10.114, 11.26, 15.19; [13], рис. 6, 7). Для приматов отмечены случаи сильнее перевернутых импактных M3 – с антеровентральным наклоном около 130–140° ([13], рис. 1, 8). Задние моляры обычно прорезываются последними в зубном ряду (причем из наклонного положения), поэтому предшествующие сбои в процессе зубной смены могут приводить к недостатку свободного пространства, вызывающему их импакцию и эктопию [7].
У парнокопытных известны случаи постеролабиальной ротации полупрорезавшегося M3 на 90° (зуб развернут поперек оси зубного ряда, а тело нижней челюсти в этом месте патологически расширено) и сильного лингвального наклона прорезавшегося M3 ([16], рис. 1B, 1C). Лингвальный наклон отмечен также для прорезавшихся M3 и импактных M3 приматов ([13], рис. 7, 9).
Небольшой дистальный наклон импактного P4 отмечен у хищных ([7], рис. 11.25) и грызунов ([7], рис. 14.6). Аномальный полностью прорезавшийся P2, развернутый передним концом назад (ротация 180°), описан у современного Canis cf. latrans Say, 1823 [14].
Импакция резцов и премоляров у млекопитающих с плотно расположенными зубами довольно часто бывает обусловлена преждевременной потерей молочных предшественников этих зубов (в результате травмы или заболевания) с последующим компенсаторным сближением (вплоть до смыкания) коронок соседних зубов (обычно за счет мезиального смещения и наклона более дистального зуба), препятствующим прорезыванию замещающего зуба постоянной смены; при этом импактный зуб остается внутри челюсти в своем нормальном первичном положении или немного отклоняется латерально [7, 12].
Все вышеизложенное иллюстрирует разнообразие типов и факторов импакции, однако эктопия (гетеротопия) зубов с полным или почти полным вертикальным переворотом (инверсия) как причина данного явления фиксировалась ранее только у людей.
У людей инвертированные (перевернутые) импактные зубы (молочные резцы, верхние постоянные клыки, верхние и нижние постоянные премоляры и последние моляры, а также сверхкомплектные зубы) в редких случаях наблюдаются в медицинской практике [18–20]. Особенно редки инверсии премоляров [18, 19]. Причинами данных нарушений считаются: (1) расстройства питания и эндокринной системы; (2) воспаление фолликулярного зубного мешочка; (3) травмы или сильные воздействия на пораженный участок во время роста зуба; (4) дальнейший переворот импактных зубов под влиянием внешних сил; (5) первичное аберрантное (инвертированное) положение закладки зуба на стадии ее формирования [19].
Очевидно, голотип Hapalodectes dux демонстрирует именно случай инвертированной импакции нижнего премоляра. Внешних или внутренних признаков каких-либо болезненных проявлений на исследованной нижней челюсти не обнаружено, поэтому наиболее вероятной причиной инвертированной импакции P3 можно считать аберрацию положения зубной закладки на стадии образования.
Альтернативное объяснение заключается в травмирующем воздействии на не вполне сформированный (в корневой части) нормальный или импактный непрорезавшийся P3, находившийся в костной крипте. Данное повреждение, вызвавшее аномальное положение (инверсию) этого зуба, могло быть ассоциировано с травматическим или естественным выпадением DP3. В дальнейшем в результате регенерации костной ткани произошли наружная облитерация альвеолярных отверстий DP3 и полное зарастание инвертированного P3.
Список литературы
Лопатин А.В. Древнейший Hapalodectes (Mesonychia, Mammalia) из палеоцена Монголии // Палеонтологический журнал. 2001. № 4. С. 90–96.
Бадамгарав Д., Решетов В.Ю. Палеонтология и стратиграфия палеогена Заалтайской Гоби. М.: Наука, 1985 (Тр. ССМПЭ. Вып. 25).
Lopatin A.V. Early Paleogene insectivore mammals of Asia and establishment of the major groups of Insecti-vora // Paleontological Journal. 2006. V. 40. Suppl. 3. P. S205–S405.
Beard K.C., Wang Y.-Q., Meng J. et al. Paleocene Hapalodectes (Mammalia: Mesonychia) from Subeng, Nei Mongol: further evidence of “East of Eden” dispersal at the Paleocene-Eocene boundary // Vertebrata PalAsiatica. 2010. V. 48. № 4. P. 375–389.
Solé F., De Bast E., Yang J. et al. The first species of Hapalodectes (Mesonychia, Mammalia) from the middle Paleocene of China (Qianshan Basin, Anhui Province) sheds light on the initial radiation of hapalodectids // Palaeontology. 2017. V. 60. № 3. P. 433–449.
Charlier C. Intraoral radiographs: identifying common pathology // Today’s Veterinary Practice. 2022 (July–August). P. 86–96.
Miles A.E.W., Grigson C. Colyer’s variations and diseases of the teeth of animals. Cambridge: Cambridge University Press, 1990.
Wilson R.W. Two cases of dental anomaly in Early Tertiary mammals // Transactions of the Kansas Academy of Science. 1955. V. 58. № 4. P. 514–518.
Rose K.D., Smith B.H. Dental anomaly in the Early Eocene condylarth Ectocion // Journal of Paleontology. 1979. V. 53. № 3. P. 756–760.
Lucas S.G., Schoch R.M. Paleopathology of Early Cenozoic Coryphodon (Mammalia; Pantodonta) // Journal of Vertebrate Paleontology. 1987. V. 7. № 2. P. 145–154.
Libed S.A., Lucas S.G. Paleopathology of a Paleocene periptychid (Mammalia; Condylarthra) jaw from the San Juan Basin, New Mexico // New Mexico Museum of Natural History and Science Bulletin. 2000. № 16. P. 151–153.
Лопатин А.В. Аномалии зубной системы у Nesophontidae (Lipotyphla, Mammalia) из плейстоцена Кубы // Доклады Российской академии наук. Науки о жизни. 2021. Т. 497. С. 125–130.
Colyer F. Variations of the teeth of the green monkey in St. Kitts // Proceedings of the Royal Sociey of Medicine. 1948. V. 41. P. 845–848.
Fine M.D. An abnormal P2 in Canis cf. C. latrans from the Hagerman fauna of Idaho // Journal of Mammalogy. 1964. V. 45. № 3. P. 483–485.
Vilà C., Urios V., Castroviejo J. Tooth losses and anomalies in the wolf (Canis lupus) // Canadian Journal of Zoology. 1993. V. 71. P. 968–971.
Powers P.M., Mead A.J. Dental and mandibular anomalies in white-tailed deer (Odocoileus virginianus) from central Georgia // Georgia Journal of Science. 2019. V. 77. № 2. Art. 15. P. 1–11.
Jentzsch M., Kraft R., Lemkul A. et al. Anomalies and pathological changes of skulls and dentition of wild small mammal species from Germany // Journal of Vertebrate Biology. 2020. V. 69. № 4. P. 1–19.
Jacobs R., Willems G. Inverted eruption of a supplemental lower premolar: report of an unusual case // International Journal of Paediatric Dentistry. 2003. V. 13. № 1. P. 46–50.
Ulusoy A.T., Akkocaoglu M., Akan S. et al. Reimplantation of an inverted maxillary premolar: case report of a multidisciplinary treatment approach // Journal of Clinical Pediatric Dentistry. 2009. V. 33. № 4. P. 279–282.
Mohan S., Kankariya H., Fauzdar S. Impacted inverted teeth with their possible treatment protocols // Journal of Maxillofacial and Oral Surgery. 2012. V. 11. № 4. P. 455–457.
Дополнительные материалы отсутствуют.
Инструменты
Доклады Российской академии наук. Науки о жизни


 Пн.-пт.: 10.00-19.00