

Доклады Российской академии наук. Науки о жизни, 2023, T. 512, № 1, стр. 480-485
Сон с открытыми глазами у двух видов оленей – индийского замбара (Rusa unicolor) и пятнистого оленя (Cervus nippon)
О. И. Лямин 1, 2, 3, *, Д. М. Сигал 3, Е. А. Назаренко 1, 2, Мань Ву 2, академик РАН В. В. Рожнов 1, 2
1 Институт проблем экологии и эволюции
им. А.Н. Северцова Российской академии наук
Москва, Россия
2 Совместный Российско-Вьетнамский Тропический научно-исследовательский и технологический центр
Ханой, СРВ
3 Калифорнийский университет в г. Лос-Анджелес
Лос-Анджелес, США
* E-mail: oilyamin@yahoo.com
Поступила в редакцию 01.07.2023
После доработки 06.07.2023
Принята к публикации 10.07.2023
- EDN: SQCYEK
- DOI: 10.31857/S2686738923700373
Аннотация
Методом видеорегистрации было установлено соотношение между позами, стадиями сна и состоянием глаз у двух видов оленей – индийского замбара (Rusa unicolor) и пятнистого оленя (Cervus nippon). Животные обоих видов отдыхали в положении лежа – в стернальном, держа голову над землей, и в латеральном, положив голову на круп или на землю. На покой приходилось не менее 80% времени в этих позах. По поведенческим критериям большая часть покоя была медленноволновым сном. Эпизоды вздрагиваний глаз (РЕМ сон) регистрировались только в латеральной позе, длительность эпизода не превышала 2 мин. В покое в стернальной позе глаза у оленей большую часть времени были открыты: в среднем 96% у замбаров и 82% у пятнистых оленей. Длительность эпизода открытого глаза достигала у замбаров 8.4 мин и у пятнистых оленей до 3.3 мин. В латеральном положении такие эпизоды были в 4 и в 1.5 раза короче. Сон с открытыми глазами с приподнятой над землей головой может быть важным механизмом поддержания бдительности у копытных.
Неподвижность и характерная поза – два важнейших признака сна, который у млекопитающих и птиц состоит из двух стадий: медленноволнового сна (МС) и РЕМ (парадоксального) сна. Большинство наземных млекопитающих и птиц спят с закрытыми глазами [1]. В то же время некоторые морские млекопитающие могут закрывать во время сна только один глаз [2, 3], а некоторые копытные [4–6], грызуны [7] и птицы [8] могут спать с двумя открытыми глазами. Сон с открытыми глазами может позволить животным поддерживать более высокий уровень бдительности. У копытных количественная корреляция между стадиями сна и состоянием глаз была установлена только у одного дикого вида – малого оленька [5, 6]. У этих млекопитающих в МС глаза были открыты фактически все время, а в эпизодах РЕМ сна глаза могли быть как закрыты, так и открыты. Неизвестно, в какой степени сон с открытыми глазами характерен для диких копытных и обеспечивает ли такой сон более высокий уровень бдительности.
Задачей данного исследования было охарактеризовать состояние глаз во время сна у двух видов оленей – индийского замбара (Rusa unicolor) и пятнистого оленя (Cervus nippon), а также установить соотношение между позами покоя, стадиями сна и состоянием глаз. Оба вида – типичные представители современных диких оленей (сем. Cervidae). Замбары в 2–3 раза крупнее пятнистых оленей. Оба вида – социальные животные [9].
МАТЕРИАЛЫ И МЕТОДЫ
Исследования проводили на 8 индийских замбарах и 5 пятнистых оленях (взрослые самцы, самки и молодые особи до 2 лет) в национальном парке Бузямап (Вьетнам). Животные содержались в просторном вольере (30 × 30 м). Видеорегистрацию поведения оленей проводили в течение 2 дней (IP-видеокамера Proline, 5 МП, зум 10). Замбары и пятнистые олени отдыхали в группах и держались обособленно. Животных кормили 2 раза в день. Крупным планом регистрировали ту группу животных, в которой было больше особей в позах покоя. Большую часть дневного времени олени были активны. Для анализа были выбраны в основном периоды ночного покоя (более 20 ч видеозаписи), во время которых олени были хорошо видны минимум 1.5 ч. Поведение животных (позы, двигательная активность, состояние глаз) классифицировали в 5 сек эпохах. План исследований был согласован и одобрен комиссией по биоэтике Института проблем экологии и эволюции им. А.Н. Северцова РАН и Совместного Российско-Вьетнамского Тропического научно-исследовательского и технологического центра.
РЕЗУЛЬТАТЫ И ИХ ОБСУЖДЕНИЕ
Большую часть времени наблюдений животные находились в положении лежа: замбары 94.7 ± 2.2% и пятнистые олени 98.0 ± 0.9% времени. Олени отдыхали лежа, опираясь на грудину, или на боку (рис. 1). Конечности были согнуты и лежали вдоль туловища. Передние ноги могли быть подогнуты под туловище. В остальное время олени стояли, переходили с одного места на другое или ели. В зависимости от положения шеи и головы у оленей можно выделить 3 позы лежа: 1) опираясь на грудину, шея вертикально, голова над землей (стернальное положение, ЛС); 2) шея повернута назад, голова на крупе животного или на земле (латеральное, или боковое положение “свернувшись”, ЛБ1); 3) шея и голова на земле перед животным (ЛБ2). Поза ЛС регистрировалась у всех оленей обоих видов. В этой позе они проводили большую часть времени: замбары 85.0 ± ± 3.3% и пятнистые олени 80.7 ± 7.7% времени наблюдений. Поза ЛБ1 регистрировалась у 6 из 8 замбаров (8.3 ± 3.2%) и у 4 из 5 пятнистых оленей (17.1 ± 8.1%). Поза ЛБ2 регистрировалась у 2 из 8 замбаров: у крупного самца и у молодого животного (в среднем 1% времени). У пятнистых оленей регистрировались только короткие эпизоды ЛБ2 (до 10 сек, у каждого всего <1 мин). Таким образом, у замбаров и пятнистых оленей есть 2 основные позы покоя – стернальная и латеральная свернувшись (ЛС и ЛБ1).
Рис. 1.
Позы покоя у индийских замбаров и пятнистых оленей. (a, б) Две основные позы покоя лежа у замбаров (а) и пятнистых оленей (б): стернальная (ЛС) и латеральная свернувшись (ЛБ1). Открытые глаза оленей светятся в темноте в ИК-свете видеокамеры. Состояние правого (п) и левого (л) глаз: о – открыт, з – закрыт, оо – открыты оба глаза. (в) Поза ЛБ2 у крупного самца замбара (голова лежит на земле перед животным).
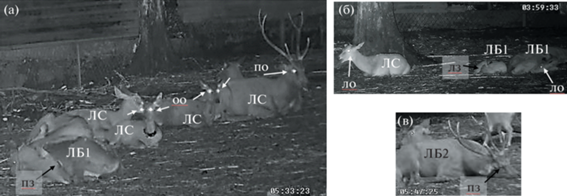
Известно, что копытные могут спать лежа и стоя [4–6, 10, 11]. Неподвижности в позе ЛС у оленей практически не было. Большую часть времени в этой позе у замбаров и пятнистых оленей регистрировались жвачка и движения ушей, которые чаще были асинхронными. Таким образом, состояние оленей в позе ЛС представляло собой покой без каких-либо других движений, кроме жвачки и движения ушей, и спокойное бодрствование (СБ), которое характеризовалось редкими движениями (поворотами) головы, изменениями основной позы и реже замедленной чисткой. На покой в ЛС приходилась большая часть времени: у замбаров 77.2 ± 3.4% и у пятнистых оленей 67.1 ± 8.3% времени лежа или 84.8 ± 2.2% и 81.5 ± 2.5% времени в позе ЛС соответственно (табл. 1). В позах ЛБ1 и ЛБ2 жвачка не регистрировалась. Большую часть времени в этих позах олени были неподвижны, если не считать движения ушей. В позе ЛБ1 на покой приходилось у замбаров 83.3 ± 8.5% и пятнистых оленей 90.1 ± 2.6% всего времени ЛБ1. Пятнистые олени в ЛБ1 проводили в 3 раза больше времени, чем замбары. В позе ЛБ2, которая регистрировалась у 2 замбаров (всего 3 и 7 мин), на покой приходилось 88% времени. Таким образом, у обоих видов оленей в позах лежа состояние покоя (поведенческого сна) было основным. Покоя стоя у оленей в период наблюдений не было.
Таблица 1.
Характеристика покоя у индийских замбаров и пятнистых оленей в разных позах (ЛС, ЛБ1 и ЛБ2). Значения – среднее и ошибка измерений для 8 замбаров и 5 пятнистых оленей соответственно. Для эпизодов РЕМ сна – для 3 у замбаров и 5 у пятнистых оленей
| Поза | Замбары | Пятнистые олени | ||||
|---|---|---|---|---|---|---|
| Продолжительность покоя, РЕМ сна и СБ, % времени лежа1 | ||||||
| ЛС | 77.2 | ± | 3.4 | 67.1 | ± | 8.3 |
| ЛБ1 | 4.8 | ± | 2.6 | 14.3 | ± | 7.2 |
| ЛБ1_РЕМ | 1.7 | ± | 0.9 | 2.1 | ± | 1.0 |
| ЛБ2 | 1.0 | ± | 0.9 | 0.0 | ± | 0.0 |
| СБ1 | 15.3 | ± | 2.2 | 16.5 | ± | 2.1 |
| Длительность эпизода, мин | ||||||
| ЛС | 0.9 | ± | 0.1 | 0.8 | ± | 0.1 |
| ЛБ1 | 1.0 | ± | 1.0 | 1.1 | ± | 0.2 |
| ЛБ1_РЕМ | 1.4 | ± | 0.6 | 1.4 | ± | 0.2 |
| Максимальная длительность эпизода, мин2 | ||||||
| ЛС | 10.0 | 5.8 | ||||
| ЛБ1 | 2.1 | 6.1 | ||||
| ЛБ1_РЕМ | 1.9 | 1.9 | ||||
| ЛС | 6.8 | ± | 0.6 | 4.2 | ± | 0.3 |
| ЛБ1 | 1.4 | ± | 0.2 | 4.4 | ± | 0.9 |
| Процент эпизодов длительностью больше 1 мин, % | ||||||
| ЛС | 26 | ± | 3 | 25 | ± | 6 |
| ЛБ1 | 37 | ± | 15 | 26 | ± | 7 |
| Продолжительность эпизодов длительностью больше 1 мин, % времени наблюдений | ||||||
| ЛС | 71 | ± | 4 | 60 | ± | 8 |
| ЛБ1 | 50 | ± | 18 | 68 | ± | 8 |
Средняя длительность эпизодов покоя ЛС и ЛБ1 у обоих видов составляла 1 мин, не менее 25% эпизодов покоя были длиннее 1 мин. Максимальная длительность эпизодов покоя в ЛС была у замбаров 10 мин и у пятнистых оленей 6 мин. В позе ЛБ1 более длинные эпизоды покоя регистрировались, наоборот, у пятнистых оленей. Как следствие, больше 60% всего покоя в позе ЛС и не менее половины покоя в ЛБ1 у оленей обоих видов было представлено эпизодами длиннее 1 мин (табл. 1).
Длинные эпизоды неподвижности не характерны для СБ животных. Например, у оленьков 82% всех эпизодов СБ были короче 1 мин, а больше половины эпизодов МС были длиннее 1 мин [5, 6]. Неподвижность – важнейшая характеристика сна, а неподвижность в сочетании с вздрагиваниями глаз и атонией – признаки РЕМ сна. Жвачка и движения ушей у копытных не прерывают МС, но жвачка никогда не регистрировалась в РЕМ сне [4–6, 10]. Важно отметить, что у млекопитающих РЕМ сон, как правило, развивается после эпизодов глубокого (по параметрам электроэнцефалограммы) МС. У замбаров и пятнистых оленей эпизоды покоя в позе ЛБ1 предшествовали эпизодам РЕМ сна. Это еще один аргумент в пользу того, что у обоих видов оленей существенная доля покоя в позах ЛС и ЛБ1 была МС.
У замбаров и пятнистых оленей в позе ЛБ1 (свернувшись) регистрировались характерные для РЕМ сна вздрагивания глаз. Параллельно двигались веки, глаза открывались и закрывались. В ночное время такие эпизоды легко определить по прерывистому свечению зрачка глаза в отраженном ИК-свете, тогда как в позе ЛС свечение было либо постоянным (при открытом глазе), либо отсутствовало (при закрытом). У оленей обоих видов вздрагивания глаз в РЕМ сне были практически непрерывными, как у оленьков [5, 6]. Выраженных вздрагиваний головы и конечностей в РЕМ сне у оленей не было, а движения ушей визуально не отличались от движений в покое в позе ЛС. Таким образом, покой в позе ЛБ1 у обоих видов оленей включал эпизоды МС и РЕМ сна.
У обоих видов оленей на РЕМ сон приходилось в среднем 2% от всего времени лежа, примерно 26% ЛБ1 у замбаров и вдвое меньше (13%) у пятнистых оленей (табл. 1). Было зарегистрировано 3 очевидных эпизода РЕМ сна у 3 замбаров и 5 эпизодов у 3 пятнистых оленей. Средняя и максимальная длительность эпизодов РЕМ сна у двух видов были одинаковыми: 90 сек и 120 сек. Таким образом, не только суммарная продолжительность, но и длительность эпизодов РЕМ сна у оленей была такой же короткой, как и у других исследованных копытных [4–6, 10–13]. Эпизоды РЕМ сна у оленей развивались в интервале от 5 сек до 8 мин после того, как животные принимали позу ЛБ2 (у замбаров в среднем через 4 мин и у пятнистых оленей через 3 мин).
У оленей обоих видов в состоянии покоя в позе ЛС, как минимум, один глаз был открыт и реже прикрыт: у замбаров – в среднем 96% и у оленей – 82% времени, когда хотя бы один глаз был виден (рис. 2а, б). Во время покоя в ЛБ1 и ЛБ2 у обоих видов глаза были открыты и закрыты примерно равное время (например, открыты у замбаров 63% и у пятнистых оленей 47% покоя в ЛБ1). Всегда, когда были видны оба глаза, состояние левого и правого глаз было одинаковым (открыт или закрыт). В РЕМ сне глаза вздрагивали и часто открывались, т.е. состояние глаз в РЕМ сне у оленей могло быть любым. Таким образом, большую часть времени покоя в позе ЛС и примерно половину в ЛБ1 глаза у оленей обоих видов были открыты, а большая часть покоя по поведенческим критериям было МС.
Рис. 2.
Состояние глаз и позы сна у индийских замбаров и пятнистых оленей. (a, б) Продолжительность разных состояний глаза (о – открыт, пр – промежуточное, з – закрыт) у замбаров и пятнистых оленей в позах ЛС, ЛБ1 и ЛБ2. (в, г, д) Процент эпизодов длительностью <1 мин, а также средняя и средняя максимальная длительность эпизодов открытого и закрытого глаза в позах ЛС и ЛБ1. Данные – среднее ± ошибка измерений для 6 замбаров и 4 пятнистых оленей, кроме ЛБ2 (для 1 замбара).
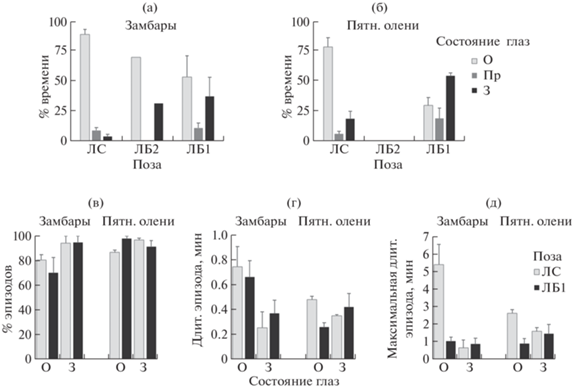
У обоих видов оленей в позах ЛС и ЛБ1 большинство эпизодов открытого глаза были короче 1 мин (от 70 до 98%; рис. 1в). Средняя длительность эпизода была меньше 1 мин (рис. 1г). При этом регистрировались и эпизоды открытого глаза длительностью в несколько минут: у замбаров до 8.4 мин (в среднем 5.4 мин) и у пятнистых оленей до 3.3 мин (в среднем 2.6 мин, рис. 1д). В покое в позе ЛБ1 эпизоды открытого глаза у замбаров были в 4, а у пятнистых оленей – в 1.5 раза короче. Таким образом, у обоих видов оленей в покое наиболее длинные эпизоды открытого глаза регистрировались в позе лежа с приподнятой над землей головой.
У обоих видов оленей в покое процент эпизодов закрытого глаза длительностью <1 мин был больше 91% (рис. 2в). В позе ЛС средняя длительность эпизода закрытого глаза у замбаров была примерно в 2 раза короче, чем открытого глаза (рис. 2г). Средние максимальные значения длительности открытого и закрытого глаза отличались у замбаров в 8 раз (5.4 и 0.6 мин соответственно), а у пятнистых оленей – в 1.7 раза (2.6 и 1.6 мин, рис. 2д). В позе ЛБ1 различия между эпизодами открытого и закрытого глаза были минимальными. Таким образом, эпизоды закрытого глаза в покое у замбаров и пятнистых оленей были короткими и редко превышали 1 мин.
Итак, применяя только метод видеорегистрации, мы установили, что значительная часть времени, которое индийские замбары и пятнистые олени проводили в стернальной и латеральной позах, по поведенческим критериям, была МС, а эпизоды вздрагиваний глаз в позе свернувшись были РЕМ сном. В отличие от оленьков, у замбаров и пятнистых оленей на РЕМ сон приходилось не более 25% времени в позе на боку свернувшись. Поэтому сама латеральная поза по умолчанию не является признаком РЕМ сна у всех копытных, если нет вздрагиваний глаз. Замбары и пятнистые олени, по-видимому, могут спать лежа, положив голову на землю перед собой, но эта поза не является основной.
Полученные нами данные дают основание предположить, что большую часть времени олени обоих видов спали с открытыми глазами. При этом общее время поведенческого сна с открытыми глазами у оленей было меньше, чем у оленьков [5, 6]. Наиболее длинные эпизоды открытых глаз были зарегистрированы у замбаров и пятнистых оленей в стернальном положении, когда голова находится над землей и обзор окрестностей лучше, чем в позе лежа на боку свернувшись. Логично предположить, что сон с открытыми глазами в такой позе обеспечивает более высокий уровень бдительности, чем в случае, если голова животного лежит на земле. Известно, что многие социальные животные координируют поведение, что исключает развитие сна одновременно у всех особей в группе [14, 15]. Сон с открытыми глазами – это другой механизм поддержания бдительности. Сон с открытыми глазами, скорее всего, характерен и для других видов диких копытных.
Еще одним способом повышения бдительности у оленей можно считать сокращение времени сна в позе на боку свернувшись. В таком положении РЕМ сон у оленьков достигает своего максимального развития, судя по выраженности признаков этой стадии сна [5, 6]. В то же время сон на боку свернувшись замедляет скорость реакции и делает животных более уязвимыми. Оленьки, которые ведут одиночный образ жизни, находятся в такой позе только во время РЕМ сна. У замбаров и пятнистых оленей, которые ведут социальный образ жизни и спят в группах, большая часть времени в позе на боку с высокой вероятностью является глубоким МС. Это может означать, что уровень бдительности оленей обоих видов во время сна скорее всего ниже, чем у оленьков. Интересно, что у пятнистых оленей сна на боку свернувшись было больше, чем у замбаров. Это может быть признаком разного уровня бдительности у спящих замбаров и пятнистых оленей.
Таким образом, сон с открытыми глазами у копытных может быть важным механизмом поддержания бдительности, а продолжительность сна в двух основных позах – компромиссом между достижением максимальной глубины, эффективности и “пользы” для животного данной стадии сна (МС и РЕМ), а также поддержанием необходимого уровня бдительности.
Список литературы
Siegel J.M. // Nature Rev Neurosci. 2009. V. 10. № 10. P. 747–753.
Lyamin O.I., Manger P.R., Ridgway S.H. et al. // Neurosci Biobehav Review. 2008. V. 32. №. 8. P. 1451–1484.
Lyamin O.I., Mukhametov L.M., Siegel J.M. // Curr Opin Neurobiol. 2017. V. 44. P. 144–151.
Ruckebusch Y. // Anim Behav. 1972. V. 20. P. 637–643.
Лямин О.И., Сигал Д.М., Евсигнеев Р.В. и др. Доклады Российской академии наук. Науки о жизни. 2021. Т. 500. № 1. С. 437–442.
Lyamin O.I., Siegel J.M., Nazarenko E.A., Rozhnov V.V. // Sleep. 2022. V. 45. № 7. P. zsab199.
Pigarev I.N., Fedorov G.O., Levichkina E.V., et al. // Exp Brain Res. 2011. V. 210. P. 131–142.
Lesku J.A., Meyer L.C., Fuller A. et al. // Ostriches sleep like platypuses. PLoS One. 2011. V. 6. № 8. P. e23203.
Кузнецов Г.В. // Млекопитающие Вьетнама. 2006. Москва. КМК. С. 426
Sokolov V.E., Mukhametov L.M., Prikhod’ko V.I., et al. // Proceeding of the Academy of Sciences of USSR. 1988. V. 302. № 4. P. 1005–1009.
Williams D.C., Aleman M., Holliday T.A. et al. // J. Vet Intern. Med. 2008. V. 22. № 3. P. 630–638.
Davimes J.G., Alagaili A.N., Bhagwandin A., et al. // Sleep. 2018. V. 41. № 5:zsy038.
Malungo I.B., Gravett N., Bhagwandin A., et al. // IBRO Neuroscience Reports. 2021. V. 10. P. 142–152.
Burger A.L., Fennessy J., Fennessy S., Dierkes P.W. // Ecol Evol. 2020. V. 10. P. 2917–2927.
Brügger R.K., Willems E.P., Burkart J.M. // Animal Behaviour. 2023. V. 196. P. 183–199.
Дополнительные материалы отсутствуют.
Инструменты
Доклады Российской академии наук. Науки о жизни


 Пн.-пт.: 10.00-19.00