

Физиология растений, 2023, T. 70, № 5, стр. 461-471
Влияние экспрессии гетерологичного гена NDB2 Arabidopsis thaliana на рост и дыхательную активность Nicotiana tabacum
Н. Е. Коротаева a, *, А. М. Шигарова a, А. И. Катышев a, И. В. Федосеева a, А. В. Федяева a, b, Д. В. Савчин c, А. М. Шишлова-Соколовская c, О. Ю. Урбанович c, Г. Б. Боровский a
a Федеральное государственное бюджетное научное учреждение Сибирский институт физиологии и биохимии растений Сибирского отделения Российской академии наук
Иркутск, Россия
b Федеральный исследовательский центр Институт цитологии и генетики Сибирского отделения
Российской академии наук
Новосибирск, Россия
c Институт генетики и цитологии Национальной академии наук Беларуси
Минск, Беларусь
* E-mail: knev73@yandex.ru
Поступила в редакцию 20.01.2023
После доработки 14.03.2023
Принята к публикации 16.03.2023
- EDN: PBSFBL
- DOI: 10.31857/S0015330323600031
Аннотация
С помощью агробактериальной трансформации и последующего отбора получены линии табака (Nicotiana tabacum L.) с высокой экспрессией гена AtNDB2 (NDB2 из Arabidopsis thaliana (L.) Heynh.). Типичная по внешнему виду и величине экспрессии AtNDB2 линия 13s была исследована по ростовым показателям и параметрам дыхательной активности при оптимальной и субоптимальной температурах в сравнении с исходной разновидностью N. tabacum. Результаты показали, что в условиях субоптимальной температуры в растениях линии 13s наблюдалось усиление общего и альтернативного дыхания и снижение генерации супероксидного аниона. Скорость роста у растений с усиленной экспрессией AtNDB2 по сравнению с контрольными была снижена, особенно при температуре ниже температурного оптимума. Обсуждаются возможные причины таких изменений.
ВВЕДЕНИЕ
Известно, что повышению защитных свойств растений по отношению к неблагоприятным факторам внешней среды способствует умеренное увеличение концентрации эндогенных АФК в растительной ткани, которые являются сигнальными молекулами для запуска ряда защитных механизмов. В нестрессовых условиях АФК образуются в клетке на низких уровнях в результате утечки электронов во время фотосинтеза, дыхания и фотодыхания [1]. В ответ на эндогенные сигналы (гормоны и сигнальные молекулы), а также стимулы окружающей среды (биотические или абиотические стрессы) индуцируется несколько ферментов, продуцирующих АФК, таких как: NAD(P)H-оксидазы, аминоксидазы, полиаминоксидазы, оксалатоксидазы и большое семейство пероксидаз класса III [2, 3]. Считается, что в клетках растений среди ферментов, продуцирующих АФК, основное участие принимают NAD(P)H-оксидазы [4, 5]. В растительных клетках большая часть вырабатываемых АФК происходит из хлоропластов или пероксисом, но в незеленых тканях или в темноте продукция АФК в митохондриях становится преобладающей [6, 7]. Митохондрии являются одной из главных мишеней окислительного повреждения при стрессе [8], с другой стороны, они остаются одним из наиболее важных источников АФК [9, 10]. В изолированных митохондриях клеток растений и животных основными сайтами генерации АФК являются комплексы I и III дыхательной цепи [11].
При энергозапасающем окислении NADH митохондриями функционирует комплекс I дыхательной цепи, который является одной из точек генерации мембранного потенциала. У большинства организмов его работа ингибируется ротеноном. Часть организмов, в том числе растения, грибы и некоторые микроорганизмы, имеют дыхание, не чувствительное к ротенону. NADH или NADPH при этом окисляется несколькими ферментами, локализованными на наружной или на внутренней стороне внутренней митохондриальной мембраны. У Arabidopsis thaliana найдены три группы генов, кодирующих такие NAD(P)H-дегидрогеназы второго типа (NDII): NDA (два гена), NDB (четыре гена), и NDC (один ген) [12]. Установлена локализация данных ферментов: NDB1–NDB4 являются внешними (расположены на наружной стороне внутренней мембраны митохондрий), а NDA1–NDA2 и NDC1 – внутренними (обращены к митохондриальному матриксу) [13]. Точные физиологические функции конкретных белков семейства NDII не определены. Наиболее распространенной точкой зрения является их вовлеченность (вместе с альтернативной оксидазой – AOX) в формирование нефосфорилирующей дыхательной цепи (или нефосфорилирующего пути, НФП) при окислительном стрессе и метаболическом дисбалансе [14]. С этими представлениями согласуются и наши данные о том, что в прорастающих семенах сохраняется способность митохондрий к окислению экзогенного NADH при действии отрицательной температуры, и именно окисление внешнего NADH, главным образом, обеспечивает энергетический метаболизм при низких температурах у растений [15]. Однако в вопросе о связи активности NDII и уровня генерации АФК много неясного. Поскольку альтернативные NAD(P)H дегидрогеназы растений содержат в качестве кофактора ФАД, исследователи не исключают, что они могут быть потенциальными сайтами генерации АФК у растений [9].
Перекликающиеся с этим данные были получены нами: митохондриальный мембранный потенциал и уровень генерации АФК существенно подавлялись добавлением к клеткам Saccharomyces cerevisiae DPI (дифенилениодониум, ингибитор внешних и внутренних NADH-дегидрогеназ), а также у дрожжей с делецией гена NDE1, кодирующего наружную NAD(P)H-дегидрогеназу. Следовательно, NAD(P)H-дегидрогеназы – это важный источник АФК [16]. С помощью изолированных митохондрий S. cerevisiae показано, что внешние NADH-дегидрогеназы являются основными источниками генерации АФК при использовании NADH в качестве субстрата [17]. Аналогичная ситуация наблюдалась в клетках гриба Neurospora crassa. Делеция генов NDE1 и NDE2, кодирующих внешние альтернативные NADH-дегидрогеназы, снижала продукцию АФК при обработке прооксидантом паракватом [18]. Таким образом, несмотря на то, что существует много аргументов за то, что ферменты NDII участвуют в снижении генерации АФК, активность этих дегидрогеназ служит в ряде случаев источником АФК.
У растений полностью блокировать синтез всех NDII не удается, поскольку при этом невозможно получить жизнеспособные семена [19], однако опубликовано несколько работ по растениям A. thaliana со сниженной экспрессией отдельных генов NDII. Исследователи [20, 21] изучали, как подавление экспрессии генов NDA1, NDA2, а также NDB1, кодирующих альтернативные внутренние и внешние NAD(P)H дегидрогеназы A. thaliana, влияет на рост и метаболизм растений, а также на изменение экспрессии других генов. Показано, что снижение количества белков NDA1 и NDA2 приводит к замедлению роста и повышению уровня лактата. Увеличение интенсивности света активировало экспрессию гена альтернативной оксидазы (AOX1a), повышало активность AOХ и цитохром с оксидазы, а также уровень метаболитов цикла Кребса. Однако существенных фенотипических различий между мутантами и родительским типом не было выявлено [20]. Снижение количества белка NDB1 нарушало рост растений, но не влияло на дыхательную активность. В то же время, недостаток NDB1 значительно влиял на экспрессию генов, участвующих в белковом синтезе, а также в функционировании сигнальных систем растений [21]. К сожалению, уровень генерации АФК в этих экспериментах не определяли.
Существуют результаты, показывающие, что частичное подавление экспрессии гена NDB4, кодирующего внешнюю NADH-дегидрогеназу A. thaliana, приводило к снижению уровня генерации АФК. Авторы полагают, что данный эффект обуславливается повышением активности антиоксидантных ферментов и альтернативной оксидазы [19]. Долгое время неисследованным с использованием нокаут мутантов оставался белок NDB2. Между тем этот белок, возможно, имеет наибольшее отношение к устойчивости растений к стрессам. На такую возможность кроме физиологических исследований, о которых было написано выше, указывают эксперименты с растениями A. thaliana, у которых с помощью RNAi был уменьшен синтез NDB4. Такие растения, вероятно, вследствие компенсаторного эффекта, значительно увеличили синтез NDB2 и AOX, что привело к уменьшению образования АФК клетками, увеличению солеустойчивости, а также некоторым изменениям в скорости роста и фенотипе растений [19]. С использованием озимой пшеницы также было показано, что повышение способности AOX к транспорту электронов после действия на проростки закаливающей отрицательной температуры связано с сохранением высокой активности NDB2, которая, вероятно, играет важную роль в поддержании функционального состояния митохондрий в гетеротрофных тканях растений при действии отрицательных температур [22]. Наконец, в 2019 г. появилась работа Sweetman с соавт. [14], в которой был показан рост устойчивости A. thaliana к засухе при одновременной гиперэкспрессии AtAOX1а и AtNDB2, в то же время гиперэкспрессор одного гена NDB2 не демонстрировал фенотипических отличий от дикого типа и повышенной устойчивости к засухе.
Субоптимальные температуры для теплолюбивых растений являются более физиологичными, поскольку их воздействию растения в естественных условиях подвержены значительно более длительное время вегетации, чем действию более низких температур [23]. Субоптимальные температуры, в отличие от холодового стресса, замедляют, но не останавливают рост и метаболизм растений [23, 24]. При этом защитные механизмы, подготавливающие растения к воздействию более низких температур, активируются при субоптимальном температурном воздействии, в том числе у табака [25]. По нашим представлениям, повышенная активность NDB2 должна изменять в растениях потенциал на внутренней митохондральной мембране и уровень генерации АФК как при стрессе, так и в нормальных условиях. Изменение уровня АФК, в свою очередь может влиять на реакцию растений на температуру внешней среды. Таким образом, целью нашей работы было определение роли альтернативных путей транспорта электронов в дыхательной цепи митохондрий растений при неблагоприятных условиях. Задачей исследования являлась характеристика растений табака с гиперэкспрессией гетерологичного гена NDB2 A. thaliana в нормальных условиях выращивания и в условиях воздействия субоптимальной температуры.
МАТЕРИАЛЫ И МЕТОДЫ
В качестве источника для клонирования нативного гена AtNDB2 использованы растения Arabidopsis thaliana (L.) Heynh. (экотип Columbia). В экспериментах по трансформации использована линия табака Nicotiana tabacum L. cv. Petit Havana SR1. Выделение РНК и синтез кДНК выполняли с помощью наборов GeneJET Plant RNA Purification Mini Kit и RevertAid H Minus First Strand cDNA Synthesis Kit (Thermo Fisher Scientific, Литва). Для последующего клонирования амплифицировали с помощью ПЦР с использованием Pfu-полимеразы и синтетических олигонуклеотидов NDB2-F и NDB2-R (табл. 1 Дополнительные материалы) последовательность кДНК гена NDB2 A. thaliana, соответствующую транслируемой области мРНК.
При создании векторных конструкций использовали методики ПЦР, рестрикции и лигирования фрагментов ДНК, основанные на стандартных протоколах [26]. Векторная конструкция для трансформации растений получена на основе бинарного вектора pBI121 [27]. Предварительно в данный вектор были введены дополнительные сайты узнавания эндонуклеазами рестрикции BamHI и KpnI, что позволяло клонировать целевой ген между конститутивным промотором 35S РНК CaMV и терминатором нопалин-синтазы (NOS). Корректность сборки векторных конструкций подтверждали методом NGS-секвенирования на приборе Illumina MiSeq (Illumina, США), используя набор Nextera XT DNA (Illumina, США). Анализ данных NGS выполняли с помощью программ FastQC, Trimmomatic, SPAdes, UGENE, Vector NTI. Для введения гетерологичного гена AtNDB2 применяли Agrobacterium-опосредованную трансформацию листовых дисков 3–4-недельных растений табака, выращенных при температуре 24°С, освещенности 140 мкмоль/(м2 с), 16/8 ч (свет/темнота) фотопериоде.
Для инициации процессов морфогенеза и отбора первичных трансформантов использовали питательные среды CIM, SIM и RIM [28] с селективным агентом канамицином в концентрации 50 мг/л. Выделение растительной ДНК выполняли с помощью набора Genomic DNA Purification Kit (Thermo Fisher Scientific, Литва). Тотальную РНК выделяли с помощью набора реагентов GeneJET Plant RNA Purification Mini Kit (Thermo Fisher Scientific, Литва) по методике изготовителя. Синтез кДНК на матрице РНК осуществляли с помощью набора реагентов First Strand cDNA Synthesis Kit (Thermo Fisher Scientific, Литва) по методике изготовителя. Анализ регенерантов производили методами ПЦР и ПЦР-РВ, используя синтетические олигонуклеотиды, представленные в таблице 1 Дополнительных материалов. ПЦР-РВ проводили на приборе CFX96™ Real-Time PCR Detection System (Bio-Rad, США), используя набор реактивов qPCR mix-HS SYBR (Евроген, Россия), согласно инструкции производителя. Анализ данных ПЦР-РВ проводили с помощью программного обеспечения SFX Manager (Bio-Rad, Германия). В качестве референсных генов в количественной ПЦР использовали гены EF-1α и NTUBc2 [29]. В результате размножения и отбора на селективной среде получено продуктивное поколение регенерантов табака T4, не проявляющее расщепления в следующем поколении, выживающее на селективной среде с канамицином и демонстрирующее стабильную экспрессию гена NDB2 A. thaliana. Поколение Т5 выращивали в ростовых климатических камерах (Binder, Германия) при освещении 140 мкмоль/(м2 с), фотопериоде 16/8 (день/ночь) и температуре 25/20°С, соответственно, с ежемесячным внесением комплексного минерального удобрения “Акварин для цветов” (ОАО “Буйский химический завод”) в концентрации 1 г/л до момента сбора семян. Типичная по своим свойствам линия 13s, несущая ген NDB2 A. thaliana, была выбрана в качестве экспериментальной для дальнейшего исследования. В качестве контроля использовали нетрансформированные растения табака.
Семена табака, полученные от растений дикого типа и растений линии 13s, стерилизовали в ламинарном боксе в 0.05% растворе Tween 20 (2 мин), 0.04% растворе гипохлорита натрия (4 мин) и 96% этаноле (5 с), периодически встряхивая и промывая после каждого стерилизующего раствора 5-6 раз в дистиллированной воде. После стерилизации семена раскладывали в чашки Петри на агаризованную питательную среду, содержавшую ½ солей по Murashige и Skoog [30] с добавлением 360 мг/л сахарозы, 0.6 мг/л тиамина, 0.3 мг/л пиридоксина, 0.3 мг/л никотиновой кислоты, 0.6 мг/л инозита. После этого чашки Петри помещали в ростовые камеры МКТ-240 (Binder, Германия) при освещении 140 мкмоль/(м2 с), фотопериоде 16/8 (день/ночь) и температуре 20оС или 25оС. Начиная с 8 сут растения фотографировали и производили подсчет суммарной площади листовых пластинок в программе ImageJ, для этого использовали фотографии растений на 8, 10, 14, 18 и 20 сут.
Оценку накопления белкового продукта гена-гиперэкспрессора NDB2 проводили с помощью электрофореза и Western blot в системе Bio-Rad. Для выделения общего белка использовали 0.5 г листьев 2-месячных растений. Листья замораживали в жидком азоте и растирали с кварцевым песком в 2.5 мл буфера, содержащего 100 мМ Трис‑HCl (pH 7.4), 0.1% ДДС, 12 мМ β‑меркаптоэтанол, 0.5 мМ фенилметилсульфонилфлюорид и 50 мг нерастворимого поливинилпирролидона. После центрифугирования (18 000 g, 10 мин) белок из супернатанта осаждали пятикратным объемом охлажденного до –20°C ацетона (8500 g, 10 мин). Полученный осадок растворяли в буфере для образца и определяли содержание белка в получившихся пробах с реактивом Брэдфорд (Bio-Rad, США). По 30 мкг белка из каждой пробы разделяли электрофоретически в 12% ПААГ в присутствии ДДС и переносили на нитроцеллюлозную мембрану в системе miniProtean III (Bio-Rad, США) в соответствии с прилагаемой инструкцией. Для идентификации белка NDB2 использовали первичные антитела против NDB2 (PHY1403A, PhytoAB, США) и вторичные антитела, конъюгированные с щелочной фосфатазой (Sigma, США). Визуализацию антител проводили с использованием хромогенов BCIP (5-bromo-6-chloro-3-indolylphosphate-p-toluidine salt, Gerbu, Германия) и NBT (nitrotetrazolium blue chloride, AppliChem, Германия).
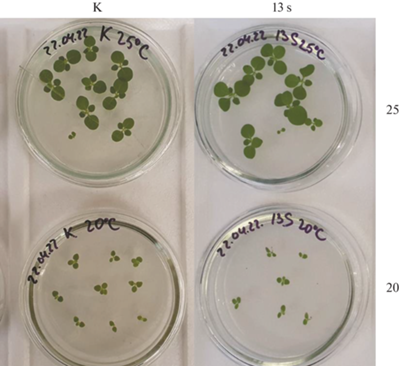
Оценку дыхательной активности и показателей окислительного стресса проводили на 21-дневных растениях, выращенных при 25°С, и 28-дневных растениях, выращенных при 20°С (рис. 1). Растения разного возраста использовали, чтобы уменьшить у опытных образцов разницу в размере суммарной площади листовых пластинок. Чтобы охарактеризовать дыхание, проводили измерение скорости поглощения кислорода измельченными листьями при 20°С или 25°С, соответственно температуре выращивания растений. Скорость поглощения кислорода определяли полярографически с использованием электрода Кларка и системы Oxytherm (Hansatech Instruments, Англия). Для измерения общей скорости поглощения кислорода клетками 50 мг листьев инфильтровали буфером Tris-HCl (100 мM, рН 7.5), далее листья измельчали лезвием на отрезки не более 1 мм шириной и помещали в ячейку объемом 1.4 мл, содержащую насыщенный кислородом буфер Tris-HCl (100 мM, рН 7.5). Сначала измеряли скорость поглощения кислорода без ингибиторов. Для оценки скорости цианид-устойчивого дыхания, связанного с активностью альтернативной оксидазы, в ячейку последовательно добавляли KCN (ингибитор цитохром с-оксидазы митохондрий) до конечной концентрации 1.2 мМ и бензгидроксамовую кислоту (БГК, ингибитор альтернативной оксидазы митохондрий) до конечной концентрации 6 мМ. Оптимальную концентрацию ингибиторов подбирали титрованием с возрастающей концентрацией до такой, после которой дальнейшее увеличение концентрации уже не влияет на скорость поглощения О2. Дыхание после добавления этих ингибиторов считали остаточным (немитохондриальным). Концентрацию ингибиторов и длительность инкубации подбирали в предварительном эксперименте. Скорость дыхания рассчитывали относительно сырого веса листьев и выражали в нмоль поглощенного О2/(мин г сырой массы).
Рис. 1.
Трансформированные растения табака и растения дикого типа через 21 сутки после начала роста на агаризованной питательной среде. 13s – трансформант с повышенной экспрессией гена NDB2 A. thaliana; К – дикий тип; 20 – выращивание при 20°С; 25 – выращивание при 25°С. Диаметр чашки Петри равен 10 см.
Скорость поглощения кислорода растительным материалом в буферном растворе, не содержащем ингибиторов, была принята за общее дыхание (Vобщ); в буферном растворе, содержащем KCN – за цианид-резистентное или альтернативное дыхание (Vальт); в буферном растворе, содержащем KCN и БГК – за остаточное дыхание (Vост). Кроме того, вычисляли скорость поглощения кислорода в процентах от общего дыхания.
Процент цитохромного пути дыхания (%ЦП) рассчитывали по формуле:
Процент альтернативного пути дыхания (%АП) рассчитывали по формуле:
Процент остаточного дыхания (%ОД) рассчитывали по формуле:
Для выявления развития окислительного стресса в листьях растений оценивали уровень генерации супероксидного аниона. Для этого использовали метод окрашивания с помощью NBT (AppliChem, Германия), основанный на образовании в присутствии супероксидного аниона формазана с последующей экстракцией и определением его содержания колориметрически на приборе SmartSpec Plus (BioRad, США) [31]. Итоговое значение содержания формазана было получено с поправкой на сырую массу образца.
Каждое измерение проводили не менее чем в трех биологических повторностях. Для статистической обработки данных использовали программы Statistica и SigmaРlot. Вычисляли среднее значение и доверительный интервал (Р = 0.05). Статистическую значимость различий оценивали с помощью непараметрического U-критерия Манна–Уитни при Р < 0.05.
РЕЗУЛЬТАТЫ
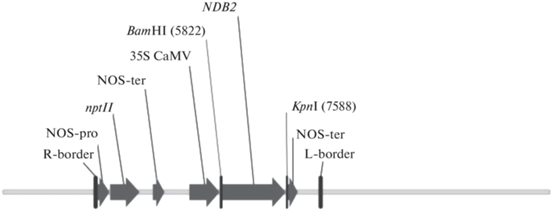
Для получения трансгенных растений табака транслируемую последовательность кДНК гена NDB2 (AT4G05020) A. thaliana размером 1749 п.н. клонировали по сайтам рестрикции BamHI и KpnI в составе бинарной плазмиды pBI121, в которую предварительно был введен сайт узнавания KpnI. Для повышения эффективности экспрессии целевого гена важно наличие нуклеотида A в положении –3 и нуклеотида G в положении +4 [32]. Для соответствия этим критериям проведена модификация 5′-концевого участка последовательности нативного гена AtNDB2 – добавлена последовательность Козак AACA перед стартовым кодоном. Также после стартового кодона был добавлен кодон GGT, кодирующий стабилизирующую аминокислоту валин. Стоп-кодон TGA был заменен на более предпочтительный для растений TAA. Созданный вектор получил название pBI121_NDB2 (рис. 2). С помощью секвенирования было показано полное соответствие целевой нуклеотидной последовательности векторной конструкции и референсной последовательности гена A. thaliana и отсутствие замен нуклеотидов в ней.
Рис. 2.
Схема векторной конструкции pBI121_NDB2: R-border, L-border – правый и левый концевые повторы области Т-ДНК; NOS-pro – промотор нопалин-синтазы; nptII – селективный ген неомицинфосфотрансферазы II типа, определяющей устойчивость к канамицину; NOS-ter – терминатор нопалин-синтазы; 35S CaMV – промотор 35S РНК вируса мозаики цветной капусты; NDB2 – ген “внешней” нефосфорилирующей НАД-Н дегидрогеназы; BamH-I, KpnI – сайты узнавания эндонуклеазами рестрикции.
В результате эксперимента по агробактериальной трансформации растений табака вектором pBI121_NDB2 из каллусной культуры было получено 57 регенерантов. При достижении размера 2-3 см регенеранты срезали с каллуса и переносили на среды с селектирующим агентом для укоренения. В процессе культивирования 28 регенерантов (49.1% от общего количества полученных регенерантов) образовывали корни и развивались на средах с селективным агентом канамицином.
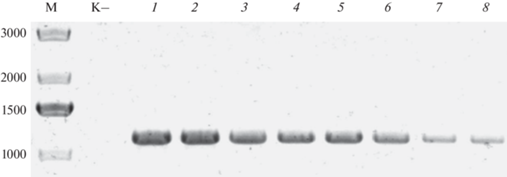
Для подтверждения интеграции в геном трансформированных растений табака последовательности целевого гена под контролем промотора 35S РНК CaMV провели ПЦР-анализ с олигонуклеотидами 35SEF и Ndb2gR (Дополнительные материалы, табл. 1 ). Амплификация фрагмента размером около 1300 п.н. подтвердила наличие анализируемой вставки ДНК в геном трансгенных растений табака (рис. 3).
Рис. 3.
Электрофореграмма ПЦР-продукта, выявленного при амплификации ДНК регенерантов табака со вставкой гена NDB2 A. thaliana. М – маркер молекулярного веса GeneRuler 100 bp DNA Ladder (Thermo Fisher Scientific); К– – нетрансформированные растения табака; 1 – плазмида pBI121_NDB2; 2 – 8 – анализируемые трансгенные линии.
Экспрессию целевого гена в трансформированных растениях исследовали как на уровне мРНК, так и на уровне белка. Анализ с помощью ПЦР-РВ экспрессии гетерологичного гена NDB2 A. thaliana в трансформированных T4-растениях табака типичной линии 13s показал высокий уровень экспрессии трансгена – примерно в 34 раза (log2 = 5.1) выше экспрессии собственного гена NDB2 табака (рис. 4а).
Рис. 4.
Содержание мРНК гена NDB2 A. thaliana и белка NDB2 в листьях табака. (а) – сравнительный анализ количества мРНК гена NDB2 арабидопсиса в трансгенных растениях табака линии 13s. 1 – контрольные растения, 2 – трансгенные растения. Приведены средние значения и стандартные отклонения (n = 14); (б) – содержание NDB2 в листьях табака по результатам Western blot. 13s – трансформант с повышенной экспрессией гена NDB2 A. thaliana; Дт – дикий тип. Справа приведены значения молекулярных масс маркерных белков.
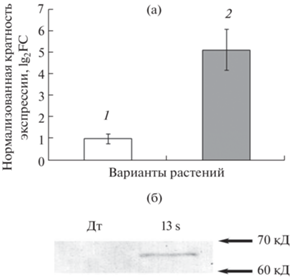
Согласно данным Western blot, в общих белковых экстрактах из листьев табака собственный белок NDB2 в контрольных и трансгенных растениях не детектировался, выявлялся только продукт введенного гена арабидопсиса в трансформированных растениях (рис. 4б). Эти данные подтверждают, что в полученных трансгенных растениях экспрессия гетерологичного гена существенно выше экспрессии собственного гена NDB2 табака.
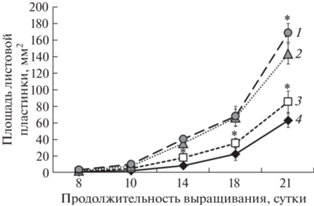
Сравнительная оценка скорости роста показала, что, судя по изменению площади листовой пластинки, трансформированные растения уступают в темпах роста растениям дикого типа при выращивании при 20°С на 14, 18 и 21 сут и при выращивании при 25°С на 21 сут (рис. 5). На скорость роста также влияла температура выращивания: начиная с 14 сут у выращенных при 20°С растений площадь листовой пластинки была меньше, чем у растений, выращенных при 25°С. Такой эффект наблюдался как у растений дикого типа, так и у линии 13s.
Рис. 5.
Изменение площади листовой пластинки у растений табака дикого типа и трансформантов на разные сутки от начала выращивания. 1, 3 – дикий тип; 2, 4 – трансформант с повышенной экспрессией гена NDB2 A. thaliana; 1, 2 – выращивание при 25°С; 3, 4 – выращивание при 20°С. Площадь листьев (мм2) измеряли с помощью программы ImageJ. Приведены средние значения и доверительные интервалы (P < < 0.05, n = 3). * – различия статистически значимы при P < 0.05. Статистическую значимость различий оценивали с помощью U-критерия Манна–Уитни в программе Statistica.
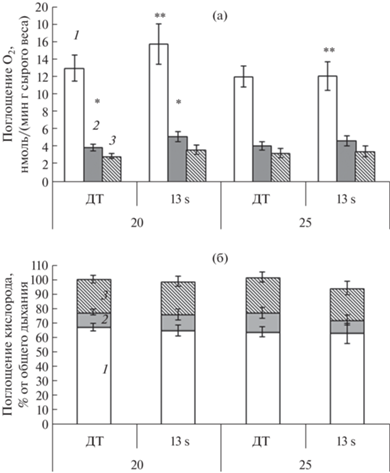
Оценка скорости поглощения кислорода показала некоторые различия в скорости дыхания между опытными растениями (рис. 6). Значимые различия были выявлены в скорости альтернативного дыхания (Vальт) между растениями дикого типа и трансформантами, выращенными при 20°С (рис. 6а), при этом Vальт оказалась выше у растений линии 13s. Скорость общего дыхания у 13s растений была достоверно выше при выращивании при 20°С (рис. 6а). Значимых различий не обнаружено в скорости дыхания в отсутствие ингибиторов и в скорости цитохромного и остаточного дыхания и вкладов цитохромного и альтернативного дыхания (рис. 6б).
Рис. 6.
Влияние температуры выращивания на дыхательную активность листьев табака. (а) – скорость дыхания, выраженная в нмоль поглощения кислорода. Показана величина поглощения О2 в ходе общего (1), альтернативного (2) или остаточного дыхания (3). *, ** – различия статистически значимы при P < 0.05 (р = 0.004 и р = 0.024 соответственно; использован U-критерий Манна–Уитни); (б) – скорость дыхания, выраженная в процентах от общего поглощения кислорода в ходе активности цитохромного (1), альтернативного пути дыхания (2) или остаточного дыхания (3). 13s – трансформант с повышенной экспрессией гена NDB2 A. thaliana; Дт – дикий тип; 20 – выращивание при 20°С в течение 28 сут; 25 – выращивание при 25°С в течение 21 сут. Измерение скорости поглощения кислорода проводили в полярографической ячейке при температуре 20оС или 25оС, соответственно. Приведены средние значения, ошибки представлены доверительным интервалом, n = 18–25.
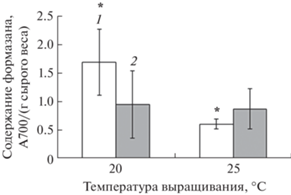
Между растениями дикого типа и трансформантами не обнаружено различий в уровне генерации супероксидного аниона в листьях (рис. 7). Также оно было одинаковым у трансформированных растений, выращенных при разной температуре. Однако, по сравнению с растениями, выращенными при 25°С, у растений дикого типа, выращенных при 20°С, уровень генерации супероксидного аниона оказался выше, что свидетельствует о развитии окислительного стресса.
Рис. 7.
Влияние температуры выращивания на уровень генерации супероксидного аниона в листьях табака. 1 – дикий тип; 2 – трансформант с повышенной экспрессией гена NDB2 A. thaliana; 20 – выращивание при 20°С в течение 28 сут; 25 – выращивание при 25°С в течение 21 сут. Приведены средние значения, ошибки представлены доверительным интервалом, n = 3–5. * – различия статистически значимы при Р < 0.05 (использован U-критерий Манна–Уитни).
ОБСУЖДЕНИЕ
В результате агробактериальной трансформации были получены трансгенные растения табака с повышенной экспрессией гетерологичного гена NDB2 A. thaliana, характеризующиеся как высоким содержанием транскрипта, так и белкового продукта целевого гена, чего, согласно литературным данным, не всегда удается добиться [33]. Базовый уровень экспрессии собственного гена NDB2 табака был низкий, вследствие чего белковый продукт этого гена в экстрактах листьев не детектировался, в отличие от продукта трансгена (рис. 4).
Наблюдались фенотипические различия между трансформированными и контрольными растениями, выражающиеся в различной скорости роста (рис. 5): у растений табака с гиперэкспрессией NDB2 A. thaliana скорость роста была ниже, чем у нетрансформированных растений. Особенно ярко такие различия проявились при выращивании растений в условиях субоптимальной температуры 20°С. Трансформанты отставали в скорости роста в нормальных условиях на 21 сут, а при 20°С – начиная с 14 сут (рис. 5). Наблюдаемое торможение ростовых процессов в растениях табака при действии субоптимальной температуры − один из характерных признаков стрессовой реакции и, скорее всего, относится к адаптивной реакции в ответ на снижение температуры. В пользу такого предположения свидетельствуют данные Yang с соавт. [25] показавших, что у растений табака в результате длительного воздействия субоптимальной температуры повышается содержание растворимых клеточных белков и снижается степень повреждения клеточных мембран, возможно, вследствие снижения уровня АФК. Все эти эффекты наблюдались на поздних этапах вегетации (стадия развития 12 листа) и приводили к замедлению увядания растений и продлению вегетативной фазы развития.
В наших экспериментах, проводившихся на ранних этапах развития растений, наоборот, активные ростовые процессы сопровождались повышенным уровнем генерации супероксидного аниона в нетрансформированных растениях при действии субоптимальной температуры 20°С (рис. 7), что свидетельствует о развитии внутриклеточного окислительного стресса. В случае трансгенных растений табака достоверных различий в содержании формазана не обнаружено (рис. 7).
Такие различия в реакции на стрессовое воздействие пониженной температурой могут определяться повышенной экспрессией трансгена. Считается, что экспрессия генов NDB и AOX (альтернативной оксидазы) растений взаимосвязаны. Уровень экспрессии AOX1a у A. thaliana определяет уровень экспрессии гена AtNDB2 в контроле и в условиях повышенного УФ облучения [34]. Экспрессия этих генов происходит синхронно в ответ на различные абиотические стрессы, что предполагает совместную регуляцию общими промоторными элементами [19, 35, 36]. В связи с этим не удивительно, что в трансгенных растениях табака N. sylvestris с гиперэкспрессией гена StNDB1 картофеля (Solanum tuberosum L.) наблюдалось повышение активности собственной AOX [37]. Схожий эффект наблюдался ранее в ряде аналогичных трансгенных линий в работе Sweetman с соавт. [14].
Координированная экспрессия генов NDB2 и AOX и совместная работа кодируемых ими белков обеспечивает формирование полноценного функционального нефосфорилирующего пути транспорта электронов [14]. Вероятно, в полученных нами трансгенных растениях табака также вследствие повышенной экспрессии NDB2 A. thaliana наблюдается активация дыхания через НФП (NDB2 – Q/QH2 – AOX), поскольку скорость альтернативного дыхания у трансформантов, выращенных при 20оС, оказалась достоверно выше, чем у растений дикого типа, выращенных при такой же температуре (рис. 6а). Вероятно это повышение скорости альтернативного дыхания и определяет сниженный уровень АФК в трансгенных растениях.
В наших экспериментах даже воздействие субоптимальной температурой на растения приводит к выраженному росту скорости общего дыхания у трансгенных растений (рис. 6а), что лишний раз подтверждает защитную функцию НФП при охлаждении − предотвращение перевосстановления пула убихинола и образования избытка АФК в митохондриальной ЭТЦ и рассеяние энергии дыхания в виде тепла [38].
Как следствие, фенотипические различия скорости роста трансгенных и нетрансформированных растений могут быть также следствием разобщения дыхания и активизации НФП в результате снижения энергетической эффективности дыхания, которое в некоторых условиях приводит к снижению скорости роста и продуктивности [14, 39]. Другим возможным объяснением низкой скорости роста в сочетании с повышенной скоростью дыхания у трансгенных растений может быть перенаправление энергетического вклада дыхания на другие нужды, помимо роста. Например, показано, что благодаря активности AOX рост суспензионной культуры клеток табака может настраиваться на снижение доступности азота и фосфора в среде культивирования, при этом сокращается вклад потребляемого сахара в прирост культуры [40]. В таком случае зависимость скорости роста трансгенных растений от повышения активности AtNDB2 (и, возможно, от активности AOX) представляется специфической настройкой, призванной оптимизировать соотношение дыхания, ростовых и адаптационных затрат.
Таким образом, нами получены трансгенные растения табака с измененной экспрессией гена, кодирующего один из ключевых компонентов альтернативного пути переноса электронов в митохондриях – AtNDB2, характеризующиеся более низкой по сравнению с растениями дикого типа скоростью роста, снижающейся еще больше при действии субоптимальной температуры. Замедление роста, а также наблюдаемое у трансгенных растений в отличие от контрольных снижение уровня генерации супероксидного аниона сопровождаются усилением общего и альтернативного дыхания. Разобщение дыхания и активизация НФП, вероятно, снижают энергетическую эффективность дыхания и, как следствие определяют наблюдаемые фенотипические различия в скорости роста трансгенных и нетрансформированных растений. Полученные растения с повышенной экспрессией гена AtNDB2, кодирующего внешнюю NADH дегидрогеназу A. thaliana, являются интересной моделью для изучения температурных настроек и стрессовых реакций растений.
Авторы выражают благодарность анонимным рецензентам. Авторы выражают благодарность О.И. Грабельных и Е.А. Поляковой за помощь и ценные рекомендации при исследовании дыхательной активности. Для выполнения работы было использовано оборудование Центра коллективного пользования “Биоаналитика” СИФИБР СО РАН.
Исследование выполнено за счет гранта Российского научного фонда № 23-24-00097, https:// rscf.ru/project/23-24-00097/.
Авторы заявляют об отсутствии конфликта интересов. Настоящая работа не содержит каких-либо исследований с участием людей и животных в качестве объектов исследования.
Список литературы
Mittler R. Oxidative stress, antioxidants and stress tolerance // Trends Plant Sci. 2002. V. 7. P. 405. https://doi.org/10.1016/S1360-1385(02)02312-9
Gill S.S., Tuteja N. Reactive oxygen species and antioxidant machinery in abiotic stress tolerance in crop plants // Plant Physiol. Biochem. 2010. V. 48. P. 909. https://doi.org/10.1016/j.plaphy.2010.08.016
Nadarajah K.K. ROS homeostasis in abiotic stress tolerance in plants // Int. J. Mol. Sci. 2020. V. 21. № 15. P. 5208. https://doi.org/10.3390/ijms21155208
Suzuki N., Miller G., Morales J., Shulaev V., Torres M.A., Mittler R. Respiratory burst oxidases: the engines of ROS signaling // Curr. Opin. Plant Biol. 2011. V. 14. № 6. P. 691. https://doi.org/10.1016/j.pbi.2011.07.014
Hu C.-H., Wang P.-Q., Zhang P.-P., Nie X.-M., Li B.-B., Tai L., Liu W.-T., Li W.-Q., Chen K.-M. NADPH oxidases: the vital performers and center hubs during plant growth and signaling // Cells. 2020. V. 9. № 2. P. 437. https://doi.org/10.3390/cells9020437
Navrot N., Rouhier N., Gelhaye E., Jacquot J. Reactive oxygen species generation and antioxidant systems in plant mitochondria // Physiol. Plant. 2007. V. 129. № 1. P. 185. https://doi.org/10.1111/j.1399-3054.2006.00777.x
Kristiansen K.A., Jensen P.E., Møller I.M., Schulz A. Monitoring reactive oxygen species formation and localisation in living cells by use of the fluorescent probe CM-H2DCFDA and confocal laser microscopy // Physiol. Plant. 2009. V. 136. № 4. P. 369. https://doi.org/10.1111/j.1399-3054.2009.01243.x
Bartoli C.G., Gómez F., Martínez D.E., Guiamet J.J. Mitochondria are the main target for oxidative damage in leaves of wheat (Triticum aestivum L.) // J. Exp. Bot. 2004. V. 55. № 403. P. 1663. https://doi.org/10.1093/jxb/erh199
Amirsadeghi S., Robson C.A., Vanlerberghe G.C. The role of the mitochondrion in plant responses to biotic stress // Physiol. Plant. 2007. V. 129. № 1. P. 253. https://doi.org/10.1111/j.1399-3054.2006.00775.x
Suzuki N., Miller G., Morales J., Shulaev V., Torres M.A., Mittler R. ROS and redox signalling in the response of plants to abiotic stress // Plant Cell Environ. 2012. V. 35. № 2. P. 259. https://doi.org/10.1016/j.pbi.2011.07.014
Blokhina O., Fagerstedt K.V. Oxidative metabolism, ROS and NO under oxygen deprivation // Plant Physiol. Biochem. 2010. V. 48. № 5. P. 359. https://doi.org/10.1016/j.plaphy.2010.01.007
Michalecka A.M., Svensson A.S., Johansson F.I., Agius S.C., Johanson U., Brennicke A., Binder S., Rasmusson A.G. Arabidopsis genes encoding mitochondrial type II NAD(P)H dehydrogenases have different evolutionary origin and show distinct responses to light // Plant Physiol. 2003. V. 133. № 2. P. 642. https://doi.org/10.1104/pp.103.024208
Elhafez D., Murcha M.W., Clifton R., Soole K.L., Day D.A., Whelan J. Characterization of mitochondrial alternative NAD(P)H dehydrogenases in Arabidopsis: intraorganelle location and expression // Plant Cell Physiol. 2006. V. 47. № 1. P. 43. https://doi.org/10.1093/pcp/pci221
Sweetman C., Waterman C.D., Rainbird B.M., Smith P.M.C., Jenkins C.D., Day D.A., Soole K.L. AtNDB2 is the main external NADH dehydrogenase in mitochondria and is important for tolerance to environmental stress // Plant Physiol. 2019. V. 181. №. 2. P. 774. https://doi.org/10.1104/pp.19.00877
Stupnikova I., Benamar A., Tolleter D., Grelet J., Borovskii G., Dorne A.J., Macherel D. Pea seed mitochondria are endowed with a remarkable tolerance to extreme physiological temperatures // Plant Physiol. 2006. V. 140. № 1. P. 326. https://doi.org/10.1104/pp.105.073015
Fedoseeva I.V., Pyatrikas D.V., Stepanov A.V., Fedyaeva A.V., Varakina N.N., Rusaleva T.M., Borovskii G.B., Rikhvanov E.G. The role of flavin-containing enzymes in mitochondrial membrane hyperpolarization and ROS production in respiring Saccharomyces cerevisiae cells under heat-shock conditions // Sci. Rep. 2017. V. 7. № 1. P. 1. https://doi.org/10.1038/s41598-017-02736-7
Fang J., Beattie D.S. External alternative NADH dehydrogenase of Saccharomyces cerevisiae: a potential source of superoxide // Free Radic. Biol. Med. 2003. V. 34. № 4. P. 478. https://doi.org/10.1016/s0891-5849(02)01328-x
Carneiro P., Duarte M., Videira A. Characterization of apoptosis-related oxidoreductases from Neurospora crassa // PLoS One. 2012. V. 7. № 3. P. e34270. https://doi.org/10.1371/journal.pone.0034270
Smith C., Barthet M., Melino V., Smith P., Day D., Soole K. Alterations in the mitochondrial alternative NAD(P)H dehydrogenase NDB4 lead to changes in mitochondrial electron transport chain composition, plant growth and response to oxidative stress // Plant Cell Physiol. 2011. V. 52. №. 7. P. 1222. https://doi.org/10.1093/pcp/pcr073
Wallström S.V., Florez-Sarasa I., Araújo W.L., Escobar M.A., Geisler D.A., Aidemark M., Lager I., Fernie A.R., Ribas-Carbó M., Rasmusson A.G. Suppression of NDA-type alternative mitochondrial NAD(P)H dehydrogenases in Arabidopsis thaliana modifies growth and metabolism, but not high light stimulation of mitochondrial electron transport // Plant Cell Physiol. 2014. V. 55. № 5. P. 881. https://doi.org/10.1093/pcp/pcu021
Wallström S.V., Florez-Sarasa I., Araújo W.L., Aidemark M., Fernández-Fernández M., Fernie A.R., Ribas-Carbó M., Rasmusson A.G. Suppression of the external mitochondrial NADPH dehydrogenase, NDB1, in Arabidopsis thaliana affects central metabolism and vegetative growth // Mol. Plant. 2014. V. 7. № 2. P. 356. https://doi.org/10.1093/mp/sst115
Grabelnych O.I., Borovik O.A., Tauson E.L., Pobezhimova T.P., Katyshev A.I., Pavlovskaya N.S., Koroleva N.A., Lyubushkina I.V., Bashmakov V.Y., Popov V.N., Borovskii G.B., Voinikov V.K. Mitochondrial energy-dissipating systems (alternative oxidase, uncoupling proteins, and external NADH dehydrogenase) are involved in development of frost-resistance of winter wheat seedlings // Biochem. (Mosc). 2014. V. 79. № 6. P. 506. https://doi.org/10.1134/S0006297914060030
Allen D.J., Ort D.R. Impacts of chilling temperatures on photosynthesis in warm climate plants // Trends Plant Sci. 2001. V. 6. № 1. P. 36. https://doi.org/10.1016/s1360-1385(00)01808-2
Aghaee A., Moradi F., Zare-Maivan H., Zarinkamar F., Irandoost H.P., Sharifi P. Physiological responses of two rice (Oryza sativa L.) genotypes to chilling stress at seedling stage // African J. Biotechnol. 2011. V. 10. P. 7617. https://doi.org/10.5897/AJB11.069
Yang L.Y., Yang S.L., Li J.Y., Ma J.H., Pang T., Zou C.M., He B., Gong M. Effects of different growth temperatures on growth, development, and plastid pigments metabolism of tobacco (Nicotiana tabacum L.) plants // Bot. Stud. 2018. V. 59. № 5. P. 1. https://doi.org/10.1186/s40529-018-0221-2
Sambrook J., Russel D.W. Molecular cloning: a laboratory manual. New York: Cold Spring Harbor Laboratory Press, 2001. 2100 p.
Chen P.Y., Wang C.K., Soong S.C., To K.Y. Complete sequence of the binary vector pBI121 and its application in cloning T-DNA insertion from transgenic plants // Mol. Breed. 2003. V. 11. № 4. P. 287. https://doi.org/10.1023/A:1023475710642
Belide S., Vanhercke T., Petrie J.R., Singh S.P. Robust genetic transformation of sorghum (Sorghum bicolor L.) using differentiating embryogenic callus induced from immature embryos // Plant Methods. 2017. V. 13. № 109. P. 1. https://doi.org/10.1186/s13007-017-0260-9
Schmidt G.W., Delaney S.K. Stable internal reference genes for normalization of real-time RT-PCR in tobacco (Nicotiana tabacum) during development and abiotic stress // Mol. Genet. Genomics. 2010. V. 283. № 3. P. 233. https://doi.org/10.1007/s00438-010-0511-1
Murashige T., Skoog F. A revised medium for rapid growth and bioassays with tobacco tissue cultures // Physiol. Plant. 1962. V. 15. P. 473. https://doi.org/10.1111/j.1399-3054.1962.tb08052.x
Tarasenko V.I., Garnik E.Y., Shmakov V.N., Konstantinov Y.M. Modified alternative oxidase expression results in different reactive oxygen species contents in Arabidopsis cell culture but not in whole plants // Biol. Plant. 2012. V. 56. P. 635. https://doi.org/10.1007/s10535-012-0115-1
Kozak M. Point mutations define a sequence flanking the AUG initiator codon that modulates translation by eukaryotic ribosomes // Cell. 1986. V. 44. P. 283. https://doi.org/10.1016/0092-8674(86)90762-2
Gygi S.P., Rochon Y., Franza B.R., Aebersold R. Correlation between protein and mRNA abundance in yeast // Mol. Cell Biol. 1999. V. 19. № 3. P. 1720. https://doi.org/10.1128/MCB.19.3.1720
Garmash E.V., Velegzhaninov I.O., Ermolina K.V., Rybak A.V., Malyshev R.V. Altered levels of AOX1a expression result in changes in metabolic pathways in Arabidopsis thaliana plants acclimated to low dose rates of ultraviolet B radiation // Plant Sci. 2020. V. 291. P. 110332. https://doi.org/10.1016/j.plantsci.2019.110332
Clifton R., Lister R., Parker K.L., Sappl P.G., Elhafez D., Millar A.H., Day D.A., Whelan J. Stress-induced co-expression of alternative respiratory chain components in Arabidopsis thaliana // Plant Mol. Biol. 2005. V. 58. № 2. P. 193. https://doi.org/10.1007/s11103-005-5514-7
Yoshida K., Noguchi K. Differential gene expression profiles of the mitochondrial respiratory components in illuminated Arabidopsis leaves // Plant Cell Physiol. 2009. V. 50. № 8. P. 1449. https://doi.org/10.1093/pcp/pcp090
Liu Y.J., Norberg F.E.B., Szilagyi A., De Paepe R., A-kerlund H.E., Rasmusson A.G. The mitochondrial external NADPH dehydrogenase modulates the leaf NADPH/NADP(+) ratio in transgenic Nicotiana sylvestris // Plant Cell Physiol. 2008. V. 492008. P. 251. https://doi.org/10.1093/pcp/pcn001
Grabelnych O.I. The energetic functions of plant mitochondria under stress // J. Stress Physiol. Biochem. 2005. V. 1. № 1. P. 37.
Guo M., Liu J., Hou L., Zhao S., Zhang N., Lu L., Zhao X. The mitochondria-localized protein OsNDB2 negatively regulates grain size and weight in rice // Crop J. 2022. V. 10. P. 1819. https://doi.org/10.1016/j.cj.2022.07.016
Sieger S.M., Kristensen B.K., Robson C.A., Amirsadeghi S., Eng E.W., Abdel-Mesih A., Møller I.M., Vanlerberghe G.C. The role of alternative oxidase in modulating carbon use efficiency and growth during macronutrient stress in tobacco cells // J. Exp. Bot. 2005. V. 56. № 416. P. 1499. https://doi.org/10.1093/jxb/eri146
Дополнительные материалы
- скачать ESM.docx
- Приложение 1.
Таблица 1. Последовательности олигонуклеотидов, использованных для клонирования, количественной ПЦР и ПЦР-анализа.
Инструменты
Физиология растений


 Пн.-пт.: 10.00-19.00