

Российский физиологический журнал им. И.М. Сеченова, 2023, T. 109, № 5, стр. 561-571
Сосудистые эффекты перинатальной гипоксии в раннем постнатальном периоде у крыс
А. А. Швецова 1, Д. Д. Хухарева 1, С. Д. Симоненко 1, М. А. Хлыстова 1, А. А. Борзых 1, 2, Д. К. Гайнуллина 1, *
1 Московский государственный университет имени М.В. Ломоносова
Москва, Россия
2 Институт медико-биологических проблем РАН
Москва, Россия
* E-mail: Dina.Gaynullina@gmail.com
Поступила в редакцию 02.03.2023
После доработки 13.03.2023
Принята к публикации 14.03.2023
- EDN: XRPHSM
- DOI: 10.31857/S0869813923050102
Аннотация
Нормальное функционирование сосудистой системы в раннем онтогенезе может изменяться при неблагоприятных воздействиях, влияющих на организм плода/новорожденного во время беременности, во время или после родов. Однако на настоящий момент недостаточно данных об “остром” (сразу после воздействия) и об “отставленном” (спустя несколько дней) влиянии непродолжительной (в течение нескольких часов) перинатальной нормобарической гипоксии на функционирование периферической сосудистой системы большого круга кровообращения в раннем онтогенезе у млекопитающих. Целью данной работы стало исследование “острых” и “отставленных” влияний однократной нормобарической гипоксии на функционирование артерий большого круга кровообращения в раннем постнатальном онтогенезе. В работе исследовали сократительные ответы подкожной артерии крыс в возрасте 10–14 дней в изометрическом режиме. Острую нормобарическую гипоксию (8% О2) моделировали в течение 2 ч у 10-дневных крысят. Выбранный режим гипоксии не привел к изменениям сократительных ответов артерий на агонист α1-адренорецепторов метоксамин ни сразу после воздействия, ни спустя несколько дней. Эндотелий-зависимое расслабление артерий на ацетилхолин также не различалось между группами. Гипоксия не привела к изменению выраженности антиконстрикторных путей, связанных с оксидом азота и Kv7-каналов, а также проконстрикторной роли Rho-киназы. Таким образом, согласно представленным в данной работе результатам, кратковременная нормобарическая гипоксия на 10-й день жизни крысят не приводит ни к “острым”, ни к “отставленным” изменениям в регуляции тонуса периферических сосудов большого круга кровообращения в раннем постнатальном периоде.
ВВЕДЕНИЕ
Нормальное функционирование сосудистой системы в период раннего постнатального онтогенеза демонстрирует целый ряд особенностей по сравнению со взрослым организмом. Ранее в ряде работ было показано, что регуляция тонуса сосудов у новорожденных отличается от взрослых как на уровне гладкой мышцы, так и на уровне эндотелия. Например, для раннего постнатального периода характерен высокий уровень тонической продукции эндотелием оксида азота NO, который оказывает выраженное антиконстрикторное влияние [1–5]. Кроме того, в раннем онтогенезе наблюдается повышенный по сравнению со взрослыми уровень экспрессии и функциональной активности ряда типов калиевых каналов гладкомышечных клеток, включая потенциал-зависимые калиевые каналы Kv7, что также оказывает антиконстрикторное влияние на тонус сосудов [6]. В то же самое время в регуляцию тонуса сосудов новорожденных существенный проконстрикторный вклад вносит Rho-киназа, чье влияние ко взрослому возрасту уменьшается [7, 8].
Однако нормальное функционирование сосудистой системы в раннем онтогенезе может изменяться при неблагоприятных воздействиях или развитии ряда заболеваний, влияющих на организм плода/новорожденного во время беременности, во время или после родов. Одной из патологий, влияющих на функционирование организма в раннем онтогенезе, является перинатальная гипоксия. Перинатальная гипоксия – это патологическое состояние, связанное с кислородной недостаточностью во время беременности и в ранний неонатальный период, которая обусловлена уменьшением или прекращением поступления в организм кислорода, что может негативно сказываться на состоянии организма как в раннем постнатальном периоде, так и во взрослом возрасте [9]. Достаточно непродолжительные периоды перинатальной гипоксии, происходящие, например, во время родового процесса, могут являться одной из причин необходимости реанимационных мероприятий у новорожденных, что затрагивает около 10 млн новорожденных ежегодно [10]. Огромное число случаев перинатальной гипоксии указывает на необходимость всестороннего исследования последствий данной проблемы, в том числе и на функционирование сосудистой системы.
Известно, что длительное гипоксическое воздействие во время беременности может приводить к существенным изменениям в функционировании периферической сосудистой системы потомства во взрослом возрасте. Так, например, показано, что продолжительная гипоксия во время беременности у крыс, длящаяся с 5-го по 21-й день беременности, вызывает значимое усиление сократительных ответов артерий брыжейки на агонист α1-адренорецепторов у взрослого потомства [11, 12], а также к уменьшению эндотелий-зависимого расслабления [11]. Это реализуется в том числе за счет снижения продукции NO, происходящего вследствие уменьшения содержания эндотелиальной NO-синтазы (eNOS) в артериях брыжейки у взрослого потомства [11].
Однако на настоящий момент недостаточно данных об “остром” (сразу после воздействия) и об “отставленном” (спустя несколько дней) влиянии непродолжительной (в течение нескольких часов) перинатальной нормобарической гипоксии на функционирование периферической сосудистой системы большого круга кровообращения в раннем онтогенезе у млекопитающих.
В связи с изложенным выше целью данной работы стало исследование “острых” и “отставленных” влияний однократной нормобарической гипоксии на функционирование артерий большого круга кровообращения в раннем постнатальном онтогенезе. Для этого в работе моделировали острую нормобарическую гипоксию (8% О2) в течение 2 ч у 10-дневных крысят [9, 13–15]. Необходимо отметить, что 10-дневные крысята по ряду показателей могут быть соотнесены с организмом доношенного новорожденного ребенка [16].
МЕТОДЫ ИССЛЕДОВАНИЯ
В работе использовали крыс Wistar, полученных из питомника НИИ Общей патологии и патофизиологии. Половозрелых самцов и самок крыс содержали в стандартных условиях вивария биологического факультета МГУ имени М.В. Ломоносова при свободном доступе к пище и воде. Для получения потомства самцы и самки крыс были ссажены на 4 сут. Всего в работе было использовано потомство от 13 самок. День родов принимали как 0 день жизни крысят. На следующий день после родов ограничивали размер помета до 8 крысят. На 10-й день жизни крысят мужского пола отлучали от самки и случайным образом делили на две группы. Крысят одной группы помещали в гипоксические условия (8% О2 и 92% N2) в термостатируемую камеру (37°C) на 2 ч (группа “Гипоксия”). Крысят другой группы на 2 ч помещали в аналогичные условия, но с нормальным содержанием О2 (21%) (группа “Контроль”). Для оценки “острых” эффектов перинатальной гипоксии проводили эксперименты на изолированных сосудах сразу после окончания сеанса гипоксии. Остальных крысят возвращали к самке и для оценки “отставленных” эффектов перинатальной гипоксии эксперименты на изолированных сосудах проводили на 11–14-е дни жизни крысят.
В день проведения эксперимента на изолированных артериях крысят взвешивали, декапитировали, выделяли подкожную артерию (сосуд мышечного типа, ответвление от бедренной артерии, питающей кровью кожу плюсны и стопы). Выделение артерий проводили в растворе для препаровки (в мМ): NaCl – 145; KCl – 4.5; CaCl2 – 0.1; MgSO4 – 1.0; NaH2PO4 – 1.2; EDTA – 0.025; HEPES – 5.0; pH 7.4 [17].
Эксперименты на изолированных артериях
Из артерий вырезали кольцевые сегменты длиной 2 мм и закрепляли их в многоканальном миографе (модели 410A, 420М или 620M, DMT, Дания) для регистрации сократительной активности в изометрическом режиме. В случае необходимости проводили удаление эндотелия с помощью крысиного уса. Показания тензометрических датчиков оцифровывали с частотой 10 Гц с использованием аналого-цифрового преобразователя (E14 140, L CARD, Россия) и регистрировали при помощи программы PowerGraph 3.3 (ДИСофт, Россия). После нагрева камер с раствором до 37°C определяли растяжение препарата, оптимальное для проявления сократительной активности, в ходе этой процедуры также вычисляли внутренний диаметр сосуда, соответствующий давлению 100 мм рт. ст. (d100) [18]. После этого раствор в камере миографа сменяли на рабочий (в мМ): NaCl – 120; NaHCO3 – 26; KCl – 4.5; CaCl2 – 1.6; MgSO4 – 1.0; NaH2PO4 – 1.2; D-глюкоза – 5.5; EDTA – 0.025; HEPES – 5 [17]. Раствор непрерывно аэрировали карбогеном (95% О2 + 5% СО2) для оксигенации и поддержания рН 7.4.
Затем препараты артерий активировали добавлением с последующей отмывкой (1) норэпинефрина (10 мкМ, длительность воздействия 5 мин); (2) метоксамина (агонист α1-адренорецепторов, 10 мкМ, длительность воздействия 5 мин), на фоне действия которого проводили оценку эндотелиальной функции путем либо однократной аппликации ацетилхолина (10 мкМ), либо проведения зависимости “концентрация–эффект” на ацетилхолин (диапазон концентраций 10 нМ–10 мкМ, длительность действия каждой концентрации 1 мин); (3) метоксамина (10 мкМ, длительность воздействия 5 мин). Для всех воздействий длительность отмывки составляла 15 мин, во время отмывки раствор в камере миографа меняли минимум 5 раз. Поскольку тест на ацетилхолин является стандартным тестом для оценки эндотелий-зависимого расслабления артерий [19], то в случае использования препаратов с интактным эндотелием убеждались, что они расслабляются на ацетилхолин, тогда как отсутствие расслабления на ацетилхолин свидетельствовало об успешном удалении эндотелия.
Протокол эксперимента заключался в проведении двух последовательных зависимостей “концентрация–эффект” на метоксамин (в диапазоне концентраций от 10 нМ до 100 мкМ, длительность действия каждой концентрации составляла 3 мин). Первую зависимость “концентрация–эффект” на метоксамин проводили спустя 20 мин после окончания процедуры активации препарата. Этот этап эксперимента необходим для того, чтобы удостовериться, что исходно все препараты одной группы животных обладали одинаковой реактивностью на метоксамин. После отмывки от метоксамина в камеры миографа добавляли ингибитор/блокатор или такой же объем растворителя на 20 мин, после чего проводили вторую зависимость “концентрация–эффект” на метоксамин, аналогичную первой. В работе использовали ингибитор NO-синтаз L-NNA (100 мкМ) [20], блокатор Kv7 каналов XE991 (3 мкМ) [21], ингибитор Rho-киназы Y27632 (3 мкМ) [22].
В ряде экспериментов после окончания второй зависимости “концентрация–эффект” на метоксамин проводили отмывку канала с растворителем, на 20 мин добавляли L-NNA (100 мкМ) и проводили зависимость “концентрация–эффект” на ацетилхолин (диапазон концентраций 10 нМ–10 мкМ, длительность действия каждой концентрации 1 мин) на фоне предсокращения артерии метоксамином (10 мкМ).
При обработке результатов из значения силы при каждой концентрации вазоактивного вещества вычитали значение “пассивной” силы, соответствующее полному расслаблению гладкой мышцы препарата (в растворе для препаровки после окончания процедуры определения оптимального растяжения препарата). Полученные значения активной силы выражали в % от максимальной силы сокращения препарата, определенной по первой зависимости “концентрация–эффект” (для метоксамина), или в % от уровня предсокращения препарата (для ацетилхолина).
В работе использовали норэпинефрин, метоксамин, ацетилхолин, XE991 фирмы Sigma-Aldrich, Y27632 фирмы Tocris и L-NNA фирмы Alexis Biochemicals.
Статистическая обработка результатов
Статистическую обработку результатов проводили в программе GraphPad Prism 7.0. Нормальность распределения проверяли с использованием теста Шапиро–Уилка. Использовали двухфакторный дисперсионный анализ для повторных измерений или t-критерий Стьюдента. Различия считали статистическими значимыми при р < 0.05. Все данные представлены как среднее ± ошибка среднего, n – количество животных в группе.
РЕЗУЛЬТАТЫ ИССЛЕДОВАНИЯ
Оценка “острых” эффектов перинатальной гипоксии
Сразу после окончания проведения гипоксического сеанса оценивали “острые” эффекты перинатальной гипоксии. Масса крысят составила 22 ± 1 г в группе “Контроль” (n = 9) и 21 ± 1 г в группе “Гипоксия” (n = 9, p > 0.05). Внутренний диаметр артерий, соответствующий давлению 100 мм рт. ст. (d100), составил 233 ± 8 мкм в группе “Контроль” (n = 9) и 231 ± 8 мкм в группе “Гипоксия” (n = 9, p > 0.05). Максимальная сила сокращения кольцевых сегментов артерий составила 8.2 ± 0.6 мН в группе “Контроль” (n = 9) и 7.9 ± 0.7 мН в группе “Гипоксия” (n = 9, p > 0.05).
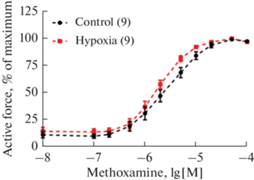
Сократительные ответы на метоксамин не различались между группами “Контроль” и “Гипоксия” (рис. 1). Эндотелий-зависимое расслабление артерий на однократную аппликацию ацетилхолина также не различалось между группами и составило 82 ± 6% (в группе “Контроль”, n = 9) и 85 ± 6% (в группе “Гипоксия”, n = 9, p > 0.05).
Рис. 1.
“Острое” влияние перинатальной гипоксии у 10-дневных крысят на сократительные ответы артерий. Сократительные ответы подкожной артерии с интактным эндотелием на метоксамин. Числа в скобках обозначают количество животных в группе.
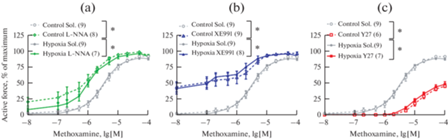
Следующим этапом работы стала оценка выраженности путей, участвующих в регуляции сократительных ответов артерий, характерных для раннего постнатального периода. Для этого мы оценивали антиконстрикторное влияние NO по эффектам ингибитора NO-синтаз L-NNA, антиконстрикторное влияние Kv7 каналов с помощью их блокатора XE991, проконстрикторное влияние Rho-киназы с использованием ингибитора Rho-киназы Y27632. L-NNA и XE991 вызывали увеличение сократительных ответов на метоксамин в артериях обеих групп животных (рис. 2a, b), свидетельствуя о наличии выраженного антиконстрикторного влияния NO и Kv7 каналов соответственно. Y27632, напротив, приводил к уменьшению сократительных ответов артерий на метоксамин у животных обеих групп (рис. 2c), что говорит о выраженном проконстрикторном влиянии Rho-киназы в артериях крысят групп “Контроль” и “Гипоксия”. Однако как в присутствии L-NNA (рис. 2a), так и в присутствии XE991 (рис. 2b) или Y27632 (рис. 2c) межгрупповых различий обнаружено не было.
Рис. 2.
“Острое” влияние перинатальной гипоксии у 10-дневных крысят на выраженность путей регуляции сократительных ответов артерий. Сократительные ответы подкожной артерии с интактным эндотелием на метоксамин в присутствии растворителя (Sol.) или ингибитора NO-синтаз L-NNA (а), блокатора Kv7 каналов XE991 (b), ингибитора Rho-киназы Y27632 (c). Числа в скобках обозначают количество животных в группе. * p < 0.05 (двухфакторный дисперсионный анализ для повторных измерений).
Оценка “отставленных” эффектов перинатальной гипоксии
Далее была проведена оценка “отставленных” эффектов перинатальной гипоксии. Усредненная масса 11–14-дневных крысят составила 28 ± 1 г в группе “Контроль” (n = 9) и 27 ± 1 г в группе “Гипоксия” (n = 9, p > 0.05). Внутренний диаметр артерий, соответствующий давлению 100 мм рт. ст. (d100), составил 247 ± 6 мкм в группе “Контроль” (n = 7) и 246 ± 8 мкм в группе “Гипоксия” (n = 8, p > 0.05). Максимальная сила сокращения кольцевых сегментов артерий составила 12.7 ± 0.9 мН в группе “Контроль” (n = 7) и 11.8 ± 0.4 мН в группе “Гипоксия” (n = 8, p > 0.05).
На следующем этапе было проведено сравнение сократительных ответов артерий с интактным эндотелием у крысят контрольной и гипоксической групп на метоксамин. Артерии обеих групп крысят демонстрировали выраженные ответы на метоксамин, при этом межгрупповых различий обнаружено не было (рис. 3a). Кроме того, нами не было обнаружено различий в реактивности на метоксамин артерий с удаленным эндотелием (рис. 3b).
Рис. 3.
“Отставленное” влияние перинатальной гипоксии у 11–14-дневных крысят на вазомоторные ответы. Сократительные ответы подкожной артерии с интактным (а) и удаленным (b) эндотелием на метоксамин. Реакции расслабления подкожной артерии с интактным эндотелием на ацетилхолин в отсутствие блокаторов и в присутствии ингибитора NO-синтаз L-NNA (c). Числа в скобках обозначают количество животных в группе. * p < 0.05 (двухфакторный дисперсионный анализ для повторных измерений).
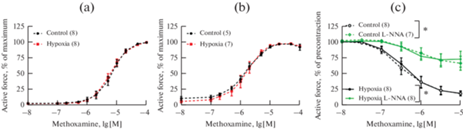
Для оценки эндотелиальной функции исследовали реакции расслабления артерий на ацетилхолин. Ответы на ацетилхолин в отсутствие ингибиторов не различались между группами (рис. 3c). Более того, межгрупповых различий в реакции на ацетилхолин не наблюдалось и после блокады NO-синтаз с помощью L-NNA (рис. 3c), что говорит об отсутствии различий во вкладе NO в эндотелий-зависимое расслабление артерий. Отметим, что ингибирование NO-синтаз приводило к существенному уменьшению реакций артерий на ацетилхолин в обеих группах животных. Максимальное расслабление на ацетилхолин при действии концентрации ацетилхолина 10 мкМ составило 82 ± 3% для контрольных крысят (n = 8) и 82 ± 4% для крысят из группы “Гипоксия” (n = 8) в контрольных условиях (p > 0.05). В присутствии L-NNA максимальное расслабление на 10 мкМ ацетилхолина составило 34 ± 11% для контрольных крысят (n = 7) и 28 ± 13% для крысят из группы “Гипоксия” (n = 8) (p > 0.05).
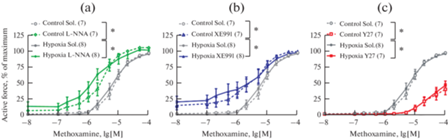
Далее в работе было проведено сравнение выраженности ряда путей, принимающих ключевое участие в регуляции сократительных ответов артерий, в ранний постнатальный период. L-NNA вызывал сопоставимое увеличение сократительных ответов на метоксамин в обеих группах (рис. 4a), то есть после блокады NO-синтаз различий между группами “Контроль” и “Гипоксия” не наблюдалось. XE991 вызывал увеличение сократительных ответов артерий обеих групп, при этом в присутствии XE991 реакции на метоксамин не различались (рис. 4b), что свидетельствует в пользу сопоставимого антиконстрикторного эффекта Kv7 каналов у крысят групп “Контроль” и “Гипоксия”. Y27632 вызывал значимое уменьшение сократительных ответов артерий на метоксамин в обеих группах, однако в присутствии Y27632 сократительные ответы артерий крысят из групп “Контроль” и “Гипоксия” не различались (рис. 4c).
Рис. 4.
“Отставленное” влияние перинатальной гипоксии у 11–14-дневных крысят на выраженность путей регуляции сократительных ответов артерий. Сократительные ответы подкожной артерии с интактным эндотелием на метоксамин в присутствии растворителя (Sol.) или ингибитора NO-синтаз L-NNA (а), блокатора Kv7 каналов XE991 (b), ингибитора Rho-киназы Y27632 (c). Числа в скобках обозначают количество животных в группе. * p < 0.05 (двухфакторный дисперсионный анализ для повторных измерений).
ОБСУЖДЕНИЕ РЕЗУЛЬТАТОВ
В рамках данной работы нами было проведено исследование “острого” и “отставленного” влияния гипоксии в 10-дневном возрасте на функционирование артерий крысят в раннем постнатальном периоде. Как оказалось, кратковременная нормобарическая гипоксия в возрасте 10 дней у крысят не приводит ни к “острому”, ни к “отставленному” изменению функционирования системных артерий как на уровне гладкомышечных, так и на уровне эндотелиальных клеток. Помимо изучения сократительных реакций артерий на агонист α1-адренорецепторов и дилататорных реакций при стимуляции эндотелий-зависимого расслабления на ацетилхолин, нами были рассмотрены ключевые анти- и проконстрикторные пути регуляции сосудистого тонуса в раннем онтогенезе. Выбор этих ключевых путей регуляции сосудистого тонуса не случаен, а объясняется как минимум двумя причинами. Во-первых, согласно нашим предыдущим данным, вклад антиконстрикторного влияния NO и Kv7 каналов максимален в период раннего постнатального онтогенеза [1, 6], так же как и проконстрикторное влияние Rho-киназы [7]. Во-вторых, данные литературы свидетельствуют о том, что именно эти пути регуляции сосудистого тонуса могут быть затронуты гипоксией.
Так, например, ранее в работах in vitro было продемонстрировано, что острая аноксия в течение 60 мин с последующей реоксигенацией вызывает уменьшение эндотелий-зависимого расслабления почечных артерий на ацетилхолин вследствие нарушения работы растворимой гуанилатциклазы, что уменьшает NO-зависимую компоненту вазодилатации [23]. Вместе с тем необходимо подчеркнуть, что в описанной работе, помимо in vitro условий, использовали экстремальные условия с 0%-ным содержанием О2, что существенно отличается от нашей работы, где, во-первых, гипоксию моделировали in vivo, а во-вторых, содержание О2 было 8%. Наши данные об отсутствии “острого” влияния гипоксии на сосудистые реакции в раннем онтогенезе согласуются с данными, полученными на куриных эмбрионах. Показано, что у куриных эмбрионов практически сразу после кратковременного (в течение 30 мин) гипоксического воздействия с концентрацией О2 10% сократительные ответы артерий большого круга кровообращения и их эндотелий-зависимое расслабление оказываются неизменными по отношению к контрольной группе [24].
Уменьшение антиконстрикторной роли Kv7 каналов в малом круге кровообращения было показано ранее при моделировании вызываемой гипоксией легочной гипертензии у взрослых крыс [25]. В наших экспериментах не было обнаружено изменений в выраженности антиконстрикторного влияния Kv7 каналов в артериях большого круга кровообращения ни сразу после окончания сеанса гипоксии, ни спустя несколько дней.
Кроме того, увеличение проконстрикторной роли Rho-киназы в малом круге кровообращения было продемонстрировано в работах по исследованию влияния высокогорной гипобарической гипоксии в пренатальном и раннем постнатальном онтогенезе, вызывающей развитие легочной гипертензии [26]. Помимо этого, увеличение проконстрикторного влияния Rho-киназы было показано в условиях аноксии в экспериментах in vitro для коронарных артерий свиней [27]. Однако выбранный нами режим гипоксического воздействия не оказывал влияния на степень вовлеченности Rho-киназы в регуляцию сократительных ответов артерий новорожденных крыс ни сразу после окончания сеанса гипоксии, ни спустя несколько дней.
Таким образом, согласно представленным в данной работе результатам, кратковременная нормобарическая гипоксия на 10-й день жизни крысят не приводит ни к “острым”, ни к “отставленным” изменениям в регуляции тонуса периферических сосудов большого круга кровообращения в раннем постнатальном периоде. Рассмотренные в работе антиконстрикторные и проконстрикторные пути регуляции сокращения артерий также оказываются неизменными, несмотря на то, что в ряде предыдущих работ было продемонстрировано изменение этих путей вследствие гипоксического воздействия. Вероятно, что подобные расхождения в результатах нашей и предыдущих работ могут быть объяснены различиями в длительности и степени гипоксического воздействия, в типе исследуемого сосуда (принадлежит ли он к малому или большому кругу кровообращения), в возрасте и виде животных.
Необходимо подчеркнуть, что согласно современным представлениям, на этапах раннего онтогенеза в организме происходит закладка “правильности” развития различных систем и органов, включая сердечно-сосудистую систему. Иными словами, в раннем онтогенезе происходит программирование развития сердечно-сосудистой системы; при нарушениях формирования сердечно-сосудистой системы на ранних этапах онтогенеза могут закладываться различные заболевания, проявляющиеся значительно позднее, уже во взрослом возрасте [28, 29]. В связи с этим представляется важным исследование влияния различных воздействий и патологий, включая перинатальную гипоксию, на состояние сердечно-сосудистой системы не только в раннем онтогенезе, но и позднее, во взрослом возрасте, что будет являться предметом дальнейших исследований.
Список литературы
Gaynullina D, Lubomirov LT, Sofronova SI, Kalenchuk VU, Gloe T, Pfitzer G, Tarasova OS, Schubert R (2013) Functional remodelling of arterial endothelium during early postnatal development in rats. Cardiovasc Res 99: 612–621. https://doi.org/10.1093/cvr/cvt138
Sofronova SI, Borzykh AA, Gaynullina DK, Kuzmin IV, Shvetsova AA, Lukoshkova EV, Tarasova OS (2016) Endothelial nitric oxide weakens arterial contractile responses and reduces blood pressure during early postnatal development in rats. Nitric Oxide – Biol Chem 55–56: 1–9. https://doi.org/10.1016/j.niox.2016.02.005
Boegehold MA (2010) Endothelium-dependent control of vascular tone during early postnatal and juvenile growth. Microcirculation 17: 394–406. https://doi.org/10.1111/j.1549-8719.2010.00035.x
Nankervis CA, Nowicki PT (1995) Role of nitric oxide in regulation of vascular resistance in postnatal intestine. Am J Physiol 268: 949–958. https://doi.org/10.1152/ajpgi.1995.268.6.G949
Nankervis CA, Dunaway DJ, Nowicki PT (2001) Determinants of terminal mesenteric artery resistance during the first postnatal month. Am J Physiol – Gastrointest Liver Physiol 280: 678–686. https://doi.org/10.1152/ajpgi.2001.280.4.g678
Shvetsova AA, Gaynullina DK, Tarasova OS, Schubert R (2019) Negative feedback regulation of vasocontraction by potassium channels in 10- to 15-day-old rats: Dominating role of Kv7 channels. Acta Physiol 225: e13176. https://doi.org/10.1111/apha.13176
Mochalov SV, Tarasova NV, Kudryashova TV, Gaynullina DK, Kalenchuk VU, Borovik AS, Vorotnikov AV, Tarasova OS, Schubert R (2018) Higher Ca2+-sensitivity of arterial contraction in 1-week-old rats is due to a greater Rho-kinase activity. Acta Physiol 223: 1–15. https://doi.org/10.1111/apha.13044
Akopov SE, Zhang L, Pearce WJ (1998) Regulation of Ca2+ sensitization by PKC and rho proteins in ovine cerebral arteries: Effects of artery size and age. Am J Physiol – Hear Circ Physiol 275: 930–939. https://doi.org/10.1152/ajpheart.1998.275.3.h930
Sukhanova IA, Sebentsova EA, Levitskaya NG (2016) The acute and delayed effects of perinatal hypoxic brain damage in children and in model experiments with rodents. Neurochem J 10: 258–272. https://doi.org/10.1134/S1819712416040127
Rosa-Mangeret F, Benski AC, Golaz A, Zala PZ, Kyokan M, Wagner N, Muhe LM, Pfister RE (2022) 2.5 Million Annual Deaths–Are Neonates in Low-and Middle-Income Countries Too Small to Be Seen? A Bottom-Up Overview on Neonatal Morbi-Mortality. Trop Med Infect Dis 7: 1–21. https://doi.org/10.3390/tropicalmed7050064
Chen X, Qi L, Fan X, Tao H, Zhang M, Gao Q, Liu Y, Xu T, Zhang P, Su H, Tang J, Xu Z (2019) Prenatal hypoxia affected endothelium-dependent vasodilation in mesenteric arteries of aged offspring via increased oxidative stress. Hypertens Res 42: 863–875. https://doi.org/10.1038/s41440-018-0181-7
Liu B, Liu Y, Shi R, Feng X, Li X, Zhang W, Wu J, Li N, Zhou X, Sun M, Xu Z (2018) Chronic Prenatal Hypoxia Down-Regulated BK Channel B1 Subunits in Mesenteric Artery Smooth Muscle Cells of the Offspring. Cell Physiol Biochem 45: 1603–1616. https://doi.org/10.1159/000487727
Khukhareva DD, Sukhanova YA, Sebentsova EA, Levitskaya NG (2021) Effects of Single-Session Normobaric Hypoxia in Rats Aged 10 Days on Sensorimotor Development and Behavior. Neurosci Behav Physiol 51: 1153–1161. https://doi.org/10.1007/s11055-021-01175-2
Rice JE, Vannucci RC, Brierley JB (1981) The influence of immaturity on hypoxic-ischemic brain damage in the rat. Ann Neurol 9: 131–141. https://doi.org/10.1002/ana.410090206
Bruder ED, Kamer KJ, Guenther MA, Raff H (2011) Adrenocorticotropic hormone and corticosterone responses to acute hypoxia in the neonatal rat: effects of body temperature maintenance. Am J Physiol Integr Comp Physiol 300: R708–R715. https://doi.org/10.1152/ajpregu.00708.2010
Jantzie LL, Robinson S (2015) Preclinical Models of Encephalopathy of Prematurity. Dev Neurosci 37: 277–288. https://doi.org/10.1159/000371721
Zavaritskaya O, Lubomirov LT, Altay S, Schubert R (2017) Src tyrosine kinases contribute to serotonin-mediated contraction by regulating calcium-dependent pathways in rat skeletal muscle arteries. Pflug Arch Eur J Physiol 469: 767–777. https://doi.org/10.1007/s00424-017-1949-3
Mulvany MJ, Halpern W (1977) Contractile properties of small arterial resistance vessels in spontaneously hypertensive and normotensive rats. Circ Res 41: 19–26. https://doi.org/10.1161/01.RES.41.1.19
Furchgott RF, Zawadzki JV (1980) The obligatory role of endothelial cells in the relaxation of arterial smooth muscle by acetylcholine. Nature 288: 373–376. https://doi.org/10.1038/288373a0
Villari A, Giurdanella G, Bucolo C, Drago F, Salomone S (2017) Apixaban enhances vasodilatation mediated by protease-activated receptor 2 in isolated rat arteries. Front Pharmacol 8: 1–12. https://doi.org/10.3389/fphar.2017.00480
Zavaritskaya O, Dudem S, Ma D, Rabab KE, Albrecht S, Tsvetkov D, Kassmann M, Thornbury K, Mladenov M, Kammermeier C, Sergeant G, Mullins N, Wouappi O, Wurm H, Kannt A, Gollasch M, Hollywood MA, Schubert R (2020) Vasodilation of rat skeletal muscle arteries by the novel BK channel opener GoSlo is mediated by the simultaneous activation of BK and Kv7 channels. Br J Pharmacol 177: 1164–1186. https://doi.org/10.1111/bph.14910
Lubomirov LT, Papadopoulos S, Filipova D, Baransi S, Todorović D, Lake P, Metzler D, Hilsdorf S, Schubert R, Schroeter MM, Pfitzer G (2018) The involvement of phosphorylation of myosin phosphatase targeting subunit 1 (MYPT1) and MYPT1 isoform expression in NO/cGMP mediated differential vasoregulation of cerebral arteries compared to systemic arteries. Acta Physiol 224: e13079. https://doi.org/10.1111/apha.13079
Braun D, Zollbrecht C, Dietze S, Schubert R, Golz S, Summer H, Persson PB, Carlström M, Ludwig M, Patzak A (2018) Hypoxia/reoxygenation of rat renal arteries impairs vasorelaxation via modulation of endothelium-independent sGC/cGMP/PKG signaling. Front Physiol 9: 1–11. https://doi.org/10.3389/fphys.2018.00480
Mohammed R, Salinas CE, Giussani DA, Blanco CE, Cogolludo AL, Villamor E (2017) Acute hypoxia-reoxygenation and vascular oxygen sensing in the chicken embryo. Physiol Rep 5: 1–11. https://doi.org/10.14814/phy2.13501
Sedivy V, Joshi S, Ghaly Y, Mizera R, Zaloudikova M, Brennan S, Novotna J, Herget J, Gurney AM (2015) Role of Kv7 channels in responses of the pulmonary circulation to hypoxia. Am J Physiol – Lung Cell Mol Physiol 308: L48–L57. https://doi.org/10.1152/ajplung.00362.2013
Lopez NC, Ebensperger G, Herrera EA, Reyes RV, Calaf G, Cabello G, Moraga FA, Beñaldo FA, Diaz M, Parer JT, Llanos AJ (2016) Role of the RhoA/ROCK pathway in high-altitude associated neonatal pulmonary hypertension in lambs. Am J Physiol – Regul Integr Comp Physiol 310: R1053–R1063. https://doi.org/10.1152/ajpregu.00177.2015
Liu H, Chen Z, Liu J, Liu L, Gao Y, Dou D (2014) Endothelium-independent hypoxic contraction of porcine coronary arteries may be mediated by activation of phosphoinositide 3-kinase/Akt pathway. Vascul Pharmacol 61: 56–62. https://doi.org/10.1016/j.vph.2014.03.005
Miranda JO, Areias JC, Miranda JO (2017) Fetal programming as a predictor of adult health or disease : the need to reevaluate fetal heart function. Hear Fail Rev 22: 861–877. https://doi.org/10.1007/s10741-017-9638-z
Barker DJP (2002) Fetal programming of coronary heart disease. Trends Endocrinol Metab 13: 364–368. https://doi.org/10.1016/S1043-2760(02)00689-6
Дополнительные материалы отсутствуют.
Инструменты
Российский физиологический журнал им. И.М. Сеченова


 Пн.-пт.: 10.00-19.00