

Доклады Российской академии наук. Науки о жизни, 2023, T. 512, № 1, стр. 444-448
Иммунокомпетентные мыши как модель для доклинических исследований иммуногенности мРНК-вакцин
М. Ю. Шкурников 1, *, С. А. Тоневицкая 2, Е. В. Степанова 2, С. А. Слободов 2
1 ФГБУН “Институт биоорганической химии
им. академиков М.М. Шемякина и Ю.А. Овчинникова” Российской академии наук
Москва, Россия
2 ФГАОУ ВО “Национальный исследовательский университет “Высшая школа экономики”
Москва, Россия
* E-mail: mshkurnikov@hse.ru
Поступила в редакцию 29.05.2023
После доработки 21.06.2023
Принята к публикации 22.06.2023
- EDN: OZROHS
- DOI: 10.31857/S2686738923600371
Аннотация
Проведение доклинических исследований мРНК-вакцин осложняется отсутствием релевантных животных моделей иммунной системы человека. Иммунокомпетентные мыши широко используются в биомедицинских исследованиях. Однако критические различия в генетике и иммунной системе мышей и людей препятствуют изучению на мышах уникальных иммунных реакций человека. В рамках данной работы была исследована возможность моделирования цитотоксического Т-клеточного ответа на мРНК-вакцины, кодирующие S-белок вируса SARS-CoV-2. Были проанализированы высокоаффинные пептиды из S-белка для наиболее частых аллельных вариантов ГКГС класса I человека, двух иммунокомпетентных линий мышей (C57BL/6, BALB/c) и аутбредной мышиной модели IRC. Результаты компьютерного моделирования показали, что мышиные модели могут быть использованы при проведении доклинических исследований мРНК-вакцин против SARS-CoV-2. ГКГС класса I мыши способен презентировать высокоаффинные для ГКГС класса I человека пептиды вируса. Более того, иммуногенность части из них уже была подтверждена при исследовании образцов крови от пациентов, переболевших COVID-19.
ВВЕДЕНИЕ
Пандемия COVID-19 продемонстрировала значительный потенциал нового вида вакцин – мРНК-вакцин. Использование мРНК в качестве платформы для создания вакцины имеет несколько преимуществ по сравнению с белковыми и пептидными, убитыми и живыми аттенуированными вакцинами, а также вакцинами на основе ДНК. Во-первых, безопасность: мРНК не требует встраивания в геном, что сводит потенциальный риск заражения или инсерционного мутагенеза к нулю. Кроме того, мРНК-вакцина процессируется внутри клетки стандартными клеточными ферментами наравне с эндогенными мРНК, и ее период полужизни in vivo можно регулировать с помощью различных модификаций и способов доставки [1]. Присущая мРНК иммуногенность может быть снижена для дальнейшего повышения профиля безопасности [2]. Во-вторых, эффективность: различные модификации делают мРНК более стабильной и легко транслируемой [2]. Эффективная доставка in vivo может быть достигнута путем включения мРНК в молекулы-носители, обеспечивающие быстрое поглощение и экспрессию в цитоплазме [3]. В-третьих, масштабируемость производства: мРНК-вакцины позволяет легко наращивать производство благодаря высоким выходам реакций транскрипции in vitro.
Характерной особенностью противовирусного иммунитета, создаваемого мРНК-вакцинами, является формирование цитотоксического Т-клеточного ответа. Эффекторные CD8+ Т-лимфоциты играют ключевую роль в противовирусном иммунитете на начальных этапах COVID-19 [4]. Молекулы главного комплекса гистосовместимости (ГКГС) класса I определяют эффективность презентации антигенов COVID-19. Сразу после попадания в клетку SARS-CoV-2 индуцирует трансляцию своих белков. Часть из них попадает в протеасомы инфицированной клетки, расщепляется до пептидов длиной 8–12 аминокислотных остатков и связывается с молекулами ГКГС класса I. После связывания комплекс, состоящий из молекулы ГКГС класса I и вирусного пептида, переносится из комплекса Гольджи на поверхность клетки, где он может быть распознан Т-клеточным рецептором CD8+ эффекторного Т-лимфоцита. В ответ на взаимодействие CD8+ Т-лимфоцит активируется и разрушает инфицированную клетку с помощью перфоринов и сериновых протеаз [5].
Проведение доклинических исследований мРНК-вакцин осложняется отсутствием релевантных животных моделей иммунной системы человека. Иммунокомпетентные мыши широко используются в биомедицинских исследованиях. Однако критические различия в генетике и иммунной системе мышей и людей препятствуют изучению на мышах уникальных иммунных реакций человека. Так, у человека молекулы ГКГС класса I кодируются генами HLA-A, HLA-B и HLA-C, каждый из которых может быть представлен в двух вариантах (аллелях). В популяции человека существуют сотни вариантов каждого аллеля, кодирующих молекулы ГКГС класса I с индивидуальной способностью взаимодействовать с чужеродными пептидами. У мышей молекулы ГКГС классы I кодируются в регионе Н2, включающем три гена: H2-K, H2-D и H2-L. Однако число аллельных вариантов этих генов исчисляется единицами, а большинство модельных линий мышей являются гомозиготными, что значительно снижает репертуар молекул ГКГС класса 1 [6].
В рамках данной работы была исследована возможность моделирования цитотоксического Т-клеточного ответа на мРНК-вакцины, кодирующие S-белок вируса SARS-CoV-2. Были проанализированы высокоаффинные пептиды из S-белка для наиболее частых аллельных вариантов ГКГС класса 1 человека, двух иммунокомпетентных линий мышей (C57BL/6, BALB/c) и аутбредной мышиной модели IRC.
МАТЕРИАЛЫ И МЕТОДЫ
Линия мышей BALB/c является гомозитотной по аллелям ГКГС класса 1 и имеет генотип H-2Kd, H-2Dd, H-2Ld. Линия C57BL/6 гомозиготна по аллелям H-2Kb, H-2Db. Аутбредные мыши IRC являются носителями значительно большего числа аллелей ГКГС класса 1: H-2Db, H-2Dd, H-2Dq, H-2Kb, H-2Kd, H-2-Kk, H-2Kq, H-2Ld и H-2-Lq. При оценке высокоафинных пептидов S-белка SARS-CoV-2 для человеческой популяции анализировали наиболее частые в московском регионе аллельные варианты ГКГС класса 1: HLA-A*02: 01, HLA-C*12: 03, HLA-A*03: 01, HLA-A*01: 01, HLA-A*24: 02, HLA-B*07: 02, HLA-B*08: 01, HLA-B*18: 01, HLA-C*07: 02, HLA-C*06: 02, HLA-C*07: 01, HLA-C*04: 01 [7].
Для оценки аффинности взаимодействия с молекулами ГКГС класса 1 была использована последовательность S-белка SARS-CoV-2 вари-анта Wuhan-Hu-1, опубликованная на портале GISAID [8]. Для каждой аминокислоты S-белка производили расчет вероятности разрезания протеасомой в данной позиции с использованием программы NetChop [9]. Список вирусных пептидов определяли в виде множества всевозможных фрагментов S-белка, состоящих из 8–12 аминокислот, имеющих вероятность протеасомного разрезания не менее 0.1 с каждого из концов фрагмента.
Аффинность связывания вирусных пептидов с молекулами ГКГС класса 1, кодируемых всеми вышеперечисленными аллелями, оценивали с помощью программы netMHCpan [10]. Пептиды, имеющие низкую аффинность связывания ко всем аллелям из данной популяции, исключали. В качестве порогового значения, характеризующего низкую аффинность, использовали 500 нМ.
Сравнение доли пептидов из RBD-домена S-белка SARS-CoV-2 осуществляли с помощью точного критерия Фишера. Обработку данных и статистический анализ осуществляли в программной среде R.
РЕЗУЛЬТАТЫ И ИХ ОБСУЖДЕНИЕ
С учетом того, что композиция каталитических субъединиц 20S-частицы протеасомы высоко гомологична между мышью и человеком [11], для компьютерного моделирования протеасомной деградации S-белка SARS-CoV-2 была использована нейронная сеть NetChop версии 3.1. Моделирование показало возможность формирования 273 пептидов с аффинностью взаимодействия с одним из вариантов молекулы ГКГС класса 1 менее 500 нМ. Из них 48 пептидов приходились на наиболее вариабельную часть S-белка – RBD-домен (рис. 1). ГКГС класса 1 мышей линии C57BL/6 способен презентировать 119 пептидов (33 из RBD-домена). Мыши линии BALB/c способны представить на молекулах ГКГС класса 1 только 32 пептида (5 из RBD-домена). Наибольшее число пептидов вируса способны представить мыши модели IRC: 230 пептидов (55 из RBD-домена). Ранее было показано, что количество предсказанных высокоаффинных пептидов коррелирует с объективным числом Т-клеточных ответов CD4+ и CD8+ Т-лимфоцитов [12, 13]. Можно заключить, что молекулы ГКГС класса 1 мышей могут презентировать значительное число высокоаффинных для человека пептидов S-белка SARS-CoV-2.
Рис. 1.
Количество и локализация происхождения высокоаффинных для различных популяций пептидов S-белка SARS-CoV-2.
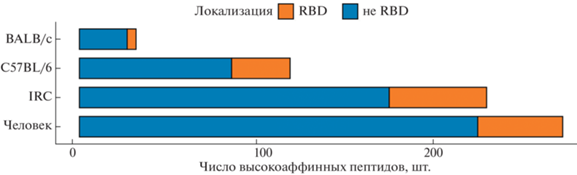
Необходимо отметить, что доля высокоаффинных пептидов из RBD-домена у линии C57BL/6 была значимо выше по сравнению с человеком (отношение шансов: 1.8, р = 0.03). В свою очередь доля высокоаффинных пептидов из RBD-домена у аутбредных мышей IRC и мышей линии BALB/c соответствовала значению для человека.
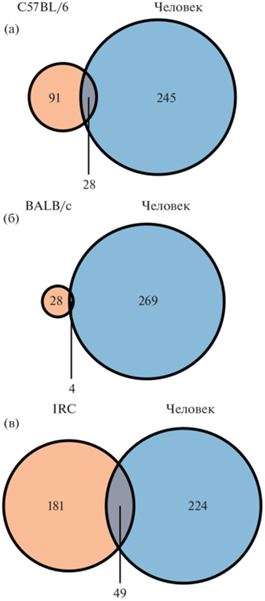
Также была оценена доля пептидов вируса, которые могут быть презентированы молекулами ГКГС класса 1 и мыши, и человека (рис. 2). Она находилась в диапазоне от 1.3% у мышей линии BALB/c до 10.8% для мышей IRC. Несмотря на низкую долю подобных пептидов относительно человека, необходимо отметить, что они составляют от 12 до 24% пептидов из S-белка, которые могут презентировать молекулы ГКГС класса I соответствующей мышиной линии.
Рис. 2.
Количество высокоаффинных пептидов презентируемых одновременно ГКГС класса I и мыши, и человека. а – сравнение мышей линии C57BL/6 и человека, б – сравнение мышей линии BALB/c и человека, в – сравнение мышей IRC и человека.
Анализ базы данных IEDB показал, что мыши линии C57BL/6 и мыши IRC способны презентировать три иммунодоминантных эпитопа: VGYLQPRTF [14], VTWFHAIHV [15], SIIAYTMSL [16]. Данные эпитопы не относятся к RBD-домену S-белка SARS-CoV-2. По данным портала T-cell COVID-19 Atlas эпитопы VGYLQPRTF и SIIAYTMSL являются консервативными в актуальных штаммах вируса [17]. При этом эпитоп VTWFHAIHV отсутствует в вариантах Омикрон ВА.1 и ВА.3 из-за мутации A67V и делеции HV 69–70.
Результаты компьютерного моделирования показали, что мышиные модели могут быть использованы для оценки CD8+ цитотоксического ответа при проведении доклинических исследований мРНК-вакцин против SARS-CoV-2. ГКГС класса 1 мыши способен презентировать высокоаффинные для ГКГС класса 1 человека пептиды вируса. Более того, иммуногенность части из них уже была подтверждена при исследовании образцов крови от пациентов, переболевших COVID-19 [14–16]. Необходимо отметить, что широко используемая при изучении SARS-CoV-2 мышиная модель K18-hACE2 получена на основе линии C57BL/6 и несет генотип H-2Kb, H-2Db. Необходимо учитывать особенности презентации пептидов вируса главным комплексом гистосовместимости данной линией мышей при анализе результатов экспериментов.
Список литературы
Wang G. et al. mRNA produced by VSW-3 RNAP has high-level translation efficiency with low inflammatory stimulation // Cell Insight. 2022. V. 1. № 5. P. 100056.
Inagaki M. et al. Cap analogs with a hydrophobic photocleavable tag enable facile purification of fully capped mRNA with various cap structures // Nat Commun. 2023. V. 14. № 1. P. 2657.
Hasanzadeh A. et al. Could artificial intelligence revolutionize the development of nanovectors for gene therapy and mRNA vaccines? // Nano Today. 2022. V. 47. P. 101665.
Kusnadi A. et al. Severely ill COVID-19 patients display impaired exhaustion features in SARS-CoV-2-reactive CD8+ T cells. // Science immunology. 2021. V. 6. № 55.
Wherry E.J., Ahmed R. Memory CD8 T-Cell Differentiation during Viral Infection // Journal of Virology. American Society for Microbiology (ASM), 2004. V. 78. № 11. P. 5535–5545.
Pérarnau B. et al. SingleH2Kb, H2Db and doubleH2KbDb knockout mice: peripheral CD8+ T cell repertoire and antilymphocytic choriomeningitis virus cytolytic responses // Eur. J. Immunol. 1999. V. 29. № 4. P. 1243–1252.
Shkurnikov M. et al. HLA-A*01: 01 allele diminishing in COVID-19 patients population associated with non-structural epitope abundance in CD8+ T-cell repertoire // PeerJ. 2023. V. 11. P. e14707.
Elbe S., Buckland-Merrett G. Data, disease and diplomacy: GISAID’s innovative contribution to global health // Global Challenges. 2017. V. 1. № 1. P. 33–46.
Nielsen M. et al. The role of the proteasome in generating cytotoxic T-cell epitopes: Insights obtained from improved predictions of proteasomal cleavage // Immunogenetics. 2005. V. 57. № 1–2. P. 33–41.
Reynisson B. et al. NetMHCpan-4.1 and NetMHCIIpan-4.0: improved predictions of MHC antigen presentation by concurrent motif deconvolution and integration of MS MHC eluted ligand data // Nucleic acids research. 2020. V. 48. № W1. P. W449–W454.
Visekruna A. et al. Comparative expression analysis and characterization of 20S proteasomes in human intestinal tissues: The proteasome pattern as diagnostic tool for IBD patients // Inflammatory Bowel Diseases. 2009. V. 15. № 4. P. 526–533.
Nersisyan S. et al. Alterations in SARS-CoV-2 Omicron and Delta peptides presentation by HLA molecules // PeerJ. 2022. V. 10. P. e13354.
Titov A. et al. Immunogenic epitope panel for accurate detection of non-cross-reactive T cell response to SARS-CoV-2 // JCI Insight. 2022. V. 7. № 9. P. e157699.
Weingarten-Gabbay S. et al. Profiling SARS-CoV-2 HLA-I peptidome reveals T cell epitopes from out-of-frame ORFs // Cell. 2021. V. 184. № 15. P. 3962–3980.e17.
Xiao C. et al. SARS-CoV-2 variant B.1.1.7 caused HLA-A2+ CD8+ T cell epitope mutations for impaired cellular immune response // iScience. 2022. V. 25. № 3. P. 103934.
Habel J.R. et al. Suboptimal SARS-CoV-2−specific CD8 + T cell response associated with the prominent HLA-A*02:01 phenotype // Proc. Natl. Acad. Sci. U.S.A. 2020. V. 117. № 39. P. 24384–24391.
Nersisyan S. et al. T-CoV: a comprehensive portal of HLA-peptide interactions affected by SARS-CoV-2 mutations // Nucleic Acids Research. 2022. V. 50. № D1. P. D883–D887.
Дополнительные материалы отсутствуют.
Инструменты
Доклады Российской академии наук. Науки о жизни


 Пн.-пт.: 10.00-19.00